

Senaste forskningsresultat rörande D-allulosas fysiologiska funktioner och biosyntes
Allulose StoreLyssna på sidan
Källa: frontiers
Livsmedelsmikrobiologi
Volym 13 - 2022 |https://doi.org/10.3389/fmicb.2022.881037
Denna artikel är en del av forskningstematInnovativ mikrobiell teknik för framtidens hållbara livsmedelsvetenskap
Senaste rön om de fysiologiska funktionerna och biosyntesen av D-allulos
- Key Laboratory of Carbohydrate Chemistry and Biotechnology, Ministry of Education, School of Biotechnology, Jiangnan University, Wuxi, Kina
D-allulos, en sockerart som allmänt anses vara säker (GRAS), är sällsynt i naturen.
På grund av dess låga kaloriinnehåll, sacharosliknande smak och unika funktioner är det ett av de mest lovande sötningsmedlen för framtida bruk.
D-allulos har många fysiologiska effekter, såsom anti-fetma, anti-hyperglykemi, anti-diabetes, antiinflammatoriska, antioxidativa och neuroprotektiva effekter.
Därför har D-allulos ett viktigt tillämpningsvärde inom livsmedelsindustrin, läkemedelsindustrin och hälso- och sjukvården.
Den höga produktionskostnaden för D-allulos begränsar dock dess storskaliga användning. För närvarande är biotransformering mycket attraktiv för syntes av D-allulos, där de två huvudsakliga biosyntesmetoderna är Izumoring-strategin och den DHAP-beroende aldolasstrategin.
Denna artikel ger en översikt över de senaste resultaten gällande D-allulos fysiologiska funktioner och biosyntes. Dessutom presenteras framtidsutsikterna för produktion av D-allulos.
Introduktion
På senare tid har risken för fetma, hyperlipidemi, högt blodtryck och diabetes ökat snabbt över hela världen på grund av ett överdrivet intag av kost med hög halt av fett och socker.
Sacharos, ett traditionellt sötningsmedel, spelar en viktig roll inom livsmedelsindustrin på grund av sin sötma och smaklighet ( Castro-Muñoz et al., 2022 ).
Sacharos har dock vissa nackdelar, såsom högt kaloriinnehåll, förmåga att framkalla hyperglykemiska reaktioner och koppling till diabetes ( Grassi et al., 2021 ).
Därför har kalorifattiga sötningsmedel väckt forskarnas intresse ( Khan et al., 2021 ).
Mer än 30 typer av sällsynta sockerarter har rapporterats ( Granström et al., 2004 ). De har unika biologiska funktioner och används som livsmedelstillsatser, suppressorer för cancerceller samt som byggstenar för anti-cancer- och antivirala läkemedel ( Zhang et al., 2016b ; Li et al., 2017 ; Guerrero-Wyss et al., 2018 ; Hoshikawa et al., 2018 ; Xia et al., 2021 ).
D-allulos (även känt som D-psikos) är den mest anmärkningsvärda av de sällsynta sockerarterna.
Det har gått mer än 20 år sedan Ken Izumori först rapporterade om D-allulos ( Itoh et al., 1995 ).
Det uppvisar 70 % av sacharos sötma, men innehåller endast 0,3 % av dess energiinnehåll.
Dessutom innehåller det nästan inga kalorier alls ( Matsuo et al., 2002 ).
Som en industriellt viktig bioprodukt listades D-allulos av den amerikanska livsmedels- och läkemedelsmyndigheten (FDA) 2002 som ett "allmänt erkänt som säkert" (GRAS) ämne och godkändes för användning i sötsaker, fruktjuicer, kosttillskott och andra dietprodukter.
Därför har D-allulos ett viktigt tillämpningsvärde inom livsmedelsindustrin, läkemedelsindustrin och hälso- och sjukvården.
D-allulos förväntas förändra sötningsmedelsmarknaden på grund av sitt låga kaloriinnehåll och goda smak, då det kan konkurrera med andra sockerersättningsmedel (sockeralkoholer såsom xylitol, mannitol och sorbitol).
Det kommersiella priset på D-allulos förväntas närma sig priset för konkurrerande sockerersättningsmedel, såsom xylitol (2–5 USD/kg), mannitol (1–5 USD/kg) och sorbitol (1–10 USD/kg).
D-allulos kommer inom en snar framtid att bli konkurrenskraftigt i storskalig produktion, likt andra sötningsmedel som konsumeras i miljontals ton årligen.
För närvarande inkluderar de faktorer som begränsar produktionen och priset på D-allulos det höga priset på råmaterial, låga utbyten och svårigheter vid isolering.
I denna artikel sammanfattar och diskuterar vi de senaste resultaten gällande D-allulos fysiologiska funktioner och biosyntes.
D-allulos fysiologiska funktioner
D-allulos inverkan på lipidmetabolismen
D-allulos har visat sig ha en anti-fetmaeffekt hos både djur och människor genom att minska matintaget, fettmassan och fettvävnadens vikt ( Kimura et al., 2017 ; Bilal et al., 2018 ).
Dessutom tyder flera bevis på att D-allulos kan öka energiförbrukningen och minska fettinlagringen hos normala råttor ( Chung et al., 2012 ; Ochiai et al., 2014 ).
Även om D-allulos kan minska fettvävnadens vikt, är mekanismen fortfarande okänd.
Det kan minska aktiviteten av fettsyrasyntas (FSA) samt öka β-oxidation och aktiviteten av karnitin-palmitoyltransferas (CPT) i den vita fettvävnaden (WAT; Han et al., 2016 ).
Vidare kan dietärt D-allulos hämma uttrycket av acetyl-CoA-karboxylas alfa (ACCα), som är kopplat till lipogenes, i den vita fettvävnaden.
Dessutom kan dietärt D-allulos stimulera uttrycket av AMP-aktiverat proteinkinas alfa 2 (AMPKα2), hormonkänsligt lipas (HSL) och peroxisomproliferator-aktiverad receptor alfa (PPARα; Chen et al., 2019 ), vilka är kopplade till fettsyraoxidation. Därför har D-allulos potentiella anti-fetmaegenskaper.
D-allulos anti-hyperglykemiska effekt
En felaktig kost har lett till en snabb ökning av förekomsten av fetma och fetmarelaterad typ 2-diabetes (T2DM) globalt, vilket avsevärt ökar kostnaderna för att behandla dessa kroniska sjukdomar.
Därför är det mycket viktigt att identifiera effektiva terapeutiska interventioner för att hantera diabetes och dess komplikationer. D-allulos har fått stor uppmärksamhet på grund av sina lovande anti-hyperglykemiska egenskaper, då det har förmågan att reglera plasmaglukosnivåer, kroppsvikt och fettmassa ( Matsuo och Izumori, 2009 ; Hossain et al., 2015 ; Lee et al., 2020 ).
Mekanismen för dess anti-diabetiska effekt är dock ännu inte klarlagd. Det antas att D-allulos påverkar blodsockernivån och insulinutsöndringen, eller aktiviteten hos glukosidaser och lipolytiska enzymer.
Det har visat sig att D-allulos signifikant hämmar ökningen av plasmaglukoskoncentrationen som framkallas av sacharos eller maltos ( Matsuo och Izumori, 2009 ).
Dessutom har D-allulos visat sig effektivt hämma aktiviteten hos tarmens sackaras och maltas.
Tillsats av D-allulos (5 g) kan avsevärt dämpa den blodsockerstegring som framkallas av oralt maltodextrin (75 g) hos friska vuxna.
Dessutom påverkar oralt D-allulos i sig inte blodnivåerna av glukos och insulin ( Iida et al., 2008 ).
D-allulos har också visat sig hämma postprandiell blodsockerstegring, främst hos patienter med pre-diabetes, och inga biverkningar eller kliniska problem har observerats efter 12 veckors kontinuerligt intag av D-allulos ( Hayashi et al., 2010 ).
Även om många studier har visat att D-allulos har anti-diabetisk aktivitet, är mekanismen ännu inte helt klarlagd.
I levern regleras metabolismen av D-glukos av den nukleocytoplasmatiska förflyttningen av glukokinas ( Hossain et al., 2015 ).
Vid låga glukosnivåer förblir glukokinas i inaktiv form bundet till det glukokinasreglerande proteinet (GKRP), som rekryteras till hepatocyternas kärna. När glukosnivåerna når höga nivåer aktiveras glukokinas genom att frigöras från glukokinas-GKRP-komplexet och förflyttas från kärnan till cytoplasman, där det deltar i glykogenmetabolismen och homeostasen av blodsockernivån ( Liu et al., 2012 ).
Exempelvis kan aktivering av glukokinas förbättra glukostoleransen och insulinkänsligheten ( Shintani et al., 2017b ).
Störd funktion av leverns glukokinas vid diabetes leder till patogenesen av hyperglykemi ( Basu et al., 2001 ).
Därför betraktas glukokinas som ett potentiellt mål för anti-diabetiska läkemedel ( Lloyd et al., 2013 ).
Dessutom aktiveras glukokinas av flera fruktosfosfater, såsom fruktos-6-fosfat (F6P) och fruktos-1-fosfat (F1P; Pfefferkorn, 2013 ).
D-allulos-1-fosfat aktiverar, likt fruktos-1-fosfat, också glukokinas. Därför kan D-allulos öka leverns glukosutnyttjande ( Toyoda et al., 2010 ).
Glukos-6-fosfatas (G6Pase) bidrar till hyperglykemi vid diabetes och reglerar hastighetsbestämmande steg i leverns glukoneogenetiska flöde ( Herling et al., 1998 ).
D-allulos kan reglera blodsockernivån och utöva en hypolipidemi-effekt genom att minska aktiviteten hos G6Pase ( Nagata et al., 2015 ).
Enligt rapporter kan oralt intag av D-allulos stimulera utsöndringen av GLP-1, och kan därför användas för att förebygga och behandla glukosintolerans ( Hayakawa et al., 2018 ).
Nyligen har det bekräftats att D-allulos inducerar frisättning av GLP-1, aktiverar vagus afferent signalering, minskar matintaget och begränsar hyperglykemi hos friska och feta diabetiska råttor.
Vidare kan oralt D-allulos korrigera arytmiskt ätande, fetma och diabetes ( Iwasaki et al., 2018 ).
Andra fysiologiska funktioner hos D-allulos
D-psikosa utövar en antiinflammatorisk effekt genom att undertrycka serumnivåerna av proinflammatoriska cytokiner, såsom tumörnekrosfaktor-alfa (TNF-α), interleukin-6 (IL-6) och monocytkemotaktiskt protein 1 (MCP-1). Dessa cytokiner härrör främst från visceral fettvävnad ( Moller och Berger, 2003 ; Kim et al., 2017 ).
D-psikosa har även antioxidativa egenskaper; genom att binda reaktiva syreföreningar (ROS) skyddar den mot 6-hydroxidopamin-inducerad apoptos eller förebygger testikelskador ( Takata et al., 2005 ; Suna et al., 2007 ).
D-psikosa kan också förlänga livslängden genom att öka aktiviteten hos superoxiddismutas (SOD) och katalas (CAT) ( Shintani et al., 2017a ).
Vidare har det visats att D-psikosa förändrar serumkolesterolnivåer hos hamstrar, delvis genom att sänka nivån av proproteinkonvertas-subtilisin/kexin typ 9 (Pcsk9) ( Kanasaki et al., 2019 ).
Dessutom kan D-psikosa förbättra systemisk och muskulär insulinkänslighet hos vakna råttor ( Natsume et al., 2021 ). D-psikosas olika fysiologiska funktioner illustreras i figur 1.
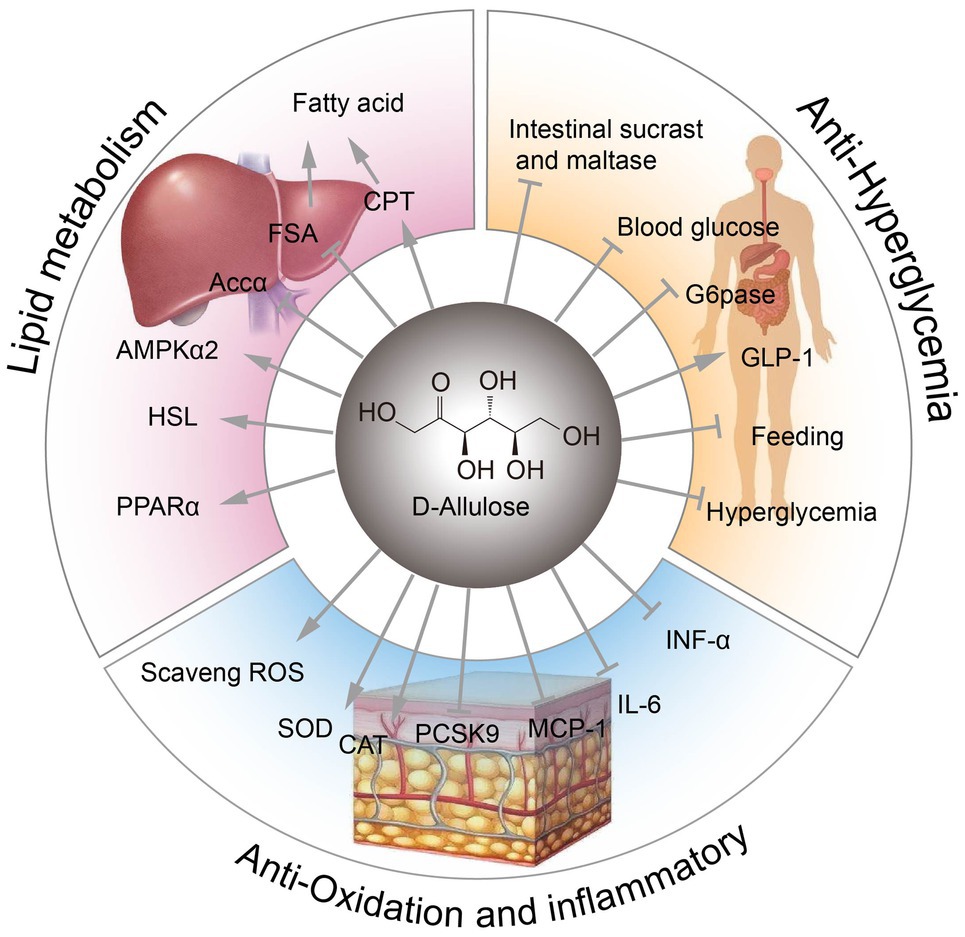
Figur 1. D-psikosas fysiologiska funktioner. FSA, fettsyrasyntas; CPT, karnitinpalmitoyltransferas; ACCα, acetyl-CoA-karboxylas alfa; AMPKα, AMP-aktiverat proteinkinas alfa; HSL, hormonkänslipt lipas; PPARα, peroxisomproliferator-aktiverad receptor alfa; ROS, reaktiva syreföreningar; SOD, superoxiddismutas; CAT, katalasaktivitet; Pcsk9, proproteinkonvertas-subtilisin/kexin typ 9; MCP-1, monocytkemotaktiskt protein 1; G6Páz, glukos-6-fosfatas.
Biologisk produktion av D-psikosa
Som beskrivits ovan har D-psikosa många användbara fysiologiska funktioner. D-psikosa är dock sällsynt i naturen, vilket kraftigt begränsar dess breda användning. Traditionell kemisk syntes av D-psikosa innebär vanligtvis svåra reaktioner och många bireaktioner ( McDonald, 1967 ; Doner, 1979 ).
Det är svårt att framställa en enskild produktkonfiguration med kemiska metoder.
Däremot har biokonverteringsmetoder många fördelar, inklusive milda reaktionsförhållanden, få biprodukter, enkla reningssteg och miljövänliga egenskaper ( Zhang et al., 2021 ).
Därför har biotransformation gradvis blivit huvudmetoden för syntes av D-psikosa.
För närvarande uppnås den biologiska produktionen av D-psikosa främst genom två strategier: (1) Izumoring-strategin och (2) DHAP-beroende aldolasstrategin.
Produktion av D-psikosa med Izumoring-strategin
Produktion av D-psikosa från D-fruktos genom användning av enzymfamiljen D-tagatos-3-epimeras
Izumoring-strategin är ett lovande angreppssätt för bioproduktion av alla hexossocker och omfattar D-tagatos-3-epimeraser (DTEaser), polyoldehydrogenaser och aldosisomeraser ( Izumori, 2006 ).
Under de senaste decennierna har Izumoring-strategin visat sig vara effektiv vid biosyntes av sällsynta sockerarter.
Enzymer i DTEas-familjen är nyckelenzymer för biosyntes av D-psikosa från D-fruktos ( figur 2 ), och inkluderar DTEas och D-psikos-3-epimeras (DAEas).
DAEas uppvisar högre specificitet för D-psikosa än för D-tagatos ( Kim et al., 2006 ).
Sedan den första DTEasen från Pseudomonas cichorii ST-24 identifierades 1993, har andra DTEas-enzymer isolerats från olika arter, såsom Agrobacterium tumefaciens ( Kim et al., 2006 ), Clostridium bolteae ( Jia et al., 2014 ), Dorea sp. CAG317 ( Zhang et al., 2015 ), Ruminococcus sp. 5_1_39BFAA ( Chen et al., 2016 ), Treponema primitia ZAS-1 ( Zhang et al., 2016c ), Rhodobacter sphaeroides ( Qi et al., 2017 ), Ruminococcus sp. ( Li et al., 2018 ), Arthrobacter globiformis M30 ( Yoshihara et al., 2017 ), Clostridium cellulolyticum H10 ( Su et al., 2018 ), Sinorhizobium sp. ( Zhu et al., 2019b ) samt Rhodopirellula baltica SH 1 ( Zhang et al., 2020 ). Detaljer om de katalytiska egenskaperna hos enzymer i DTEas-familjen från olika arter visas i tabell 1. Itoh et al. (1995) rapporterade först immobilisering av DTEas från P. cichorii på chitopearl-pärlor, och framställde 90 g D-psikosa från 500 g D-fruktos.
Sedan dess har metoder för immobilisering av DTEas väckt stort intresse ( Lim et al., 2009 ; Tseng et al., 2014 ; Narayan Patel et al., 2018 ), och de immobiliserade enzymerna uppvisade bättre termostabilitet och lagringsstabilitet.
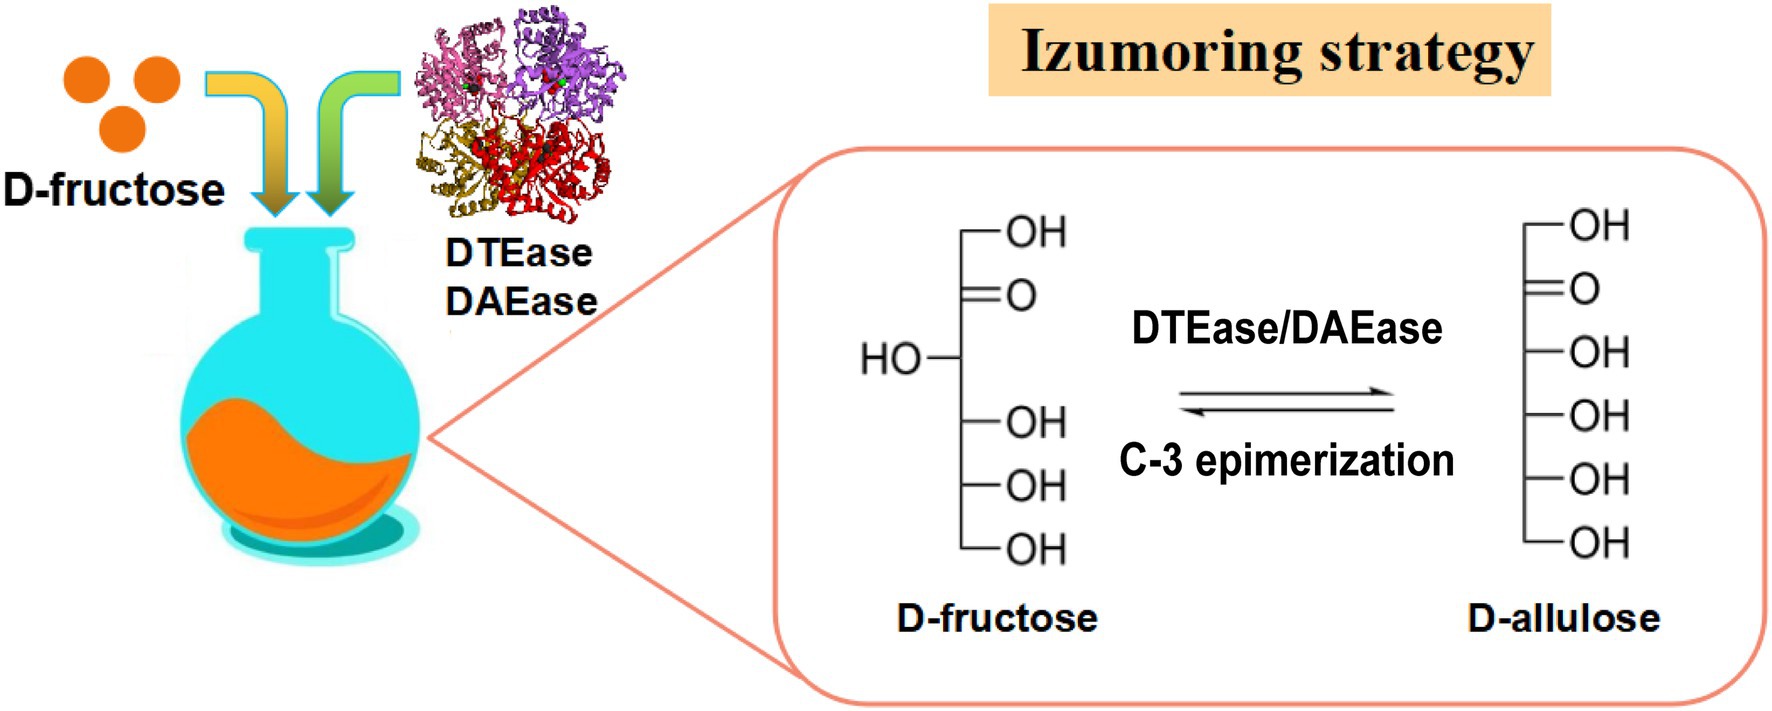
Figur 2. Izumoring-strategi för produktion av D-psikosa. DTEas, D-tagatos-3-epimeras; DAEas, D-psikos-3-epimeras
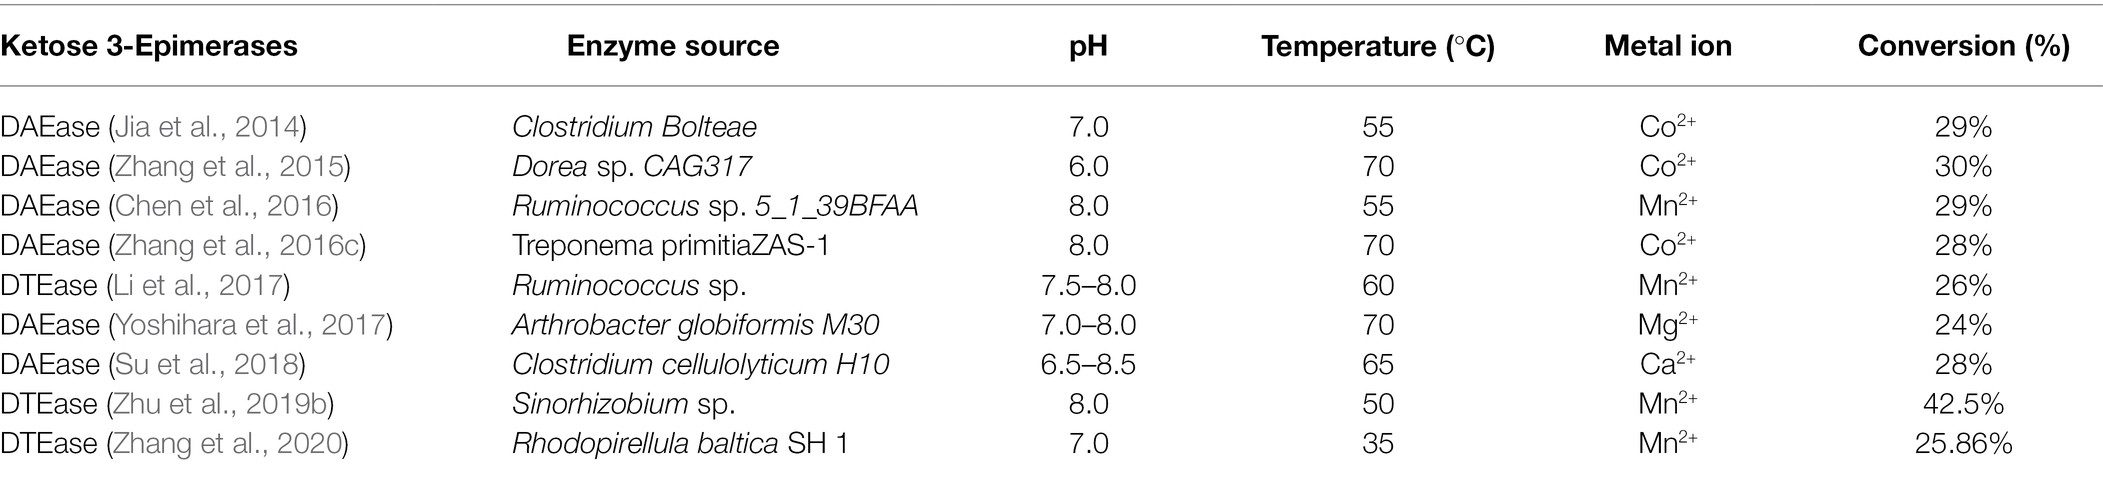
Tabell 1. Egenskaper hos enzymer i DTEas-familjen.
Biosyntes av D-psikosa från billiga material baserat på DTEas-enzymer
För närvarande orsakar jordbruksbiprodukter, såsom rester från frukt och grönsaker, betydande jordbruksproblem ( Lai et al., 2017 ).
Jordbruksrester grävs vanligtvis ner på soptippar eller bränns ( Park och Yoon, 2015 ). Dessa rester innehåller dock stora mängder kostfiber och sockerarter, inklusive sackaros, D-glukos och D-fruktos.
Att omvandla kostfiber och sockerarter till produkter med högt mervärde utgör ett viktigt steg mot att lindra jordbruksproblem.
Kaskadkatalys anses vara ett mycket attraktivt angreppssätt jämfört med traditionell, stegvis syntes.
Denna strategi används ofta för produktion av sällsynta sockerarter från billiga material såsom sackaros, jordärtskocka, inulin och rester från frukt/grönsaker ( figur 3 ; Wagner et al., 2015 ; Song et al., 2016 , 2017 ; Zhang et al., 2017 ; Yang et al., 2019 ; Li et al., 2020a ).
D-psikosa har effektivt syntetiserats från sackaros genom användning av renat rekombinant invertas, D-xylosisomeras och DTEas.
Dessutom har praktisk integrering av kaskadlösning och kromatografi med simulerad rörlig bädd (SMB) använts för att framställa ren D-psikosa (99,9%) med mycket högt utbyte (89%; Wagner et al., 2015 ).
D-psikosa kan även syntetiseras genom en tvåstegs kaskadreaktion som involverar hydrolys av jordärtskocka ( Song et al., 2017 ), rester från korsblommiga växter ( Song et al., 2016 ) och inulin ( Li et al., 2020a ).
För att minska produktionskostnaderna och undvika enzymrening har Zhu och medarbetare utvecklat ett enstegs reaktionssystem med två enzymer, innehållande ett nytt exo-inulinas från Bacillus velezensis (BvInu) och ett DAEas från Ruminococcus sp., för produktion av D-allulos från jordärtskocka.
BvInu och DAEas uttrycktes i Bacillus subtilis och utsöndrades i supernatanten utan rening. Vid det optimala BvInu/RDAE-förhållandet (80:40 U/g inulin) erhölls 10,3 g/l D-allulos från 50 g/l inulin vid 50°C under 2 timmar ( Zhu et al., 2020 ).
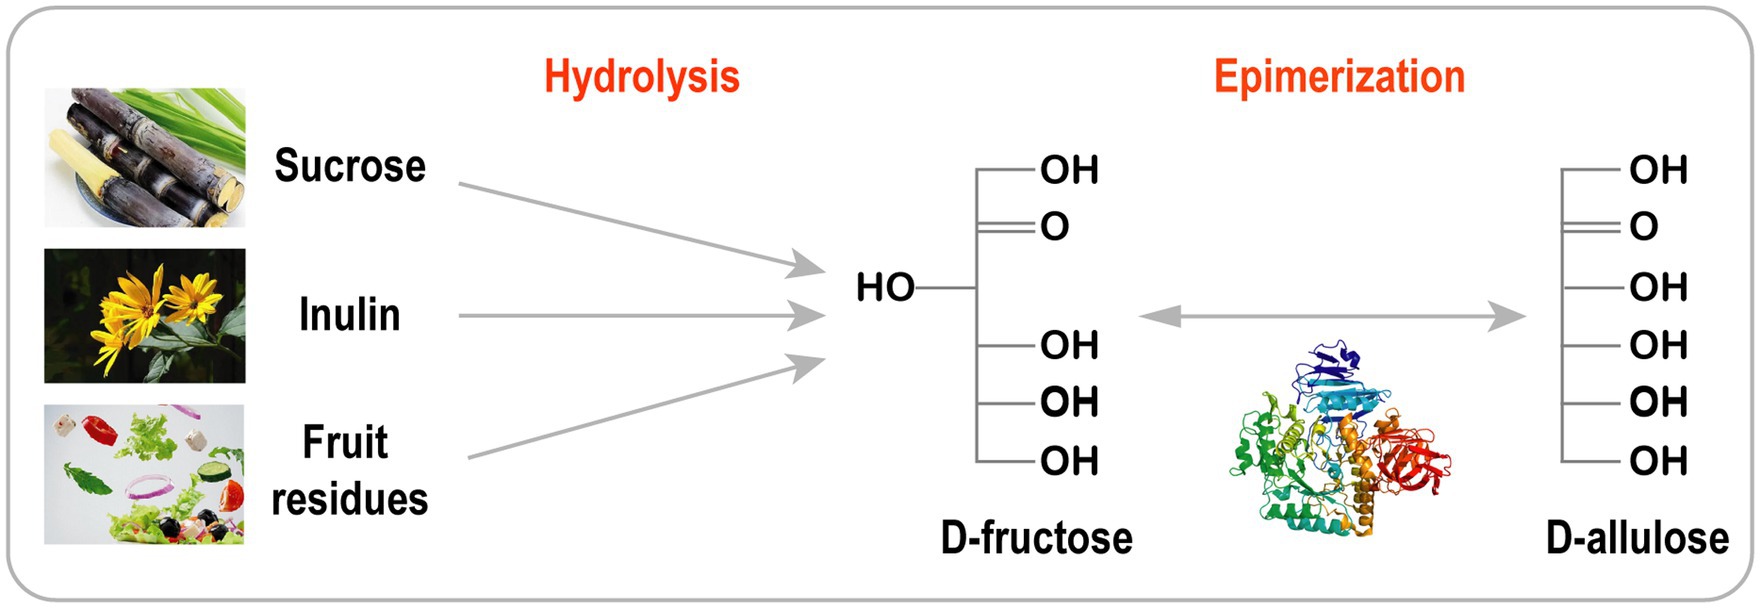
Figur 3 . Biosyntes av D-allulos från billiga råvaror.
Biosyntes av D-allulos med hjälp av mikroorganismer
Jämfört med enstegs kaskadreaktioner har helcellskatalyserade reaktioner många fördelar ( Figur 4 ): (1) Celler som innehåller enzymer är lätta att producera utan mödosam rening av enzymer; (2) den cellulära miljön ger en lämplig mikromiljö och kofaktorregenerering (ATP, NAD+/NADH); (3) cellväggar och membran skyddar enzymerna från tuffa reaktionsförhållanden; och (4) intracellulär kolokalisering av flera enzymer ökar den lokala enzymkoncentrationen och minskar diffusionen av intermediärer i kaskadreaktionerna ( Wu och Li, 2018 ).
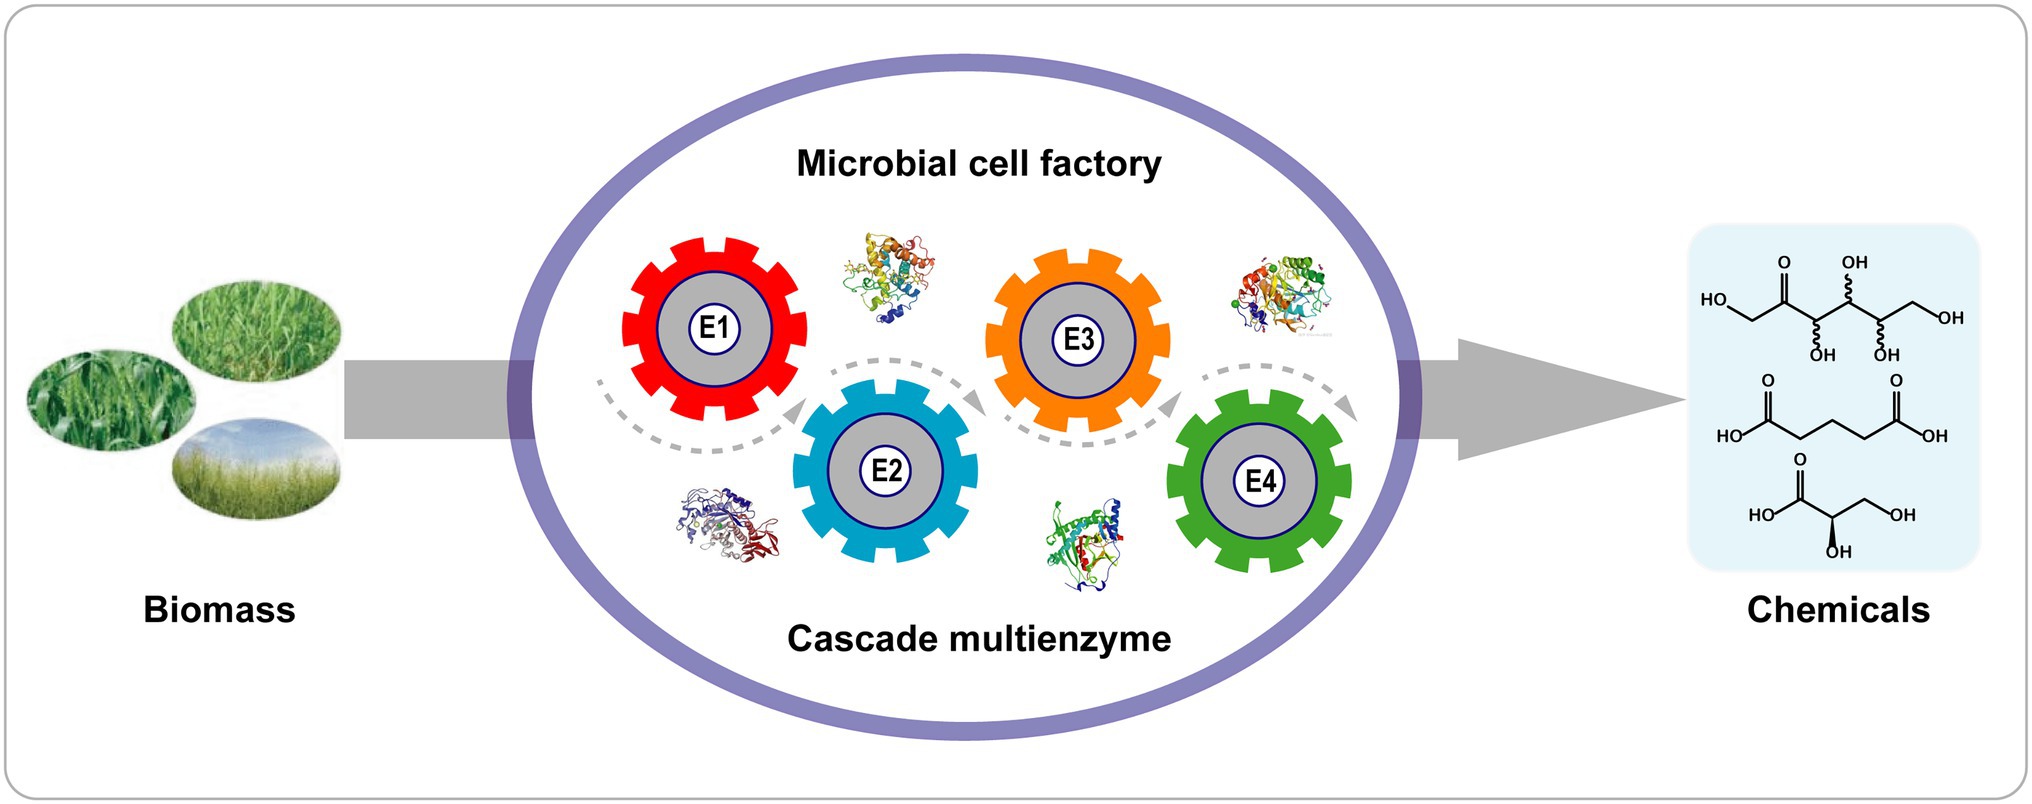
Figur 4 . Kaskadbiotransformering med en enda rekombinant cell. E1–E4 betecknar enzymerna 1–4.
Modifierad Escherichia coli är en av de mest använda organismerna för produktion av D-allulos på grund av dess rena bakgrund, snabba tillväxttakt, enkla odling och stabila genetik.
DAEas och D-glukos-isomeras (GIas) från Acidothermus cellulolyticus uttrycktes samtidigt för att producera D-allulos från D-glukos ( Zhang et al., 2017 ).
På liknande sätt uttrycktes DAEas och xylosisomeras (XI) samtidigt för att producera D-allulos med användning av D-glukos som substrat ( Chen et al., 2017 ).
I de två ovanstående metoderna omvandlades D-glukos först till D-fruktos med hjälp av GIas eller XI, varefter D-fruktos omedelbart isomeriserades till D-allulos med hjälp av DAEas.
Även om god produktivitet uppnåddes genom manipulering av E. coli, vilket inte var applicerbart inom livsmedelsindustrin på grund av endotoxiner och dess icke-livsmedelsklassade status, har DAEas fram till idag framgångsrikt uttryckts i flera livsmedelssäkra stammar, såsom B. subtilis, Saccharomyces cerevisiae och Corynebacterium glutamicum ( Li et al., 2015b ; He et al., 2016 ). He och medarbetare (2016) exponerade DTEas från Clostridium scindens ATCC 35704 på ytan av B. subtilis-sporer för att producera D-allulos från D-fruktos. DAEas kopplades till C-terminalen av CotZ och uppvisade hög termostabilitet. Efter fem användningscykler kvarstod 60 % av aktiviteten ( He et al., 2016 ).
I en tidigare studie utvecklade vi en teknik för sporytexponering för att producera D-allulos från D-glukos. I denna metod immobiliserades nyckelenzymet XI från Thermus thermophilus och DAEas från A. tumefaciens på S. cerevisiae-sporer genom biologiska respektive kemiska metoder ( Li et al., 2015b ).
Dessutom överuttrycktes flera DAEas och invertaser (INV) i C. glutamicum, och de modifierade cellerna, immobiliserade med alginat, underkastades en kaskadreaktion i ett enstegs, tvåstegs reaktionssystem för att producera D-allulos från rörsocker-melass. Efter 8 timmars reaktion erhölls 61,2 g/L D-allulos, vilket utgjorde 17,4 % av den totala mängden monosackarider ( Yang et al., 2019 ).
För närvarande är Izumoring-strategin huvudmetoden för industriell produktion av D-allulos, vilket kan uppnås med hjälp av SMB. Dessutom kan den separerade D-fruktosen återanvändas för att producera D-allulos. Kortfattat är Izumoring-strategin det enklaste och vanligaste sättet för biosyntes av D-allulos. Begränsningarna i termodynamisk jämvikt utgör dock en flaskhals som begränsar den breda tillämpningen av D-allulos inom livsmedelsindustrin.
Produktion av D-allulos med hjälp av DHAP-beroende aldolaser
Som nämnts ovan har olika metoder baserade på Izumoring-strategin utvecklats för att producera D-allulos från billiga råvaror, såsom jordärtskocka, inulin och jordbruksrester.
Reaktionen som katalyseras av nyckelenzymet DAEas är dock reversibel och omvandlingsgraden är låg, vilket leder till ett högt pris på den erhållna D-allulosen. Dessutom är de flesta stammar som används vid syntes av D-allulos inte GRAS-mikroorganismer.
Därför är det ytterst viktigt att etablera en kostnadseffektiv och säker plattform för massproduktion av D-allulos.
Stereoselektiva aldoladditioner katalyserade av aldolaser har blivit ett grundläggande verktyg i asymmetrisk CC-syntes ( Iturrate et al., 2010 ).
Bland medlemmarna i aldolasfamiljen är DHAP-beroende aldolaser de mest använda vid syntes av många kolhydratföreningar som är svåra att syntetisera med traditionella kemiska metoder ( Bosshart et al., 2013 ).
Det finns fyra typer av DHAP-beroende aldolaser: L-ramnulos-1-fosfat-aldolas (RhaD), L-fukulos-1-fosfat-aldolas (FucA), D-fruktos-1,6-bisfosfat-aldolas (FruA) och D-tagatos-1,6-bisfosfat-aldolas (TagA).
De stereoselektiva aldolreaktionerna hos dessa fyra aldolaser kompletterar varandra. Teoretiskt sett kan en uppsättning bestående av fyra ketoser produceras om man använder DHAP som givare och samma aldehyd som mottagare ( Gustavo, 2000 ).
Därför är DHAP-beroende aldolaser utmärkt lämpade för syntes av olika sällsynta sockerarter (inklusive D-allulos, D-sorbos, D-tagatos och L-fruktos) på grund av sin unika stereoselektivitet ( Figur 5 ; Brovetto et al., 2011 ; Dai et al., 2021
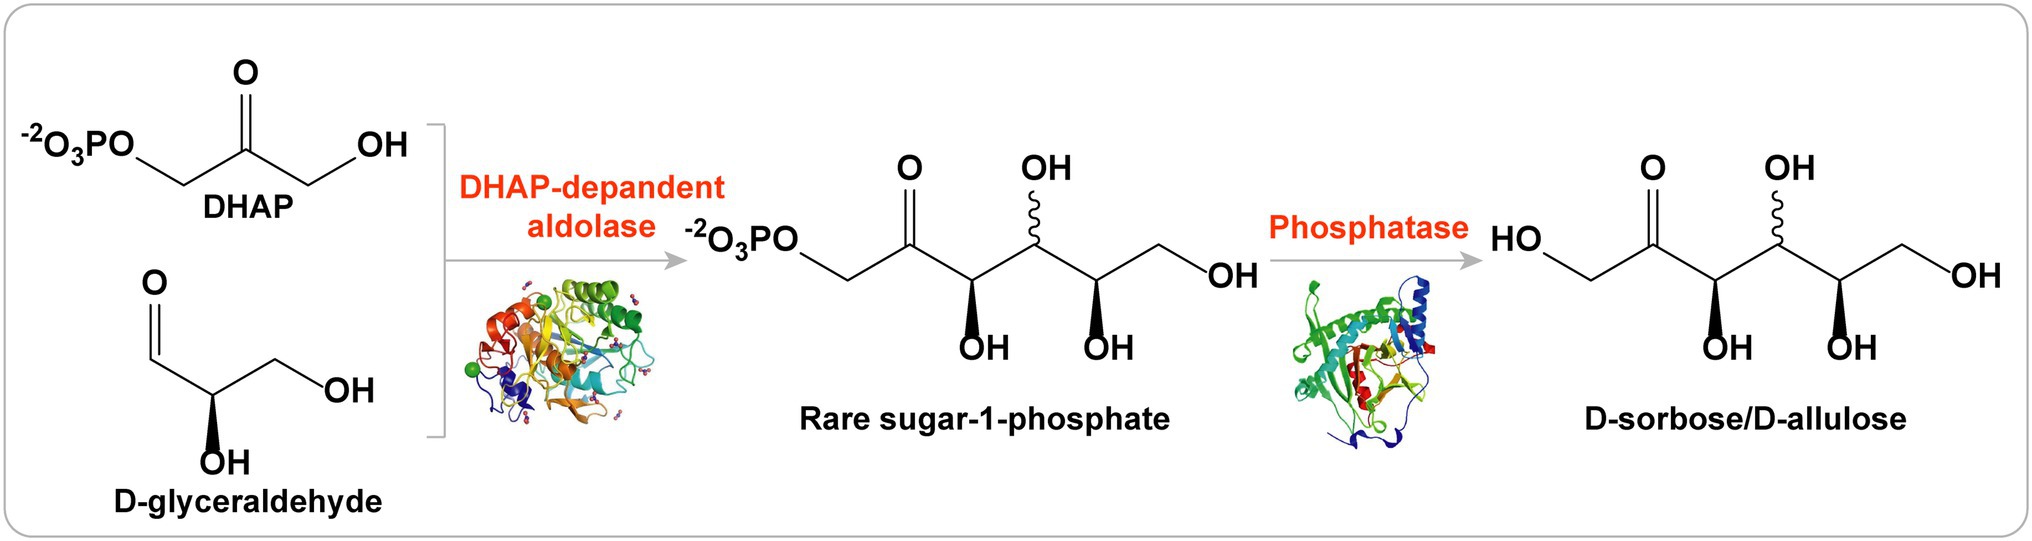
Figur 5 . Strategi med DHAP-beroende aldolaser för produktion av D-allulos.
Biosyntes av D-allulos med RhaD-aldolas och D-glycerinaldehyd som acceptor
En av huvudnackdelarna med strategier för DHAP-beroende aldolaser är att donorsubstratet, DHAP, är mycket dyrt och instabilt för storskalig syntes ( Schümperli et al., 2007 ).
Det finns dock många sätt att syntetisera DHAP via enzymatiska strategier. Till exempel kan DHAP framställas via dihydroxiaceton (DHA), glycerol eller glycerol-3-fosfat, eller via metaboliska vägar från en billig råvara såsom glukos eller glycerol ( Figur 6 ; Sánchez-Moreno et al., 2004 ; Li et al., 2012 ; 2015a ; Wei et al., 2015 ; Yang et al., 2015 ; 2016 ).
I genetiskt modifierad E. coli användes glukos som kolkälla för den RhaD-katalyserade aldolreaktionen för syntes av sällsynta sockerarter (D-allulos och D-sorbos), och D-glycerinaldehyd tillsattes kontinuerligt till mediet. Efter optimering av fermenteringsförhållandena var det isolerade utbytet av D-allulos och D-sorbos 0,21 mol/mol D-glycerinaldehyd ( Wei et al., 2015 ). D-allulos och D-sorbos producerades i en GRAS-stam av C. glutamicum med glukos och D-glycerinaldehyd som råmaterial. Rekombinanta C. glutamicum-stammar som bar på RhaD och fruktos-1-fosfatas (YqaB) visade sig ackumulera 19,5 g/l D-sorbos och 13,4 g/l D-allulos vid fed-batchfermentering ( Yang et al., 2015 ). Dessutom producerades D-allulos och D-sorbos i en rekombinant E. coli-stam som överuttrycker RhaD och YqaB genom fermentering av glycerol. Efter 15 timmars fermentering bestämdes koncentrationen av D-sorbos (1,6 g/l) och D-allulos (1,23 g/l) i supernatanten ( Li et al., 2015a ). Nyligen konstruerade vår grupp ett effektivt system för helcellskaskadsyntes av D-sorbos och D-allulos från glycerol och D-glycerinaldehyd, vilket vid batchbiotransformering resulterade i 15,3 g/l D-sorbos och 6,4 g/l D-allulos ( Chen et al., 2020a ).
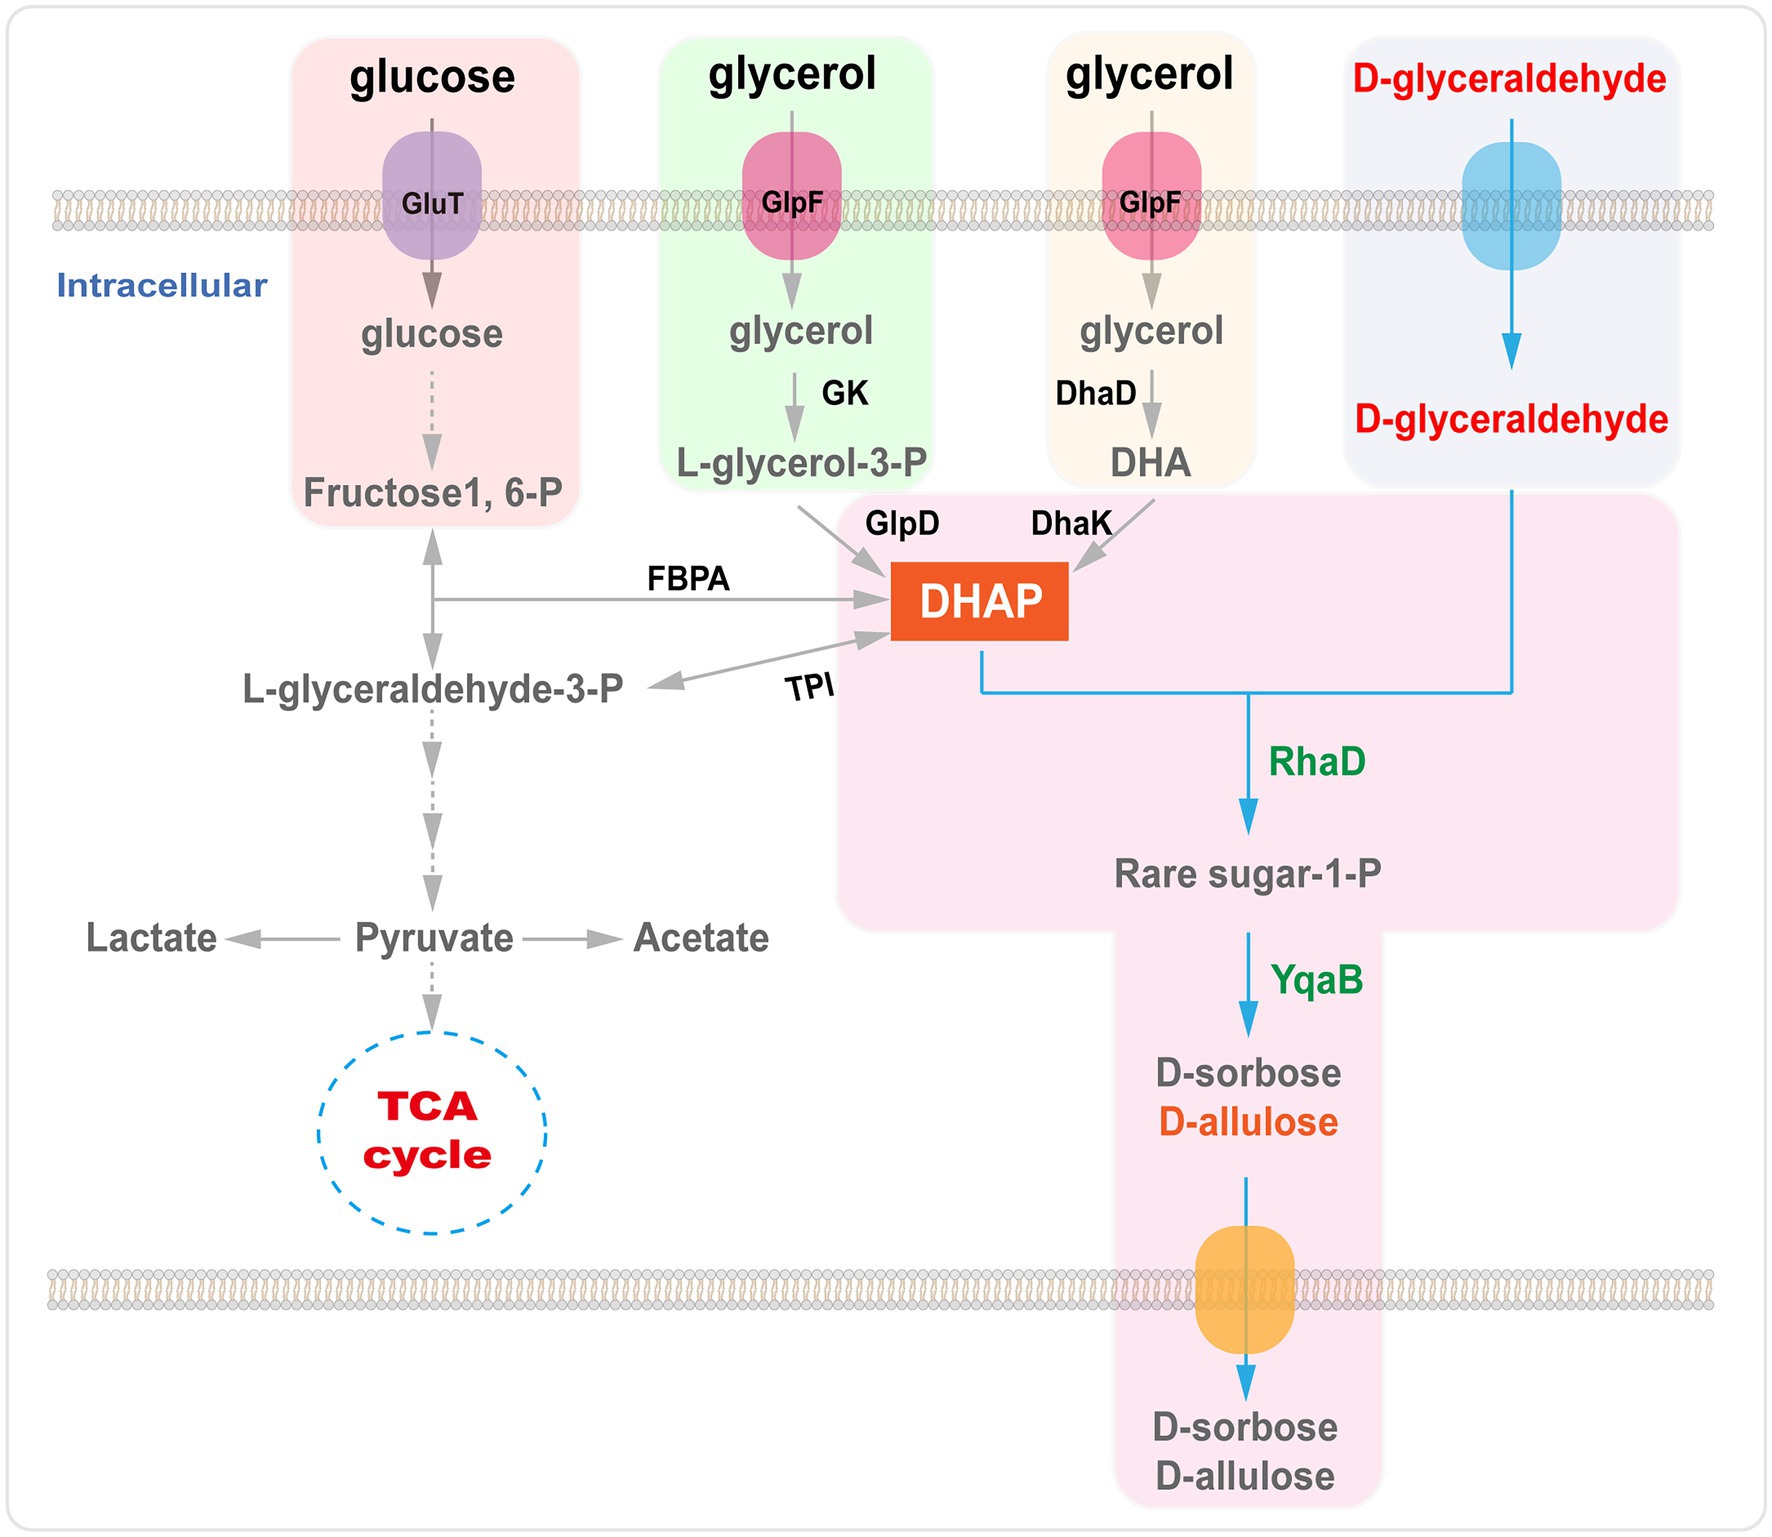
Figur 6. Biosyntes av D-allulos med RhaD-aldolas från glycerol eller glukos. GlpF, glyceroltransportör; GK, glycerolkinas; GlpD, glycerol-3-fosfatdehydrogenas; DhaD, glyceroldehydrogenas; DhaK, dihydroxiacetonkinaser; FBPA, fruktos-1,6-bisfosfat-aldolas; TPI, triosfosfatisomeras; RhaD, L-ramnulos-1-fosfat-aldolas; YqaB, fruktos-1-fosfatas.
Biosyntes av D-allulos från glycerol som enda substrat
En mikroorganismplattform baserad på RhaD-aldolas för syntes av D-allulos skulle vara lovande för storskalig produktion. Den största utmaningen är den höga kostnaden för donorsubstratet DHAP och acceptormolekylen D-glyceraldehyd. Lyckligtvis löstes problemet med DHAP-ackumulering genom användning av den billiga industriella biprodukten glycerol som en ”grön” kolkälla. Nästa fråga är därför att identifiera ett nytt enzym som omvandlar det lågvärdiga glycerolet till D-glyceraldehyd. Det krävs ett glyceroldehydrogenas eller ett glyceroloxidas som effektivt kan katalysera glycerolet till D-glyceraldehyd.
För att lösa detta problem skapade vår grupp en plattform för helcellskaskadsyntes av D-sorbos och D-allulos med användning av glycerol som enda substrat. I detta system (Figur 7) genereras donorsubstratet, DHAP, via glycerolassimilationsvägen, och endogent DHAP produceras genom överuttryck av glycerolkinas (GK) och glycerol-3-fosfatoxidas (GPO). Acceptorn D-glyceraldehyd produceras direkt från glycerol av alditoloxidas (AldOS.coe) från Streptomyces coelicolor A3. Därefter katalyserar RhaD aldolreaktionen mellan DHAP och D-glyceraldehyd, vilket ger motsvarande ketos-1-fosfat. Slutligen erhålls D-sorbos och D-allulos genom att fosfatgruppen avlägsnas med YqaB-fosfatas. Med detta system ökade produktionsutbytet av D-sorbos och D-allulos med cirka 1,7 respektive 1,2 gånger efter överuttryck av peroxidaskatalysatorer (Prx02 eller KatE) för att eliminera de skadliga effekterna av H₂O₂. Totalt erhölls 7,9 g/l D-sorbos och D-allulos från glycerol, med en total omvandlingsgrad på 17,7 % (Chen et al., 2020b).
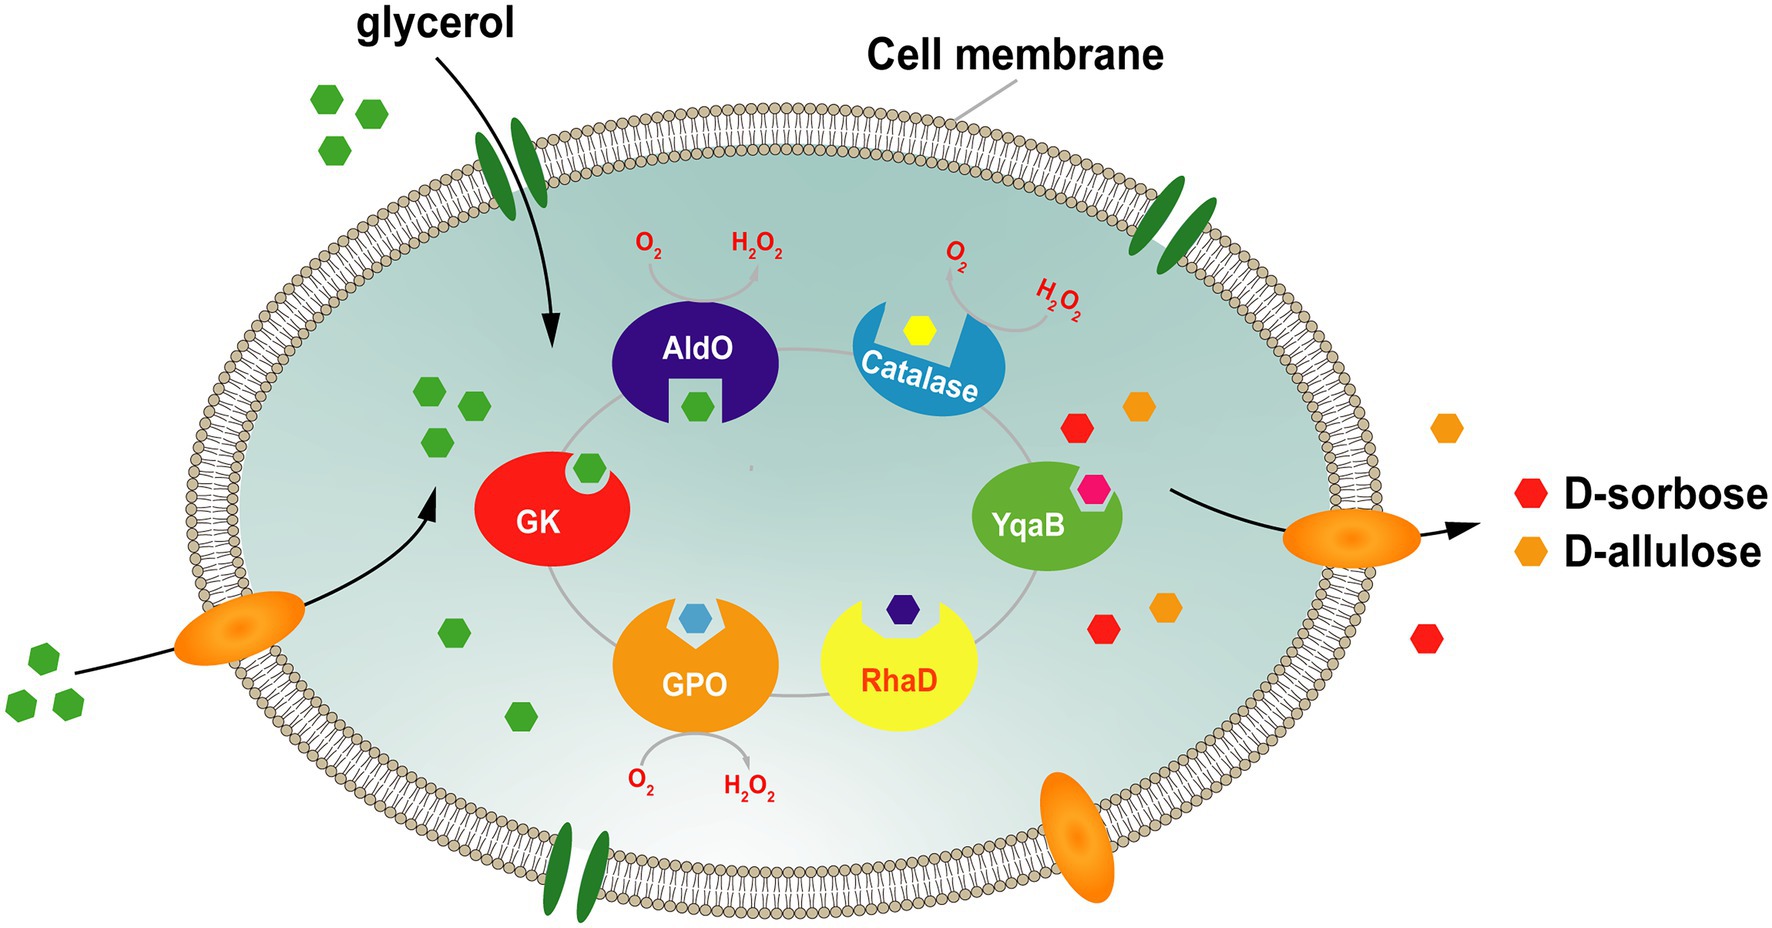
Figur 7. Strategi för helcellssyntes av D-sorbos och D-allulos från glycerol. GK, glycerolkinas; GPO, glyceroloxidas; AldO, alditoloxidas; RhaD, L-ramnulos-1-fosfat-aldolas; YqaB, fruktos-1-fosfatas.
Vår grupp har även konstruerat ett enzymatiskt system i ett steg för syntes av D-sorbos och D-allulos från glycerol som enda kolkälla (Figur 8). Här införde vi det sura fosfataset PhoN från Shigella flexneri (PhoN-Sf) i systemet i stället för GK och YqaB, vilket katalyserade glycerolfosforyleringsreaktionen i det första steget och hjälpte till att återvinna fosfatet från ketos-1-fosfat i det sista steget, vilket gav fria sällsynta sockerarter. Vi introducerade AldOS.coe i ovanstående multienzymkaskad för att syntetisera D-sorbos och D-allulos enbart från lättillgängligt glycerol. Slutligen erhölls 14,8 g/L D-sorbos och D-allulos från glycerol (Li et al., 2020b). Ovanstående strategi representerar en mycket användbar och kostnadseffektiv metod för produktion av även andra sällsynta sockerarter. Sammanfattningsvis är biosyntesen av D-allulos genom fermentering baserad på DHAP-beroende aldolaser mycket lovande. Det vore mer lönsamt att bygga en cellfabrik för syntes av D-allulos baserad på en DHAP-beroende aldolasstrategi.
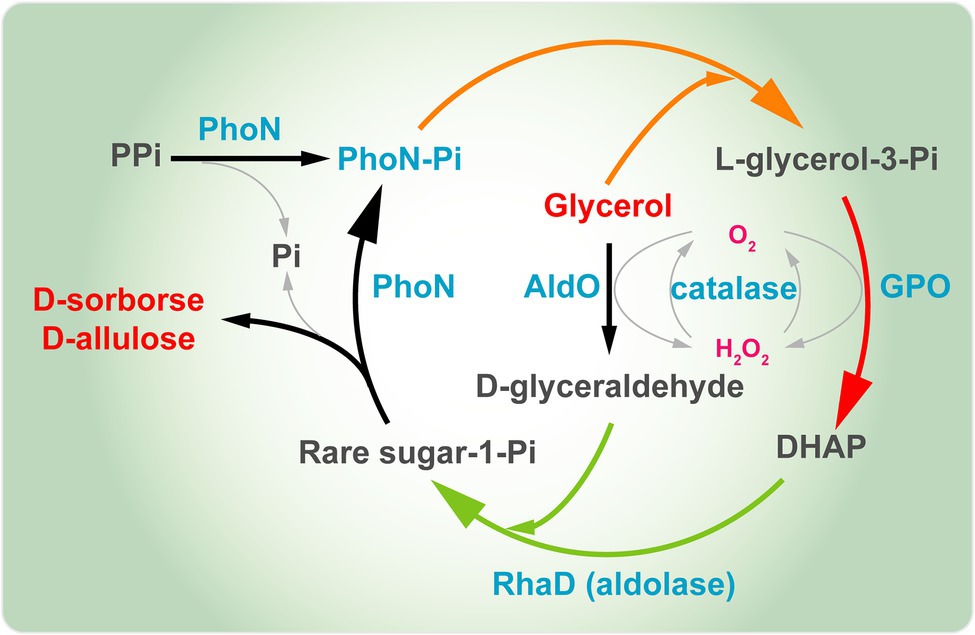
Figur 8. Multienzymsyntes av D-sorbos och D-allulos från glycerol. PhoN, surt fosfatas; GPO, glyceroloxidas; AldO, alditoloxidas; RhaD, L-ramnulos-1-fosfat-aldolas; DHAP, dihydroxiacetonfosfat.
Termodynamiskt styrd produktion av D-allulos baserad på en fosforylerings-defosforyleringsstrategi
Faktum är att ovanstående strategier fortfarande inte kan möta livsmedelsindustrins efterfrågan på D-allulos. Därför är det intressant att utveckla en ny strategi för produktion av D-allulos som innebär en mycket effektiv och billig grön bioproduktion. Nyligen skapade You et al. ett in vitro syntetiskt enzymatiskt biosystem för produktion av D-allulos från billig stärkelse, baserat på en ”termodynamiskt styrd strategi” (Figur 9). Detta in vitro-biosystem omfattade fem huvudenzymer, där reaktionerna sker enligt följande: (1) maltodextrin (en stärkelsebiprodukt) fosforylerades till glukos-1-fosfat (G1P) med hjälp av α-glukanfosforylas (αGP), med fosfat som kosubstrat. (2) G1P omvandlades till glukos-6-fosfat (G6P), katalyserat av fosfoglukomutas (PGM). (3) G6P omvandlades till fruktos-6-fosfat (F6P), katalyserat av fosfoglukos-isomeras (PGI). (4) Epimerisering av F6P resulterade i produktion av D-allulos-6-fosfat (A6P), vilket katalyserades av D-allulos-6-fosfat-3-epimeras (A6PE). (5) Defosforylering av A6P resulterade i produktion av D-allulos och fosfat, vilket katalyserades av D-allulos-6-fosfat-fosfatas (A6PP). Dessutom tillsattes de övriga fyra hjälpenzymerna [isoamylas (IA), 4-α-glukanotransferas (4GT), polyfosfat-glukokinas (PPGK) och glukos-isomeras (GI)] vid olika tidpunkter till reaktionssystemet för att uppnå fullständig användning av maltodextrin för produktion av D-allulos. I detta biosystem är Gibbs fria energi för defosforylering av A6P till D-allulos -15,5 kJ/mol, vilket är irreversibelt, vilket indikerar att defosforyleringssteget som krävs för D-allulosproduktion är termodynamiskt gynnsamt och enkelriktat, vilket driver hela reaktionen mot fullbordan. Efter optimering av reaktionsförhållandena uppnådde produktionsutbytet av D-allulos från 10 och 50 g/l stärkelse 88,2 % respektive 79,2 % (Li et al., 2021). Sammantaget erbjuder denna termodynamiskt styrda strategi ett lovande alternativ för kostnadseffektiv produktion av D-allulos. Eftersom systemet innehåller flera enzymer och enzymreningen är besvärlig, kan ovanstående strategi fortfarande inte tillgodose behoven för industrialisering.
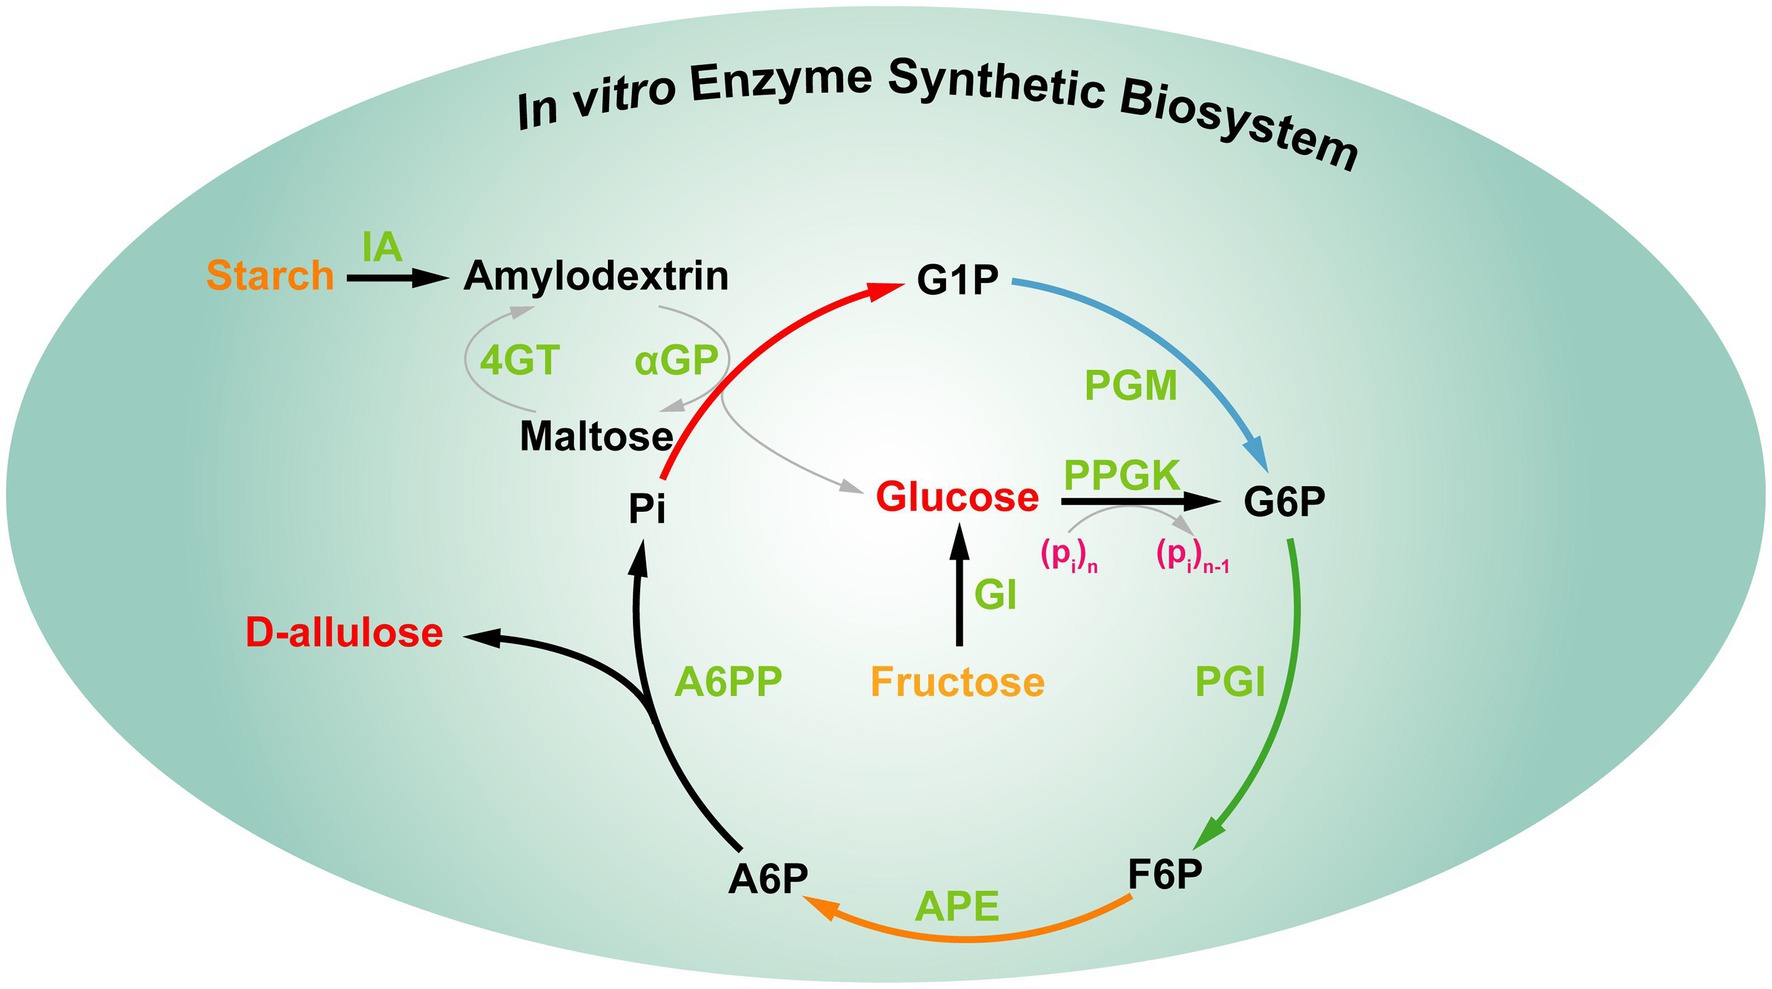
Figur 9. In vitro multienzymsyntes av D-allulos från stärkelse. IA, isoamylas; 4GT, 4-α-glukanotransferas; αGP, α-glukanfosforylas; PGM, fosfoglukomutas; PPGK, polyfosfat-glukokinas; PGI, fosfoglukos-isomeras; GI, glukos-isomeras; APE, D-allulos-6-fosfat-3-epimeras; A6PP, D-allulos-6-fosfat-fosfatas; G1P, glukos-1-fosfat; G6P, glukos-6-fosfat; F6P, fruktos-6-fosfat; A6P, D-allulos-6-fosfat.
Sammanfattning och framtidsutsikter
Den vanligaste metoden för produktion av D-allulos bygger på Izumoring-strategin, som begränsas av den termodynamiska jämvikten, vilket resulterar i låg omvandlingsgrad och relativt höga synteskostnader.
Därför är det nödvändigt att upptäcka nya och robusta enzymer i DTEas-familjen. Vidare kan strategier för riktad evolution (Zhang et al., 2016a; Zhu et al., 2019a) eller enzymimmobilisering (Ran et al., 2019; Wong et al., 2020) användas.
Att förbättra den katalytiska prestandan hos DTEas kommer att vara mycket användbart. För den DHAP-beroende aldolasstrategin produceras D-allulos och D-sorbos samtidigt med RhaD, med D-glyceraldehyd som acceptor. För att förbättra aldolasernas stereoselektivitet används flera avancerade tekniker och metoder, inklusive riktad evolution (d’Oelsnitz and Ellington, 2018; Shepelin et al., 2018; Currin et al., 2021), höggenomströmningsscreening (Ung et al., 2018; Rienzo et al., 2021) och rationell design (Damborsky and Brezovsky, 2014; Windle et al., 2014; Kim et al., 2020).
Det är uppenbart att den termodynamiskt styrda strategin är en lovande metod för produktion av D-allulos. En framtida riktning vore att bygga en mikrobiell cellfabrik som använder en sådan metod. Flera metabola verktyg, som CRISPR/Cas9, kan bidra till industriell produktion av D-allulos (Wu et al., 2019; Nishida and Kondo, 2021), självmontering (Liu et al., 2019; Lange and Polizzi, 2021) och dynamisk reglering (Hartline et al., 2021; Zhu et al., 2021).
Förhoppningsvis kommer D-allulos att bli ekonomiskt överkomligt för vanliga konsumenter inom en snar framtid.
Författarnas bidrag
ZC genomförde databearbetning och skrev det ursprungliga utkastet. X-DG bidrog till visualisering, undersökning och handledning. ZL ansvarade för korrekturläsning och redigering. Alla författare har bidragit till artikeln och godkänt den inskickade versionen.
Finansiering
Detta arbete stöddes av National Natural Science Foundation of China (nr: 32171475, 31971216), China Postdoctoral Science Foundation (nr: 2021M691285), Shandong Provincial Major Science and Technology Innovation Project (nr: 2019JZZY011006), Natural Science Foundation of Jiangsu Province (nr: BK20210465) samt 111 Project (nr: 111-2-06).
Intressekonflikt
Författarna förklarar att forskningen utfördes i avsaknad av några kommersiella eller ekonomiska förhållanden som skulle kunna betraktas som en potentiell intressekonflikt.
Förlagsnotering
Alla påståenden i denna artikel är endast författarnas egna och återspeglar inte nödvändigtvis deras tillhörande organisationers, eller förlagets, redaktörernas eller granskarnas uppfattning. Eventuella produkter som kan utvärderas i denna artikel eller påståenden som görs av dess tillverkare garanteras eller stöds inte av förlaget.
Tack
Vi tackar Zhou Xiaoman (Jiangnan University) för illustrationen.
Referenser
Basu, A., Basu, R., Shah, P., Vella, A., Johnson, C. M., Jensen, M., et al. (2001). Type 2 diabetes impairs splanchnic uptake of glucose but does not alter intestinal glucose absorption during enteral glucose feeding: additional evidence for a defect in hepatic glucokinase activity. Diabetes 50, 1351–1362. doi: 10.2337/diabetes.50.6.1351
Bilal, M., Iqbal, H. M. N., Hu, H., Wang, W., and Zhang, X. (2018). Metabolic engineering pathways for rare sugars biosynthesis, physiological functionalities, and applications-a review. Crit. Rev. Food Sci. Nutr. 58, 2768–2778. doi: 10.1080/10408398.2017.1341385
Bosshart, A., Panke, S., and Bechtold, M. (2013). Systematic optimization of interface interactions increases the thermostability of a multimeric enzyme. Angew. Chem. Int. Ed. Engl. 52, 9673–9676. doi: 10.1002/anie.201304141
Brovetto, M., Gamenara, D., Méndez, P. S., and Seoane, G. A. (2011). C-C bond-forming lyases in organic synthesis. Chem. Rev. 111, 4346–4403. doi: 10.1021/cr100299p
Castro-Muñoz, R., Correa-Delgado, M., Córdova-Almeida, R., Lara-Nava, D., Chávez-Muñoz, M., Velásquez-Chávez, V. F., et al. (2022). Natural sweeteners: sources, extraction and current uses in foods and food industries. Food Chem. 370:130991. doi: 10.1016/j.foodchem.2021.130991
Chen, J., Huang, W., Zhang, T., Lu, M., and Jiang, B. (2019). Anti-obesity potential of rare sugar D-psicose by regulating lipid metabolism in rats. Food Funct. 10, 2417–2425. doi: 10.1039/c8fo01089g
Chen, Z., Li, Z., Li, F., Wang, N., and Gao, X.-D. (2020b). Characterization of alditol oxidase from Streptomyces coelicolor and its application in the production of rare sugars. Bioorg. Med. Chem. 28:115464. doi: 10.1016/j.bmc.2020.115464
Chen, Z., Li, Z., Li, F., Wang, M., Wang, N., and Gao, X.-D. (2020a). Cascade synthesis of rare ketoses by whole cells based on L-rhamnulose-1-phosphate aldolase. Enzym. Microb. Technol. 133:109456. doi: 10.1016/j.enzmictec.2019.109456
Chen, X., Wang, W., Xu, J., Yuan, Z., Yuan, T., Zhang, Y., et al. (2017). Production of D-psicose from D-glucose by co-expression of D-psicose 3-epimerase and xylose isomerase. Enzym. Microb. Technol. 105, 18–23. doi: 10.1016/j.enzmictec.2017.06.003
Chen, J., Zhu, Y., Fu, G., Song, Y., Jin, Z., Sun, Y., et al. (2016). High-level intra- and extra-cellular production of D-psicose 3-epimerase via a modified xylose-inducible expression system in Bacillus subtilis. J. Ind. Microbiol. Biotechnol. 43, 1577–1591. doi: 10.1007/s10295-016-1819-6
Chung, Y. M., Hyun Lee, J., Youl Kim, D., Hwang, S. H., Hong, Y. H., Kim, S. B., et al. (2012). Dietary D-psicose reduced visceral fat mass in high-fat diet-induced obese rats. J. Food Sci. 77, H53–H58. doi: 10.1111/j.1750-3841.2011.02571.x
Currin, A., Parker, S., Robinson, C. J., Takano, E., Scrutton, N. S., and Breitling, R. (2021). The evolving art of creating genetic diversity: From directed evolution to synthetic biology. Biotechnol. Adv. 50:107762. doi: 10.1016/j.biotechadv.2021.107762
Dai, Y., Zhang, J., Jiang, B., Zhang, T., and Chen, J. (2021). New strategy for rare sugars biosynthesis: Aldol reactions using dihydroxyacetone phosphate (DHAP)-dependent aldolases. Food Biosci. 44:101377. doi: 10.1016/j.fbio.2021.101377
Damborsky, J., and Brezovsky, J. (2014). Computational tools for designing and engineering enzymes. Curr. Opin. Chem. Biol. 19, 8–16. doi: 10.1016/j.cbpa.2013.12.003
d’Oelsnitz, S., and Ellington, A. (2018). Continuous directed evolution for strain and protein engineering. Curr. Opin. Biotechnol. 53, 158–163. doi: 10.1016/j.copbio.2017.12.020
Doner, L. W. (1979). Isomerization of D-fructose by base: liquid-chromatographic evaluation and the isolation of D-psicose. Carbohydr. Res. 70, 209–216. doi: 10.1016/S0008-6215(00)87101-3
Granström, T. B., Takata, G., Tokuda, M., and Izumori, K. (2004). Izumoring: A novel and complete strategy for bioproduction of rare sugars. J. Biosci. Bioeng. 97, 89–94. doi: 10.1016/S1389-1723(04)70173-5
Grassi, B., Onetto, M. T., Zapata, Y., Jofré, P., and Echeverría, G. (2021). Lower versus standard sucrose dose for treating hypoglycemia in patients with type 1 diabetes mellitus in therapy with predictive low glucose suspend (PLGS) augmented insulin pumps: a randomized crossover trial in Santiago, Chile. Diabetes Metab. Syndr. Clin. Res. Rev. 15, 695–701. doi: 10.1016/j.dsx.2021.03.017
Guerrero-Wyss, M., Durán Agüero, S., och Angarita Dávila, L. (2018). D-Tagatose is a promising sweetener to control glycaemia: A new functional food. Biomed. Res. Int. 2018:8718053. doi: 10.1155/2018/8718053
Gustavo, S. (2000). Enzymatic C-C bond-forming reactions in organic synthesis. Curr. Org. Chem. 4, 283–304. doi: 10.2174/1385272003376283
Han, Y., Han, H. J., Kim, A. H., Choi, J. Y., Cho, S. J., Park, Y. B., et al. (2016). D-Allulose supplementation normalized the body weight and fat-pad mass in diet-induced obese mice via the regulation of lipid metabolism under isocaloric fed condition. Mol. Nutr. Food Res. 60, 1695–1706. doi: 10.1002/mnfr.201500771
Hartline, C. J., Schmitz, A. C., Han, Y., och Zhang, F. (2021). Dynamic control in metabolic engineering: theories, tools, and applications. Metab. Eng. 63, 126–140. doi: 10.1016/j.ymben.2020.08.015
Hayakawa, M., Hira, T., Nakamura, M., Iida, T., Kishimoto, Y., och Hara, H. (2018). Secretion of GLP-1 but not GIP is potently stimulated by luminal D-Allulose (D-Psicose) in rats. Biochem. Biophys. Res. Commun. 496, 898–903. doi: 10.1016/j.bbrc.2018.01.128
Hayashi, N., Iida, T., Yamada, T., Okuma, K., Takehara, I., Yamamoto, T., et al. (2010). Study on the postprandial blood glucose suppression effect of D-psicose in borderline diabetes and the safety of long-term ingestion by normal human subjects. Biosci. Biotechnol. Biochem. 74, 510–519. doi: 10.1271/bbb.90707
He, W., Jiang, B., Mu, W., och Zhang, T. (2016). Production of D-Allulose with D-psicose 3-epimerase expressed and displayed on the surface of Bacillus subtilis spores. J. Agric. Food Chem. 64, 7201–7207. doi: 10.1021/acs.jafc.6b03347
Herling, A. W., Burger, H.-J., Schwab, D., Hemmerle, H., Below, P., och Schubert, G. (1998). Pharmacodynamic profile of a novel inhibitor of the hepatic glucose-6-phosphatase system. Am. J. Phys. 274, G1087–G1093. doi: 10.2337/diabetes.47.5.85
Hoshikawa, H., Kamitori, K., Indo, K., Mori, T., Kamata, M., Takahashi, T., et al. (2018). Combined treatment with D-allose, docetaxel and radiation inhibits the tumor growth in an in vivo model of head and neck cancer. Oncol. Lett. 15, 3422–3428. doi: 10.3892/ol.2018.7787
Hossain, A., Yamaguchi, F., Matsuo, T., Tsukamoto, I., Toyoda, Y., Ogawa, M., et al. (2015). Rare sugar D-allulose: potential role and therapeutic monitoring in maintaining obesity and type 2 diabetes mellitus. Pharmacol. Therapeut. 155, 49–59. doi: 10.1016/j.pharmthera.2015.08.004
Iida, T., Kishimoto, Y., Yoshikawa, Y., Hayashi, N., Okuma, K., Tohi, M., et al. (2008). Acute D-psicose administration decreases the glycemic responses to an oral maltodextrin tolerance test in normal adults. J. Nutr. Sci. Vitaminol. 54, 511–514. doi: 10.3177/jnsv.54.511
Itoh, H., Sato, T., och Izumori, K. (1995). Preparation of D-psicose from D-fructose by immobilized D-tagatose 3-epimerase. J. Ferment. Bioeng. 79, 184–185. doi: 10.1016/0922-338X(95)94091-5
Iturrate, L., Sánchez-Moreno, I., Oroz-Guinea, I., Pérez-Gil, J., och García-Junceda, E. (2010). Preparation and characterization of a bifunctional aldolase/kinase enzyme: a more efficient biocatalyst for C-C bond formation. Chemistry 16, 4018–4030. doi: 10.1002/chem.200903096
Iwasaki, Y., Sendo, M., Dezaki, K., Hira, T., Sato, T., Nakata, M., et al. (2018). GLP-1 release and vagal afferent activation mediate the beneficial metabolic and chronotherapeutic effects of D-allulose. Nat. Commun. 9:113. doi: 10.1038/s41467-017-02488-y
Izumori, K. (2006). Izumoring: a strategy for bioproduction of all hexoses. J. Biotechnol. 124, 717–722. doi: 10.1016/j.jbiotec.2006.04.016
Jia, M., Mu, W., Chu, F., Zhang, X., Jiang, B., Zhou, L. L., et al. (2014). A D-psicose 3-epimerase with neutral pH optimum from Clostridium bolteae for D-psicose production: cloning, expression, purification, and characterization. Appl. Microbiol. Biotechnol. 98, 717–725. doi: 10.1007/s00253-013-4924-8
Kanasaki, A., Jiang, Z., Mizokami, T., Shirouchi, B., Iida, T., Nagata, Y., et al. (2019). D-allulose alters serum cholesterol levels partly via reducing serum pcsk9 levels in hamsters. Atherosclerosis 287:e201. doi: 10.1016/j.atherosclerosis.2019.06.611
Khan, S. A., Verma, P., Ur Rahman, L., och Parasharami, V. A. (2021). ”Chapter 13 – Exploration of biotechnological studies in low-calorie sweetener Stevia rebaudiana: present and future prospects,” i Medicinal and Aromatic Plants: Expanding Their Horizons Through Omics. eds. T. Aftab och K. R. Hakeem (Academic Press), 289–324.
Kim, H.-J., Hyun, E.-K., Kim, Y.-S., Lee, Y.-J., och Oh, D.-K. (2006). Characterization of an agrobacterium tumefaciens D-psicose 3-epimerase that converts D-fructose to D-psicose. Appl. Environ. Microbiol. 72, 981–985. doi: 10.1128/AEM.72.2.981-985.2006
Kim, S.-E., Kim, S. J., Kim, H.-J., och Sung, M.-K. (2017). D-Psicose, a sugar substitute, suppresses body fat deposition by altering networks of inflammatory response and lipid metabolism in C57BL/6J-ob/ob mice. J. Funct. Foods 28, 265–274. doi: 10.1016/j.jff.2016.11.029
Kim, T., Stogios, P. J., Khusnutdinova, A. N., Nemr, K., Skarina, T., Flick, R., et al. (2020). Rational engineering of 2-deoxyribose-5-phosphate aldolases for the biosynthesis of (R)-1,3-butanediol. J. Biol. Chem. 295, 597–609. doi: 10.1074/jbc.RA119.011363
Kimura, T., Kanasaki, A., Hayashi, N., Yamada, T., Iida, T., Nagata, Y., et al. (2017). D-Allulose enhances postprandial fat oxidation in healthy humans. Nutrition 43–44, 16–20. doi: 10.1016/j.nut.2017.06.007
Lai, W. T., Khong, N. M. H., Lim, S. S., Hee, Y. Y., Sim, B. I., Lau, K. Y., et al. (2017). A review: modified agricultural by-products for the development and fortification of food products and nutraceuticals. Trends Food Sci. Technol. 59, 148–160. doi: 10.1016/j.tifs.2016.11.014
Lange, O. J., och Polizzi, K. M. (2021). Click it or stick it: covalent and non-covalent methods for protein-self assembly. Curr. Opin. Syst. Biol. 28:100374. doi: 10.1016/j.coisb.2021.100374
Lee, D., Han, Y., Kwon, E. Y., och Choi, M. S. (2020). D-allulose ameliorates metabolic dysfunction in C57BL/KsJ-db/db mice. Molecules 25:3656. doi: 10.3390/molecules25163656
Li, A., Cai, L., Chen, Z., Wang, M., Wang, N., Nakanishi, H., et al. (2017). Recent advances in the synthesis of rare sugars using DHAP-dependent aldolases. Carbohydr. Res. 452, 108–115. doi: 10.1016/j.carres.2017.10.009
Li, Z., Cai, L., Wei, M., och Wang, P. G. (2012). One-pot four-enzyme synthesis of ketoses with fructose 1,6-bisphosphate aldolases from Staphylococcus carnosus and rabbit muscle. Carbohydr. Res. 357, 143–146. doi: 10.1016/j.carres.2012.05.007
Li, Z., He, B., Gao, Y., och Cai, L. (2015a). Synthesis of D-sorbose and D-psicose by recombinant Escherichia coli. J. Carbohydr. Chem. 34, 349–357. doi: 10.1080/07328303.2015.1068794
Li, Z., Li, F., Cai, L., Chen, Z., Qin, L., och Gao, X.-D. (2020b). One-pot multienzyme synthesis of rare ketoses from glycerol. J. Agric. Food Chem. 68, 1347–1353. doi: 10.1021/acs.jafc.9b06748
Li, Z., Li, Y., Duan, S., Liu, J., Yuan, P., Nakanishi, H., et al. (2015b). Bioconversion of D-glucose to D-psicose with immobilized D-xylose isomerase and D-psicose 3-epimerase on Saccharomyces cerevisiae spores. J. Ind. Microbiol. 42, 1117–1128. doi: 10.1007/s10295-015-1631-8
Li, C., Lin, J., Guo, Q., Zhang, C., Du, K., Lin, H., et al. (2018). D-Psicose 3-epimerase secretory overexpression, immobilization, and D-psicose biotransformation, separation and crystallization. J. Chem. Technol. Biotechnol. 93, 350–357. doi: 10.1002/jctb.5360
Li, Y., Shi, T., Han, P., och You, C. (2021). Thermodynamics-driven production of value-added D-allulose from inexpensive starch by an in vitro enzymatic synthetic biosystem. ACS Catal. 11, 5088–5099. doi: 10.1021/acscatal.0c05718
Li, W., Zhu, Y., Jiang, X., Zhang, W., Guang, C., och Mu, W. (2020a). One-pot production of D-allulose from inulin by a novel identified thermostable exoinulinase from Aspergillus piperis and Dorea sp. D-allulose 3-epimerase. Process Biochem. 99, 87–95. doi: 10.1016/j.procbio.2020.08.021
Lim, B. C., Kim, H. J., och Oh, D. K. (2009). A stable immobilized D-psicose 3-epimerase for the production of D-psicose in the presence of borate. Process Biochem. 44, 822–828. doi: 10.1016/j.procbio.2009.03.017
Liu, S., Ammirati, M. J., Song, X., Knafels, J. D., Zhang, J., Greasley, S. E., et al. (2012). Insights into mechanism of glucokinase activation: observation of multiple distinct protein conformations. J. Biol. Chem. 287, 13598–13610. doi: 10.1074/jbc.M111.274126
Liu, Z., Cao, S., Liu, M., Kang, W., och Xia, J. (2019). Self-assembled multienzyme nanostructures on synthetic protein scaffolds. ACS Nano 13, 11343–11352. doi: 10.1021/acsnano.9b04554
Lloyd, D. J., St Jean, D. J., Kurzeja, R. J., Wahl, R. C., Michelsen, K., Cupples, R., et al. (2013). Antidiabetic effects of glucokinase regulatory protein small-molecule disruptors. Nature 504, 437–440. doi: 10.1038/nature12724
Matsuo, T., och Izumori, K. (2009). D-Psicose inhibits intestinal alpha-glucosidase and suppresses the glycemic response after ingestion of carbohydrates in rats. J. Clin. Biochem. Nutr. 45, 202–206. doi: 10.3164/jcbn.09-36
Matsuo, T., Suzuki, H., Hashiguchi, M., och Izumori, K. (2002). D-psicose is a rare sugar that provides no energy to growing rats. J. Nutr. Sci. Vitaminol. 48, 77–80. doi: 10.3177/jnsv.48.77
McDonald, E. J. (1967). A new synthesis of D-psicose (D-ribo-hexulose). Carbohydr. Res. 5, 106–108. doi: 10.1016/0008-6215(67)85014-6
Moller, D., och Berger, J. (2003). Role of PPARs in the regulation of obesity-related insulin sensitivity and inflammation. Int. J. Obes. 27, S17–S21. doi: 10.1038/sj.ijo.0802494
Nagata, Y., Kanasaki, A., Tamaru, S., och Tanaka, K. (2015). D-psicose, an epimer of D-fructose, favorably alters lipid metabolism in Sprague–Dawley rats. J. Agric. Food Chem. 63, 3168–3176. doi: 10.1021/jf502535p
Narayan Patel, S., Singh, V., Sharma, M., Sangwan, R. S., Singhal, N. K., och Singh, S. P. (2018). Development of a thermo-stable and recyclable magnetic nanobiocatalyst for bioprocessing of fruit processing residues and D-allulose synthesis. Bioresour. Technol. 247, 633–639. doi: 10.1016/j.biortech.2017.09.112
Natsume, Y., Yamada, T., Iida, T., Ozaki, N., Gou, Y., Oshida, Y., et al. (2021). Investigation of D-allulose effects on high-sucrose diet-induced insulin resistance via hyperinsulinemic-euglycemic clamps in rats. Heliyon 7:e08013. doi: 10.1016/j.heliyon.2021.e08013
Nishida, K., och Kondo, A. (2021). CRISPR-derived genome editing technologies for metabolic engineering. Metab. Eng. 63, 141–147. doi: 10.1016/j.ymben.2020.12.002
Ochiai, M., Onishi, K., Yamada, T., Iida, T., och Matsuo, T. (2014). D-psicose increases energy expenditure and decreases body fat accumulation in rats fed a high-sucrose diet. Int. J. Food Sci. Nutr. 65, 245–250. doi: 10.3109/09637486.2013.845653
Park, S. Y., och Yoon, K. Y. (2015). Enzymatic production of soluble dietary fiber from the cellulose fraction of Chinese cabbage waste and potential use as a functional food source. Food Sci. Biotechnol. 24, 529–535. doi: 10.1007/s10068-015-0069-0
Pfefferkorn, J. A. (2013). Strategies for the design of hepatoselective glucokinase activators to treat type 2 diabetes. Expert. Opin. Drug. Discov. 8, 319–330. doi: 10.1517/17460441.2013.748744
Qi, Z., Zhu, Z., Wang, J.-W., Li, S., Guo, Q., Xu, P., et al. (2017). Biochemical analysis and the preliminary crystallographic characterization of D-tagatose 3-epimerase from Rhodobacter sphaeroides. Microb. Cell Factories 16:193. doi: 10.1186/s12934-017-0808-4
Ran, G., Tan, D., Zhao, J., Fan, F., Zhang, Q., Wu, X., et al. (2019). Functionalized polyhydroxyalkanoate nano-beads as a stable biocatalyst for cost-effective production of the rare sugar D-allulose. Bioresour. Technol. 289:121673. doi: 10.1016/j.biortech.2019.121673
Rienzo, M., Jackson, S. J., Chao, L. K., Leaf, T., Schmidt, T. J., Navidi, A. H., et al. (2021). High-throughput screening for high-efficiency small-molecule biosynthesis. Metab. Eng. 63, 102–125. doi: 10.1016/j.ymben.2020.09.004
Sánchez-Moreno, I., Francisco García-García, J., Bastida, A., och García-Junceda, E. (2004). Multienzyme system for dihydroxyacetone phosphate-dependent aldolase catalyzed C–C bond formation from dihydroxyacetone. Chem. Commun. 35, 1634–1635. doi: 10.1002/chin.200447149
Schümperli, M., Pellaux, R., och Panke, S. (2007). Chemical and enzymatic routes to dihydroxyacetone phosphate. Appl. Microbiol. Biotechnol. 75, 33–45. doi: 10.1007/s00253-007-0882-3
Shepelin, D., Hansen, A. S. L., Lennen, R., Luo, H., och Herrgård, M. J. (2018). Selecting the best: evolutionary engineering of chemical production in microbes. Genes 9:249. doi: 10.3390/genes9050249
Shintani, T., Sakoguchi, H., Yoshihara, A., Izumori, K., och Sato, M. (2017a). D-Allulose, a stereoisomer of D-fructose, extends Caenorhabditis elegans lifespan through a dietary restriction mechanism: a new candidate dietary restriction mimetic. Biochem. Biophys. Res. Commun. 493, 1528–1533. doi: 10.1016/j.bbrc.2017.09.147
Shintani, T., Yamada, T., Hayashi, N., Iida, T., Nagata, Y., Ozaki, N., et al. (2017b). Rare sugar syrup containing D-allulose but not high-fructose corn syrup maintains glucose tolerance and insulin sensitivity partly via hepatic glucokinase translocation in Wistar rats. J. Agric. Food Chem. 65, 2888–2894. doi: 10.1021/acs.jafc.6b05627
Song, Y., Nguyen, Q. A., Wi, S. G., Yang, J., och Bae, H. J. (2016). Strategy for dual production of bioethanol and D-psicose as value-added products from cruciferous vegetable residue. Bioresour. Technol. 223, 34–39. doi: 10.1016/j.biortech.2016.10.021
Song, Y., Oh, C., och Bae, H.-J. (2017). Simultaneous production of bioethanol and value-added D-psicose from Jerusalem artichoke (Helianthus tuberosus L.) tubers. Bioresour. Technol. 244, 1068–1072. doi: 10.1016/j.biortech.2017.08.079
Su, L., Sun, F., Liu, Z., Zhang, K., och Wu, J. (2018). Highly efficient production of clostridium cellulolyticum H10 D-psicose 3-epimerase in Bacillus subtilis and use of these cells to produce D-psicose. Microb. Cell Factories 17:188. doi: 10.1186/s12934-018-1037-1
Suna, S., Yamaguchi, F., Kimura, S., Tokuda, M., och Jitsunari, F. (2007). Preventive effect of D-psicose, one of rare ketohexoses, on di-(2-ethylhexyl) phthalate (DEHP)-induced testicular injury in rat. Toxicol. Lett. 173, 107–117. doi: 10.1016/j.toxlet.2007.06.015
Takata, M. K., Yamaguchi, F., Nakanose, K., Watanabe, Y., Hatano, N., Tsukamoto, I., m.fl. (2005). Neuroprotective effect of D-psicose on 6-hydroxydopamine-induced apoptosis in rat pheochromocytoma (PC12) cells. J. Biosci. Bioeng. 100, 511–516. doi: 10.1263/jbb.100.511
Toyoda, Y., Mori, S., Umemura, N., Futamura, N., Inoue, H., Hata, T., m.fl. (2010). Suppression of blood glucose levels by D-psicose in glucose tolerance test in diabetic rats. Jpn. Pharmacol. Ther. 65, 2888–2894. doi: 10.1021/acs.jafc.6b05627
Tseng, C.-W., Liao, C.-Y., Sun, Y., Peng, C.-C., Tzen, J. T. C., Guo, R.-T., m.fl. (2014). Immobilization of clostridium cellulolyticum D-psicose 3-epimerase on artificial oil bodies. J. Agric. Food Chem. 62, 6771–6776. doi: 10.1021/jf502022w
Ung, Y. T., Ong, C. E., och Pan, Y. (2018). Current high-throughput approaches of screening modulatory effects of xenobiotics on cytochrome P450 (CYP) enzymes. High Throughput. 7:29. doi: 10.3390/ht7040029
Wagner, N., Bosshart, A., Failmezger, J., Bechtold, M., och Panke, S. (2015). A separation-integrated cascade reaction to overcome thermodynamic limitations in rare-sugar synthesis. Angew. Chem. Int. Ed. Engl. 54, 4182–4186. doi: 10.1002/anie.201411279
Wei, M., Li, Z., Li, T., Wu, B., Liu, Y., Qu, J., m.fl. (2015). Transforming flask reaction into cell-based synthesis: production of polyhydroxylated molecules via engineered Escherichia coli. ACS Catal. 5, 4060–4065. doi: 10.1021/acscatal.5b00953
Windle, C. L., Müller, M., Nelson, A., och Berry, A. (2014). Engineering aldolases as biocatalysts. Curr. Opin. Chem. Biol. 19, 25–33. doi: 10.1016/j.cbpa.2013.12.010
Wong, J. X., Ogura, K., Chen, S., och Rehm, B. H. A. (2020). Bioengineered polyhydroxyalkanoates as immobilized enzyme scaffolds for industrial applications. Front. Bioeng. Biotechnol. 8:156. doi: 10.3389/fbioe.2020.00156
Wu, Y., Chen, T., Liu, Y., Tian, R., Lv, X., Li, J., m.fl. (2019). Design of a programmable biosensor-CRISPRi genetic circuits for dynamic and autonomous dual-control of metabolic flux in Bacillus subtilis. Nucleic Acids Res. 48, 996–1009. doi: 10.1093/nar/gkz1123
Wu, S., och Li, Z. (2018). Whole-cell cascade biotransformations for one-pot multistep organic synthesis. ChemCatChem 10, 2164–2178. doi: 10.1002/cctc.201701669
Xia, Y., Cheng, Q., Mu, W., Hu, X., Sun, Z., Qiu, Y., m.fl. (2021). Research advances of D-allulose: An overview of physiological functions, enzymatic biotransformation technologies, and production processes. Foods 10:2186. doi: 10.3390/foods10092186
Yang, J., Tian, C., Zhang, T., Ren, C., Zhu, Y., Zeng, Y., m.fl. (2019). Development of food-grade expression system for D-allulose 3-epimerase preparation with tandem isoenzyme genes in Corynebacterium glutamicum and its application in conversion of cane molasses to D-allulose. Biotechnol. Bioeng. 116, 745–756. doi: 10.1002/bit.26909
Yang, J., Zhu, Y., Li, J., Men, Y., Sun, Y., och Ma, Y. (2015). Biosynthesis of rare ketoses through constructing a recombination pathway in an engineered Corynebacterium glutamicum. Biotechnol. Bioeng. 112, 168–180. doi: 10.1002/bit.25345
Yang, J., Zhu, Y., Men, Y., Sun, S., Zeng, Y., Zhang, Y., m.fl. (2016). Pathway construction in Corynebacterium glutamicum and strain engineering to produce rare sugars from glycerol. J. Agric. Food Chem. 64, 9497–9505. doi: 10.1021/acs.jafc.6b03423
Yoshihara, A., Kozakai, T., Shintani, T., Matsutani, R., Ohtani, K., Iida, T., m.fl. (2017). Purification and characterization of D-allulose 3-epimerase derived from Arthrobacter globiformis M30, a GRAS microorganism. J. Biosci. Bioeng. 123, 170–176. doi: 10.1016/j.jbiosc.2016.09.004
Zhang, W., Chen, D., Chen, J., Xu, W., Chen, Q., Wu, H., et al. (2021). D-allulose, a versatile rare sugar: recent biotechnological advances and challenges. Crit. Rev. Food Sci. Nutr. doi: 10.1080/10408398.2021.2023091
Zhang, W., Jia, M., Yu, S., Zhang, T., Zhou, L., Jiang, B., et al. (2016a). Improving the thermostability and catalytic efficiency of the D-psicose 3-epimerase from Clostridium bolteae ATCC BAA-613 using site-directed mutagenesis. J. Agric. Food Chem. 64, 3386–3393. doi: 10.1021/acs.jafc.6b01058
Zhang, W., Li, H., Jiang, B., Zhang, T., and Mu, W. (2017). Production of D-allulose from D-glucose by Escherichia coli transformant cells co-expressing D-glucose isomerase and D-psicose 3-epimerase genes. J. Sci. Food Agric. 97, 3420–3426. doi: 10.1002/jsfa.8193
Zhang, W., Li, H., Zhang, T., Jiang, B., Zhou, L., and Mu, W. (2015). Characterization of a D-psicose 3-epimerase from Dorea sp. CAG317 with an acidic pH optimum and a high specific activity. J. Mol. Catal. B Enzym. 120, 68–74. doi: 10.1016/j.molcatb.2015.05.018
Zhang, J., Xu, C., Chen, X., Ruan, X., Zhang, Y., Xu, H., et al. (2020). Engineered Bacillus subtilis harbouring gene of D-tagatose 3-epimerase for the bioconversion of D-fructose into D-psicose through fermentation. Enzym. Microb. Technol. 136:109531. doi: 10.1016/j.enzmictec.2020.109531
Zhang, W., Yu, S., Zhang, T., Jiang, B., and Mu, W. (2016b). Recent advances in D-allulose: physiological functionalities, applications, and biological production. Trends Food Sci. Technol. 54, 127–137. doi: 10.1016/j.tifs.2016.06.004
Zhang, W., Zhang, T., Jiang, B., and Mu, W. (2016c). Biochemical characterization of a D-psicose 3-epimerase from Treponema primitia ZAS-1 and its application on enzymatic production of D-psicose. J. Sci. Food Agric. 96, 49–56. doi: 10.1002/jsfa.7187
Zhu, Z., Gao, D., Li, C., Chen, Y., Zhu, M., Liu, X., et al. (2019a). Redesign of a novel D-allulose 3-epimerase from Staphylococcus aureus for thermostability and efficient biocatalytic production of D-allulose. Microb. Cell Factories 18:59. doi: 10.1186/s12934-019-1107-z
Zhu, Z., Li, C., Liu, X., Gao, D., Wang, X., Tanokura, M., et al. (2019b). Biochemical characterization and biocatalytic application of a novel D-tagatose 3-epimerase from Sinorhizobium sp. RSC Adv. 9, 2919–2927. doi: 10.1039/C8RA10029B
Zhu, Y., Li, Y., Xu, Y., Zhang, J., Ma, L., Qi, Q., et al. (2021). Development of bifunctional biosensors for sensing and dynamic control of glycolysis flux in metabolic engineering. Metab. Eng. 68, 142–151. doi: 10.1016/j.ymben.2021.09.011
Nyckelord: sällsynta sockerarter, D-allulos, D-allulos 3-epimeras, biosyntes, aldolaser, tillämpningar
Referens: Chen Z, Gao XD och Li Z (2022) Senaste framsteg gällande D-allulos fysiologiska funktioner och biosyntes. Front. Microbiol . 13:881037. doi: 10.3389/fmicb.2022.881037
Granskad av:
Youqiang Xu , Pekings universitet för teknik och handel, Kina;Xinqiang Xie , Guangdongs vetenskapsakademi, Kina.
Copyright © 2022 Chen, Gao och Li. Detta är en artikel med öppen tillgång som distribueras under villkoren i Creative Commons Attribution (CC BY) licens . Användning, distribution eller reproduktion i andra forum är tillåten, förutsatt att den eller de ursprungliga författarna och upphovsrättsinnehavaren anges och att publikationen i den ursprungliga tidskriften citeras, i enlighet med vedertagen vetenskaplig praxis. Användning, distribution eller reproduktion som inte uppfyller dessa villkor är inte tillåten.
*Korrespondens: Zijie Li, lizijie@jiangnan.edu.cn
Ansvarsfriskrivning: Alla påståenden i artikeln är enbart författarnas egna och återspeglar inte nödvändigtvis deras anslutna organisationers, utgivarens, redaktörernas eller granskarnas ståndpunkter. Förlaget garanterar eller stöder inte några produkter som utvärderas i artikeln eller påståenden från tillverkaren.
