

Ulteriori risultati relativi alle funzioni fisiologiche e alla biosintesi del D-allulosio
Allulose StoreAscolto della pagina
Fonte: frontiers
Sezione Microbiologia alimentare
Volume 13 - 2022 |https://doi.org/10.3389/fmicb.2022.881037
Questo articolo fa parte dell'argomento di ricercaTecnologie microbiche innovative per una scienza alimentare futura e sostenibile
Risultati recenti sulle funzioni fisiologiche e sulla biosintesi del D-allulosio
- Laboratorio chiave di chimica dei carboidrati e biotecnologia, Ministero dell'Istruzione, Scuola di Biotecnologie, Università di Jiangnan, Wuxi, Cina
Il D-allulosio, uno zucchero considerato generalmente sicuro (GRAS), è raro in natura.
Grazie al suo basso contenuto calorico, al gusto simile al saccarosio e alle sue proprietà uniche, è uno dei dolcificanti più promettenti per un utilizzo futuro.
Il D-allulosio possiede numerosi effetti fisiologici, come azioni anti-obesità, anti-iperglicemiche, anti-diabetiche, antinfiammatorie, antiossidanti e neuroprotettive.
Pertanto, il D-allulosio riveste un importante valore applicativo nell'industria alimentare, farmaceutica e sanitaria.
Tuttavia, l'elevato costo di produzione del D-allulosio ne limita l'applicazione su larga scala. Attualmente, la biotrasformazione risulta molto interessante per la sintesi del D-allulosio; i due principali metodi di biosintesi sono la strategia Izumoring e la strategia dell'aldolasi dipendente da DHAP.
Questo articolo fornisce una panoramica dei risultati più recenti riguardanti le funzioni fisiologiche e la biosintesi del D-allulosio. Inoltre, presenta le prospettive future per la produzione di D-allulosio.
Introduzione
Recentemente, il rischio di obesità, iperlipidemia, ipertensione e diabete è aumentato rapidamente in tutto il mondo a causa dell'eccessivo consumo di diete nutrienti ricche di grassi e zuccheri.
Il saccarosio, un tradizionale dolcificante alimentare, gioca un ruolo importante nell'industria alimentare grazie alla sua dolcezza e appetibilità (Castro-Muñoz et al., 2022).
Tuttavia, il saccarosio presenta alcuni svantaggi, come l'alto contenuto calorico, la capacità di indurre reazioni iperglicemiche e il legame con il diabete (Grassi et al., 2021).
Pertanto, i sostituti dolcificanti a basso contenuto calorico hanno suscitato l'interesse dei ricercatori (Khan et al., 2021).
Sono stati segnalati oltre 30 tipi di zuccheri rari (Granström et al., 2004). Possiedono funzioni biologiche uniche e vengono utilizzati come additivi alimentari, soppressori di cellule tumorali, nonché mattoni per farmaci antitumorali e antivirali (Zhang et al., 2016b;Li et al., 2017;Guerrero-Wyss et al., 2018;Hoshikawa et al., 2018;Xia et al., 2021).
Il D-allulosio (chiamato anche D-psicosio) è il più degno di nota tra gli zuccheri rari.
Sono passati più di 20 anni da quando Ken Izumori ha segnalato per la prima volta il D-allulosio (Itoh et al., 1995).
Presenta il 70% della sua dolcezza, ma solo lo 0,3% del suo contenuto energetico rispetto al saccarosio.
Inoltre, non contiene quasi nessuna caloria (Matsuo et al., 2002).
Come importante bioprodotto industriale, il D-allulosio è stato classificato come sostanza "Generalmente riconosciuta come sicura" (GRAS) dalla Food and Drug Administration (FDA) degli Stati Uniti nel 2002 e ne è stato approvato l'uso in dolci, succhi di frutta, integratori alimentari e altri prodotti dietetici.
Pertanto, il D-allulosio riveste un importante valore applicativo nell'industria alimentare, farmaceutica e sanitaria.
Il D-allulosio dovrebbe cambiare il mercato dei dolcificanti grazie al suo basso contenuto calorico e alla sua appetibilità, poiché sarà in grado di competere con altri sostituti dello zucchero (polioli come xilitolo, mannitolo e sorbitolo).
Si prevede che il prezzo commerciale del D-allulosio si avvicini a quello dei dolcificanti sostitutivi concorrenti, come xilitolo (2-5 USD/kg), mannitolo (1-5 USD/kg) e sorbitolo (1-10 USD/kg).
Nel prossimo futuro, il D-allulosio diventerà competitivo nella produzione su larga scala, simile ad altri dolcificanti che registrano consumi di milioni di tonnellate all'anno.
Attualmente, i fattori che limitano la produzione e il prezzo del D-allulosio includono l'alto costo delle materie prime, le basse rese e la difficoltà di isolamento.
In questo articolo, riassumiamo e discutiamo i risultati più recenti riguardanti le funzioni fisiologiche e la biosintesi del D-allulosio.
Funzioni fisiologiche del D-allulosio
Effetto del D-allulosio sul metabolismo lipidico
È stato dimostrato che il D-allulosio possiede effetti anti-obesità negli animali e nell'uomo attraverso la riduzione dell'apporto calorico, della massa grassa e del peso del tessuto adiposo (Kimura et al., 2017;Bilal et al., 2018).
Inoltre, numerose prove suggeriscono che il D-allulosio possa aumentare il dispendio energetico e ridurre l'accumulo di grasso nei ratti normali (Chung et al., 2012;Ochiai et al., 2014).
Sebbene il D-allulosio possa ridurre il peso del tessuto adiposo, il meccanismo rimane ancora sconosciuto.
Può ridurre l'attività della acido grasso sintasi (FSA) e aumentare la β-ossidazione e l'attività della carnitina palmitoiltransferasi (CPT) nel tessuto adiposo bianco epididimale (WAT;Han et al., 2016).
Inoltre, il D-allulosio dietetico può inibire l'espressione della acetil-CoA carbossilasi alfa (ACCα) legata alla lipogenesi nel WAT epididimale.
Inoltre, il D-allulosio dietetico può stimolare l'espressione della proteina chinasi attivata da AMP alfa 2 (AMPKα2), della lipasi ormone-sensibile (HSL) e del recettore attivato dai proliferatori dei perossisomi alfa (PPARα;Chen et al., 2019) correlati all'ossidazione degli acidi grassi. Pertanto, il D-allulosio possiede potenziali proprietà anti-obesità.
Effetto anti-iperglicemico del D-allulosio
Un'alimentazione inadeguata ha portato a un rapido aumento globale dell'incidenza dell'obesità e del diabete di tipo 2 (T2DM) indotto dall'obesità, il che aumenta significativamente i costi per il trattamento di queste malattie croniche.
Pertanto, è molto importante identificare interventi terapeutici efficaci per gestire il diabete e le sue complicanze. Il D-allulosio ha ricevuto grande attenzione per le sue promettenti proprietà anti-iperglicemiche, grazie alla sua capacità di regolare i livelli di glucosio plasmatico, il peso corporeo e la massa grassa (Matsuo e Izumori, 2009;Hossain et al., 2015;Lee et al., 2020).
Tuttavia, il meccanismo del suo effetto antidiabetico non è ancora chiaro. Si ipotizza che il D-allulosio influenzi i livelli di zucchero nel sangue e la secrezione di insulina, oppure l'attività della glucosidasi e degli enzimi lipolitici.
È stato dimostrato che il D-allulosio inibisce significativamente l'aumento della concentrazione di glucosio plasmatico indotto da saccarosio o maltosio (Matsuo e Izumori, 2009).
Inoltre, è stato dimostrato che il D-allulosio inibisce efficacemente l'attività della saccarasi e della maltasi intestinale.
L'aggiunta di D-allulosio (5 g) può sopprimere significativamente l'aumento dei livelli di zucchero nel sangue indotto da maltodestrina orale (75 g) in adulti sani.
Inoltre, il D-allulosio somministrato da solo per via orale non influenza i livelli ematici di glucosio e insulina (Iida et al., 2008).
È stato inoltre dimostrato che il D-allulosio inibisce l'aumento postprandiale dei livelli di zucchero nel sangue, principalmente nei pazienti con diabete borderline, e dopo 12 settimane di assunzione continua di D-allulosio non sono stati osservati effetti collaterali o problemi clinici (Hayashi et al., 2010).
Sebbene numerosi studi abbiano dimostrato che il D-allulosio possiede attività antidiabetica, il meccanismo non è ancora del tutto chiaro.
Nel fegato, il metabolismo del D-glucosio è regolato dallo spostamento nucleocitoplasmatico della glucochinasi (Hossain et al., 2015).
A bassi livelli di glucosio, la glucochinasi rimane in forma inattiva legata alla proteina regolatrice della glucochinasi (GKRP), che viene reclutata nel nucleo dell'epatocita. Quando i livelli di glucosio raggiungono livelli elevati, la glucochinasi viene attivata distaccandosi dal complesso glucochinasi-GKRP e trasloca dal nucleo al citoplasma, dove partecipa al metabolismo del glicogeno e all'omeostasi dei livelli di zucchero nel sangue (Liu et al., 2012).
Ad esempio, l'attivazione della glucochinasi può migliorare la tolleranza al glucosio e la sensibilità all'insulina (Shintani et al., 2017b).
Il funzionamento compromesso della glucochinasi epatica nel diabete porta alla patogenesi dell'iperglicemia (Basu et al., 2001).
Pertanto, la glucochinasi è considerata un potenziale bersaglio per i farmaci antidiabetici (Lloyd et al., 2013).
Inoltre, la glucochinasi viene attivata da diversi fruttosio-fosfati, come il fruttosio-6-fosfato (F6P) e il fruttosio-1-fosfato (F1P;Pfefferkorn, 2013).
Il D-allulosio-1-fosfato, analogamente al fruttosio-1-fosfato, attiva anch'esso la glucochinasi. Pertanto, il D-allulosio può aumentare l'utilizzo del glucosio epatico (Toyoda et al., 2010).
La glucosio-6-fosfatasi (G6Pasi) contribuisce all'iperglicemia nel diabete e regola le fasi limitanti del flusso gluconeogenico epatico (Herling et al., 1998).
Il D-allulosio può regolare i livelli di zucchero nel sangue ed esercitare un effetto ipolipidemico riducendo l'attività della G6Pasi (Nagata et al., 2015).
È stato segnalato che la somministrazione orale di D-allulosio può stimolare la secrezione di GLP-1 e può quindi essere applicata per la prevenzione e il trattamento dell'intolleranza al glucosio (Hayakawa et al., 2018).
Recentemente è stato confermato che il D-allulosio induce il rilascio di GLP-1, attiva la segnalazione afferente vagale, riduce l'assunzione di cibo e limita l'iperglicemia nei ratti diabetici sani e obesi.
Inoltre, il D-allulosio orale può correggere l'eccesso di cibo aritmico, l'obesità e il diabete (Iwasaki et al., 2018).
Altre funzioni fisiologiche del D-allulosio
Il D-allulosio esercita un effetto antinfiammatorio sopprimendo i livelli sierici di citochine pro-infiammatorie, come il fattore di necrosi tumorale alfa (TNF-α), l'interleuchina-6 (IL-6) e la proteina chemioattrattante dei monociti 1 (MCP-1). Tali citochine derivano principalmente dai tessuti adiposi viscerali ( Moller e Berger, 2003 ; Kim et al., 2017 ).
Il D-allulosio possiede anche proprietà antiossidanti, proteggendo dall'apoptosi indotta dalla 6-idrossidopamina o prevenendo il danno testicolare attraverso il sequestro delle specie reattive dell'ossigeno (ROS) ( Takata et al., 2005 ; Suna et al., 2007 ).
Il D-allulosio può inoltre prolungare la durata della vita aumentando l'attività della superossido dismutasi (SOD) e della catalasi (CAT) ( Shintani et al., 2017a ).
Inoltre, è stato dimostrato che il D-allulosio altera i livelli di colesterolo sierico nei criceti, in parte riducendo i livelli della proproteina convertasi subtilisina/kexina di tipo 9 (Pcsk9) ( Kanasaki et al., 2019 ).
Inoltre, il D-allulosio può migliorare la sensibilità all'insulina sistemica e muscolare nei ratti svegli ( Natsume et al., 2021 ). Le varie funzioni fisiologiche del D-allulosio sono illustrate nella Figura 1.
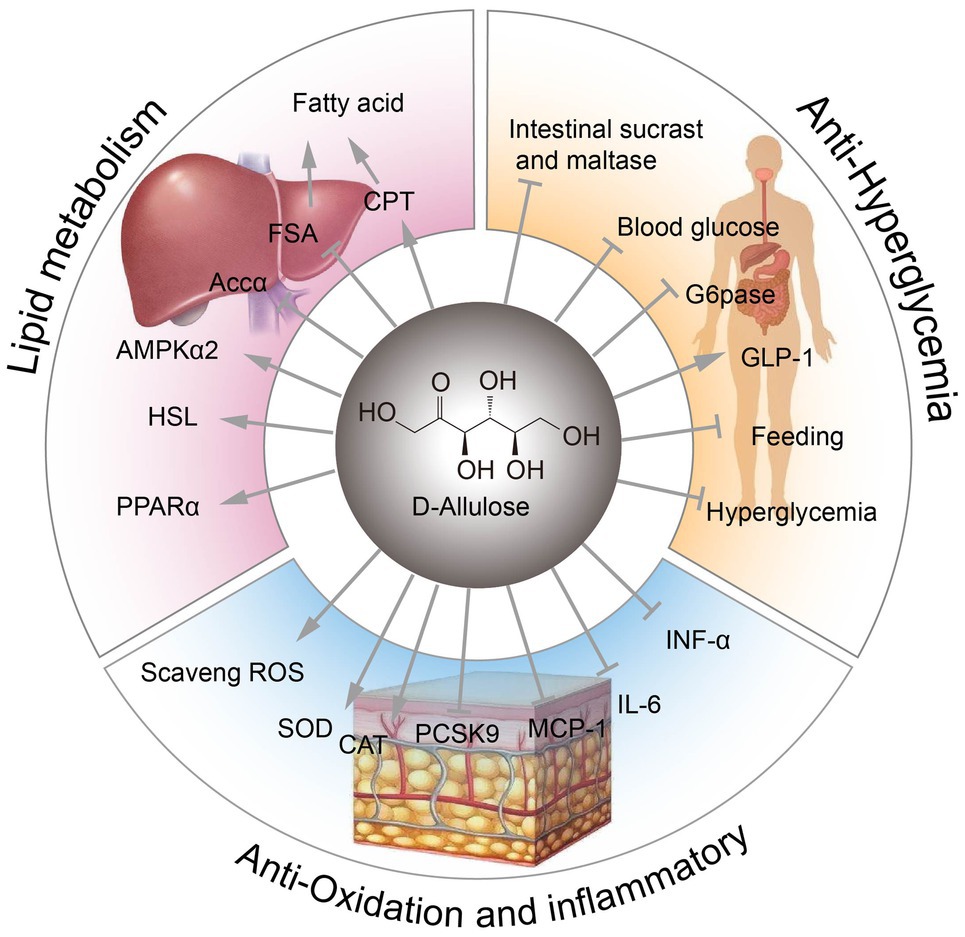
Figura 1 . Funzioni fisiologiche del D-allulosio. FSA, acido grasso sintasi; CPT, carnitina palmitoiltransferasi; ACCα, acetil-CoA carbossilasi alfa; AMPKα, proteina chinasi attivata da AMP alfa; HSL, lipasi ormone-sensibile; PPARα, recettore attivato dai proliferatori dei perossisomi alfa; ROS, specie reattive dell'ossigeno; SOD, superossido dismutasi; CAT, attività catalasica; Pcsk9, proproteina convertasi subtilisina/kexina di tipo 9; MCP-1, proteina chemioattrattante dei monociti 1; G6Pasi, glucosio-6-fosfatasi.
Produzione biologica del D-allulosio
Come descritto in precedenza, il D-allulosio possiede numerose funzioni fisiologiche utili. Tuttavia, il D-allulosio è raro in natura, il che limita fortemente la sua ampia applicazione. La sintesi chimica tradizionale del D-allulosio comporta solitamente reazioni difficili e numerose reazioni secondarie ( McDonald, 1967 ; Doner, 1979 ).
Con i metodi chimici è difficile ottenere una configurazione di prodotto singola.
Al contrario, gli approcci di bioconversione presentano numerosi vantaggi, tra cui condizioni di reazione blande, pochi sottoprodotti, passaggi di purificazione semplici e proprietà ecocompatibili ( Zhang et al., 2021 ).
Pertanto, la biotrasformazione è diventata gradualmente il metodo principale per la sintesi del D-allulosio.
Attualmente, la produzione biologica di D-allulosio viene ottenuta principalmente attraverso due strategie: (1) la strategia Izumoring e (2) la strategia dell'aldolasi dipendente da DHAP.
Produzione di D-allulosio con la strategia Izumoring
Produzione di D-allulosio dal D-fruttosio utilizzando enzimi della famiglia della D-tagatosio 3-epimerasi
La strategia Izumoring è un approccio promettente per la bioproduzione di qualsiasi zucchero esoso e comprende D-tagatosio-3-epimerasi (DTEasi), poliolo deidrogenasi e aldosi isomerasi ( Izumori, 2006 ).
Negli ultimi decenni, la strategia Izumoring si è dimostrata efficace nella biosintesi di zuccheri rari.
Gli enzimi appartenenti alla famiglia delle DTEasi sono enzimi chiave per la biosintesi del D-allulosio dal D-fruttosio ( Figura 2 ), e includono la DTEasi e la D-allulosio-3-epimerasi (DAEasi).
La DAEasi mostra una maggiore specificità per il D-allulosio rispetto al D-tagatosio ( Kim et al., 2006 ).
Dall'identificazione della prima DTEasi da Pseudomonas cichorii ST-24 nel 1993, sono stati isolati altri enzimi DTEasi da varie specie, come Agrobacterium tumefaciens ( Kim et al., 2006 ), Clostridium bolteae ( Jia et al., 2014 ), Dorea sp. CAG317 ( Zhang et al., 2015 ), Ruminococcus sp. 5_1_39BFAA ( Chen et al., 2016 ), Treponema primitia ZAS-1 ( Zhang et al., 2016c ), Rhodobacter sphaeroides ( Qi et al., 2017 ), Ruminococcus sp. ( Li et al., 2018 ), Arthrobacter globiformis M30 ( Yoshihara et al., 2017 ), Clostridium cellulolyticum H10 ( Su et al., 2018 ), Sinorhizobium sp. ( Zhu et al., 2019b ), nonché Rhodopirellula baltica SH 1 ( Zhang et al., 2020 ). I dettagli delle proprietà catalitiche degli enzimi della famiglia DTEasi provenienti da diverse specie sono presentati nella Tabella 1. Itoh et al. (1995) hanno riportato per primi l'immobilizzazione della DTEasi da P. cichorii su granuli di chitopearl, producendo 90 g di D-allulosio da 500 g di D-fruttosio.
Da allora, i metodi di immobilizzazione della DTEasi hanno suscitato ampio interesse ( Lim et al., 2009 ; Tseng et al., 2014 ; Narayan Patel et al., 2018 ), e gli enzimi immobilizzati hanno mostrato una migliore stabilità termica e stabilità di conservazione
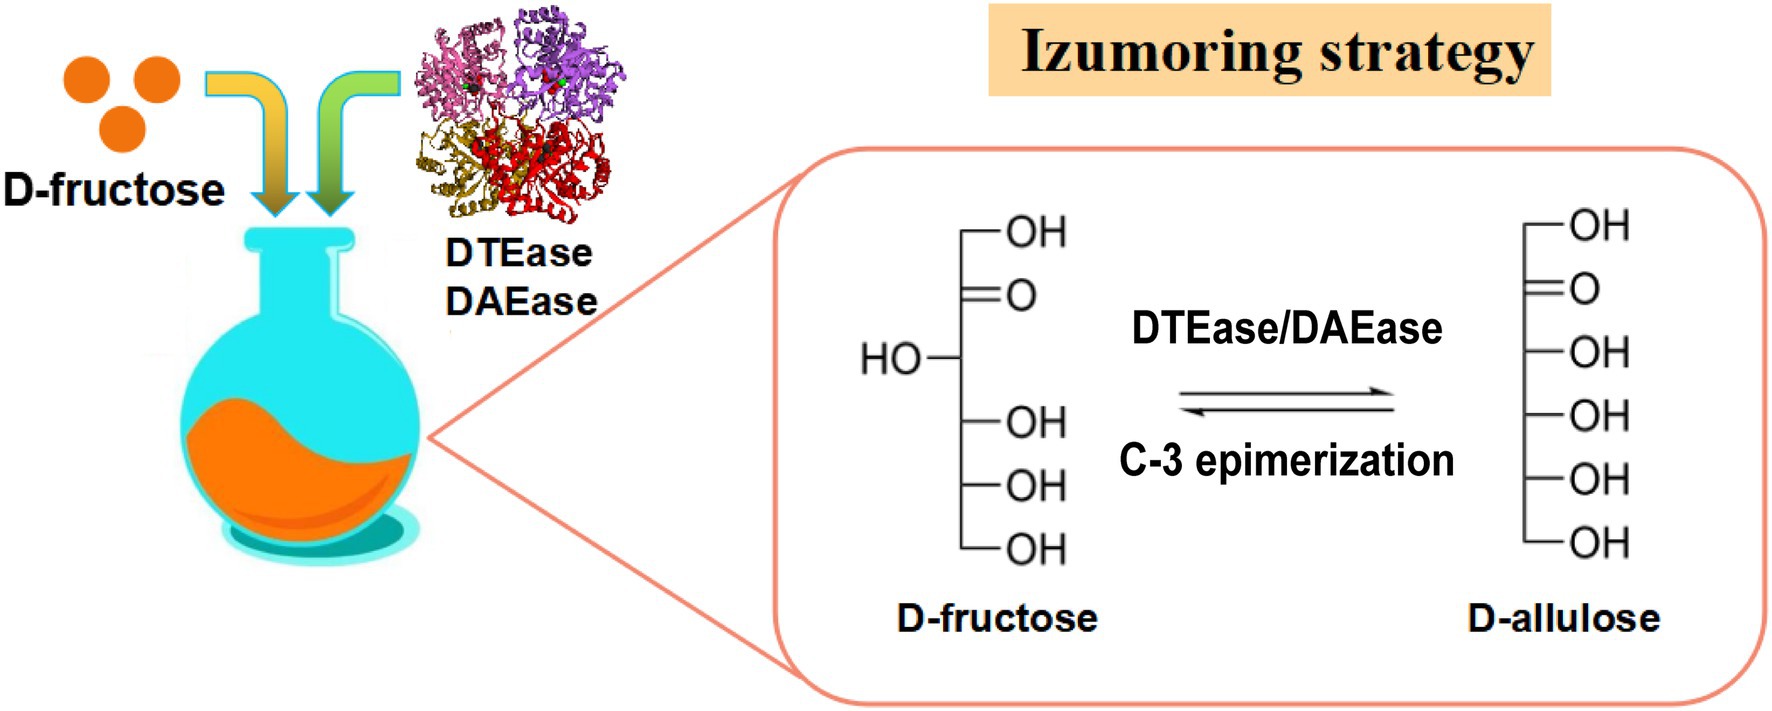
Figura 2 . Strategia Izumoring per la produzione di D-allulosio. DTEasi, D-tagatosio-3-epimerasi; DAEasi, D-allulosio-3-epimerasi
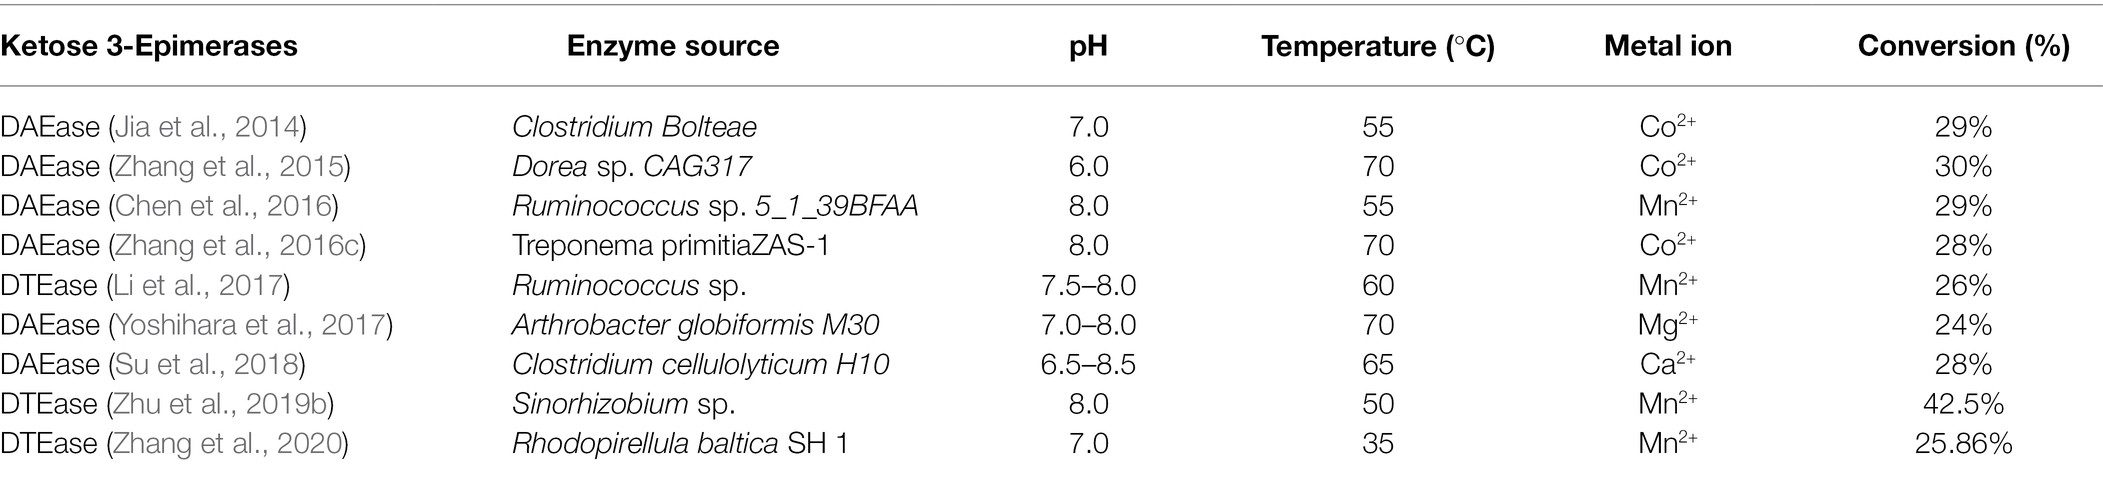
Tabella 1 . Proprietà degli enzimi della famiglia DTEasi.
Biosintesi del D-allulosio da materiali economici basata su enzimi DTEasi
Attualmente, i sottoprodotti agricoli, come i residui di frutta e verdura, causano significativi problemi agricoli ( Lai et al., 2017 ).
I residui agricoli vengono solitamente sepolti in discariche o bruciati ( Park e Yoon, 2015 ). Tuttavia, questi residui contengono grandi quantità di fibre alimentari e zuccheri, tra cui saccarosio, D-glucosio e D-fruttosio.
La trasformazione di fibre alimentari e zuccheri in prodotti ad alto valore aggiunto rappresenta un passo importante verso l'attenuazione dei problemi agricoli.
La catalisi a cascata è considerata un approccio molto attraente rispetto alla sintesi tradizionale passo dopo passo.
Questa strategia viene spesso utilizzata per produrre zuccheri rari da materiali economici, come saccarosio, topinambur, inulina e residui di frutta/verdura ( Figura 3 ; Wagner et al., 2015 ; Song et al., 2016 , 2017 ; Zhang et al., 2017 ; Yang et al., 2019 ; Li et al., 2020a ).
Il D-allulosio è stato sintetizzato efficacemente dal saccarosio utilizzando invertasi ricombinante purificata, D-xilosio isomerasi e DTEasi.
Inoltre, l'integrazione pratica della soluzione a cascata e della cromatografia a letto mobile simulato (SMB) è stata utilizzata per produrre D-allulosio puro (99,9%) con una resa molto elevata (89%; Wagner et al., 2015 ).
Il D-allulosio può anche essere sintetizzato tramite una reazione a cascata a due stadi, che coinvolge l'idrolisi del topinambur ( Song et al., 2017 ), residui di piante crucifere ( Song et al., 2016 ) e inulina ( Li et al., 2020a ).
Per ridurre i costi di produzione ed evitare la purificazione degli enzimi, Zhu e colleghi hanno sviluppato un sistema di reazione a due enzimi in un unico passaggio, utilizzando una nuova eso-inulinasi derivata da Bacillus velezensis (BvInu) e una DAEasi derivata da Ruminococcus sp. per la produzione di D-allulosio dal topinambur.
La BvInu e la DAEasi sono state espresse in Bacillus subtilis e secrete nel surnatante senza purificazione. Con un rapporto ottimale BvInu/RDAE (80:40 U/g di inulina) a 50°C per 2 ore, sono stati ottenuti 10,3 g/l di D-allulosio a partire da 50 g/l di inulina ( Zhu et al., 2020 ).
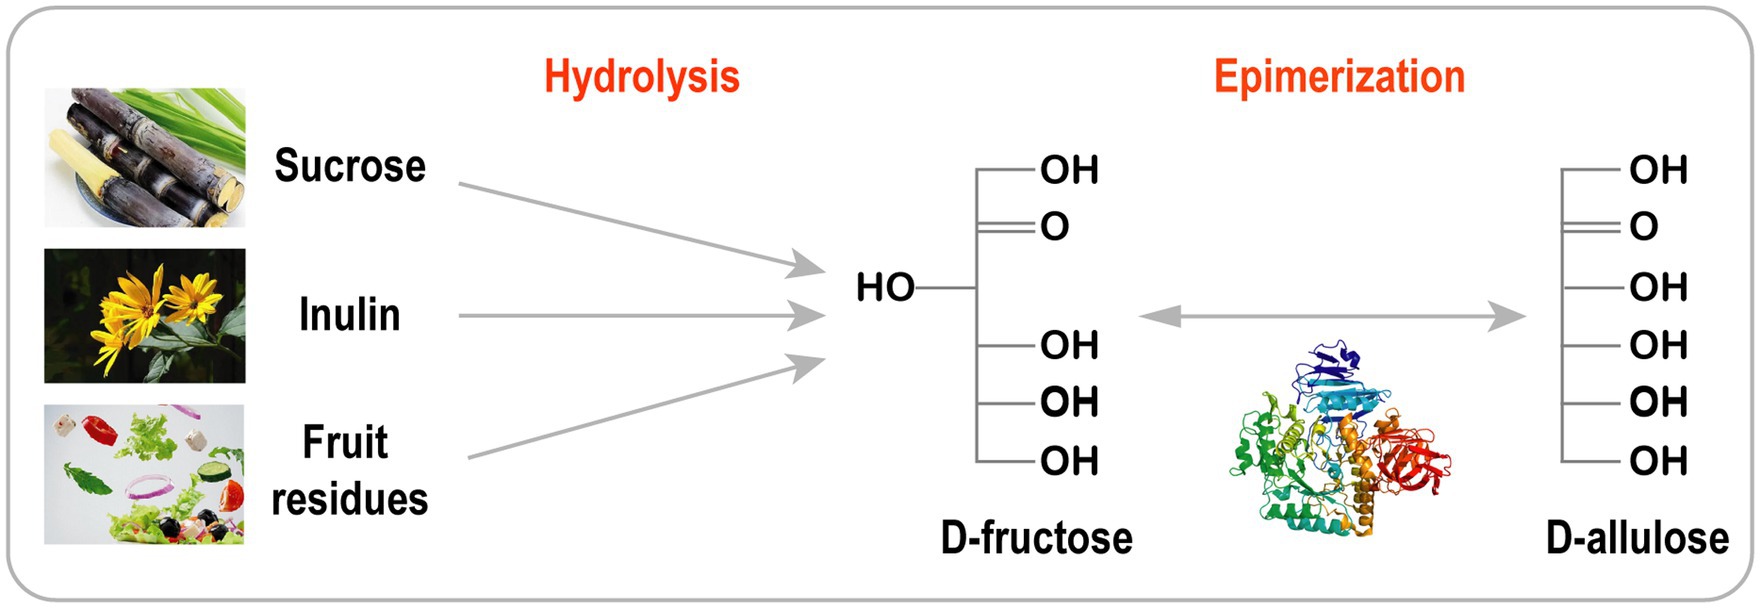
Figura 3. Biosintesi del D-allulosio da materia prima economica.
Biosintesi del D-allulosio tramite microrganismi
Rispetto alle reazioni a cascata in un unico passaggio, le reazioni con biocatalizzatori a cellule intere presentano numerosi vantaggi ( Figura 4 ): (1) le cellule contenenti gli enzimi sono facili da produrre senza la laboriosa purificazione degli enzimi; (2) il contesto cellulare fornisce un microambiente idoneo e la rigenerazione dei cofattori (ATP, NAD+/NADH); (3) le pareti cellulari e le membrane proteggono gli enzimi dalle condizioni di reazione avverse; e (4) la colocalizzazione intracellulare di più enzimi aumenta la concentrazione locale degli enzimi e riduce la diffusione degli intermedi nelle reazioni a cascata ( Wu e Li, 2018 ).
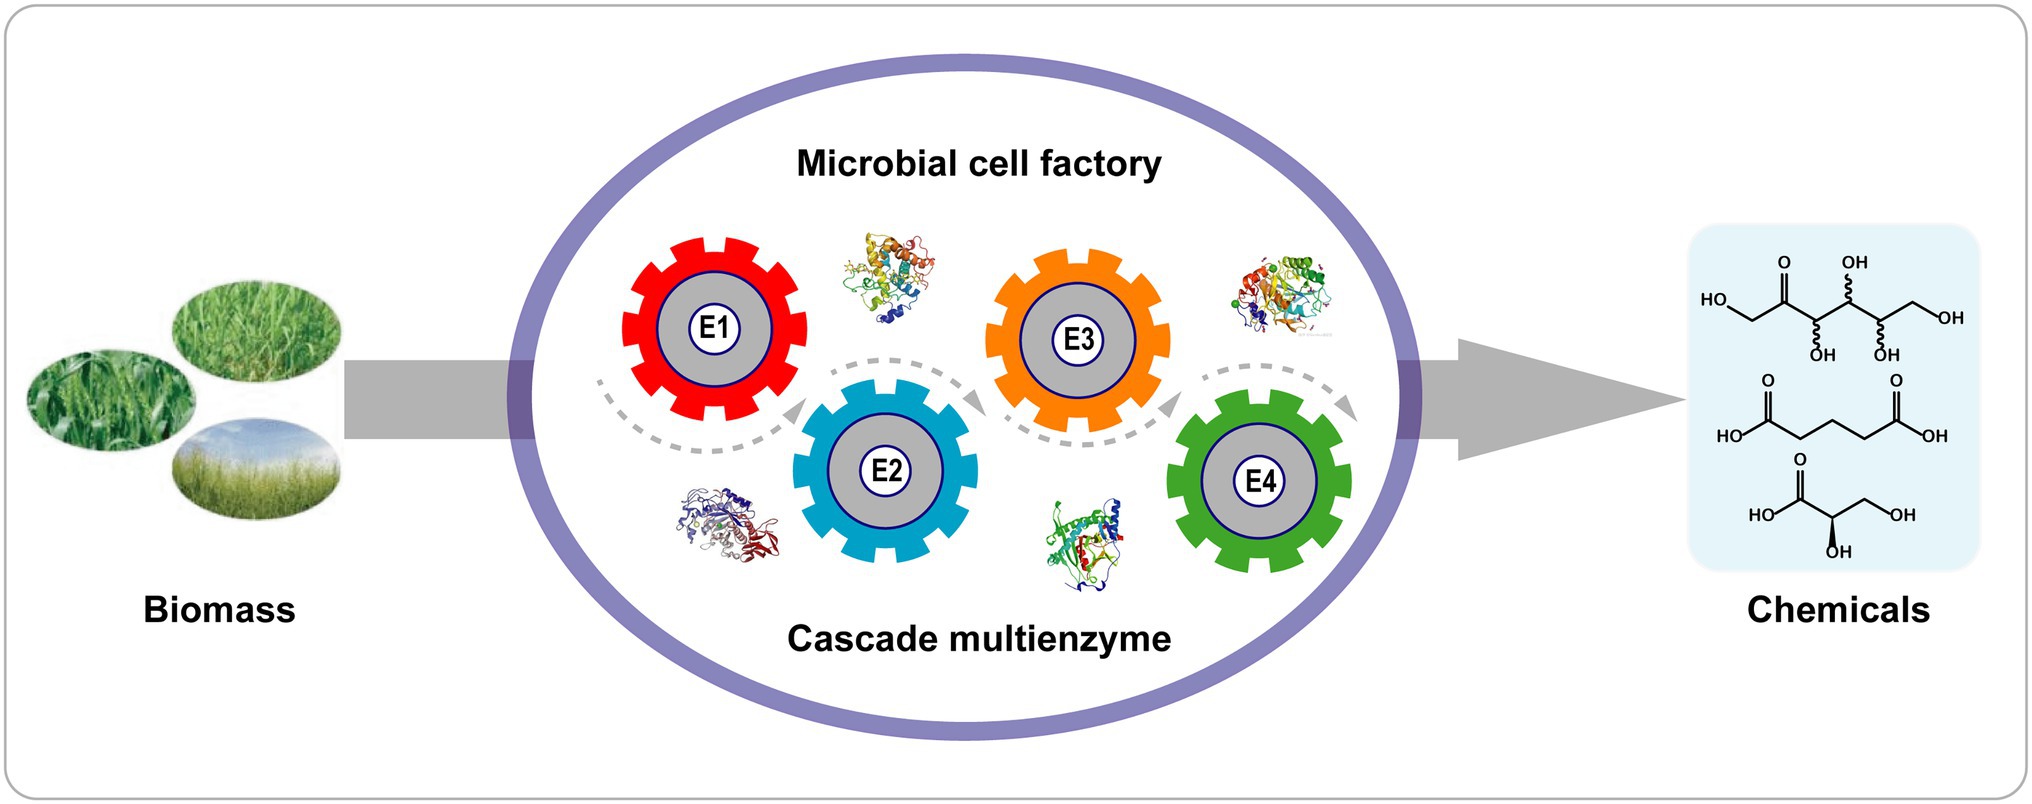
Figura 4. Biotrasformazione a cascata con una singola cellula ricombinante. E1–E4 indicano gli enzimi 1–4.
L'Escherichia coli modificato è uno degli organismi più comunemente utilizzati per la produzione di D-allulosio, grazie al suo background pulito, al rapido tasso di crescita, alla facilità di coltura e alla genetica stabile.
La DAEasi e la D-glucosio isomerasi (GIasi) di Acidothermus cellulolyticus sono state espresse insieme per produrre D-allulosio dal D-glucosio ( Zhang et al., 2017 ).
Analogamente, la DAEasi e la xilosio isomerasi (XI) sono state espresse insieme per produrre D-allulosio utilizzando D-glucosio come substrato ( Chen et al., 2017 ).
Nei due approcci sopra indicati, il D-glucosio è stato inizialmente convertito in D-fruttosio tramite la GIasi o la XI, quindi il D-fruttosio è stato immediatamente isomerizzato in D-allulosio mediante la DAEasi.
Sebbene la manipolazione di E. coli abbia consentito di ottenere una buona produttività, ciò non è stato applicabile nell'industria alimentare a causa della classificazione non destinata all'uso alimentare e della presenza di endotossine; tuttavia, la DAEasi è stata finora espressa con successo in numerosi ceppi sicuri per gli alimenti, come B. subtilis, Saccharomyces cerevisiae e Corynebacterium glutamicum ( Li et al., 2015b; He et al., 2016 ). He e colleghi (2016) hanno espresso la DTEasi di Clostridium scindens ATCC 35704 sulla superficie delle spore di B. subtilis per produrre D-allulosio da D-fruttosio. La DAEasi è stata legata al C-terminale di CotZ e ha mostrato un'elevata termostabilità. Dopo cinque cicli di utilizzo, è rimasto il 60% dell'attività ( He et al., 2016 ).
In un nostro precedente studio, abbiamo sviluppato una tecnica di esposizione sulla superficie delle spore per la produzione di D-allulosio dal D-glucosio. In questo approccio, l'enzima chiave XI di Thermus thermophilus e la DAEasi di A. tumefaciens sono stati immobilizzati rispettivamente tramite metodi biologici e chimici sulle spore di S. cerevisiae ( Li et al., 2015b ).
Inoltre, diverse DAEasi e invertasi (INV) sono state sovraespresse in C. glutamicum e le cellule modificate, immobilizzate con alginato, sono state sottoposte a una reazione a cascata in un sistema di reazione a due passaggi in unico step per produrre D-allulosio da melassa di canna. Dopo 8 ore di reazione, sono stati ottenuti 61,2 g/L di D-allulosio, pari al 17,4% del monosaccaride totale ( Yang et al., 2019 ).
Attualmente, la strategia Izumoring è il metodo principale per la produzione industriale di D-allulosio, ottenibile mediante l'impiego di SMB. Inoltre, il D-fruttosio separato può essere riutilizzato per produrre D-allulosio. In sintesi, la strategia Izumoring è il modo più semplice e comune per la biosintesi del D-allulosio. Tuttavia, i limiti dell'equilibrio termodinamico rappresentano un collo di bottiglia che limita l'ampia applicazione del D-allulosio nell'industria alimentare.
Produzione di D-allulosio tramite aldolasi dipendenti da DHAP
Come accennato in precedenza, sono stati sviluppati vari approcci basati sulla strategia Izumoring per la produzione di D-allulosio da materie prime economiche, come topinambur, inulina e residui agricoli.
Tuttavia, la reazione catalizzata dall'enzima chiave DAEasi è reversibile e il tasso di conversione è basso, il che porta a un prezzo elevato del D-allulosio ottenuto. Inoltre, la maggior parte dei ceppi utilizzati nella sintesi del D-allulosio non sono microrganismi GRAS.
Pertanto, è estremamente importante creare una piattaforma economica e sicura per la produzione di massa di D-allulosio.
Le aldol-addizioni stereoselettive catalizzate da aldolasi sono diventate strumenti fondamentali nella sintesi asimmetrica di C-C ( Iturrate et al., 2010 ).
Tra i membri della famiglia delle aldolasi, le aldolasi dipendenti da DHAP sono le più diffuse nella sintesi di numerosi composti carboidratici difficili da sintetizzare con i metodi chimici convenzionali ( Bosshart et al., 2013 ).
Esistono quattro tipi di aldolasi dipendenti da DHAP: L-ramnulosio-1-fosfato aldolasi (RhaD), L-fuculosio-1-fosfato aldolasi (FucA), D-fruttosio-1,6-bisfosfato aldolasi (FruA) e D-tagatosio-1,6-bisfosfato aldolasi (TagA).
Le reazioni aldoliche stereoselettive di queste quattro aldolasi si completano a vicenda. Teoricamente, è possibile produrre un set di quattro chetosi utilizzando DHAP come donatore e la stessa aldeide come accettore ( Gustavo, 2000 ).
Pertanto, le aldolasi dipendenti da DHAP sono eccellenti per la sintesi di vari zuccheri rari (inclusi D-allulosio, D-sorbosio, D-tagatosio e L-fruttosio) grazie alla loro specifica stereoselettività ( Figura 5; Brovetto et al., 2011; Dai et al., 2021
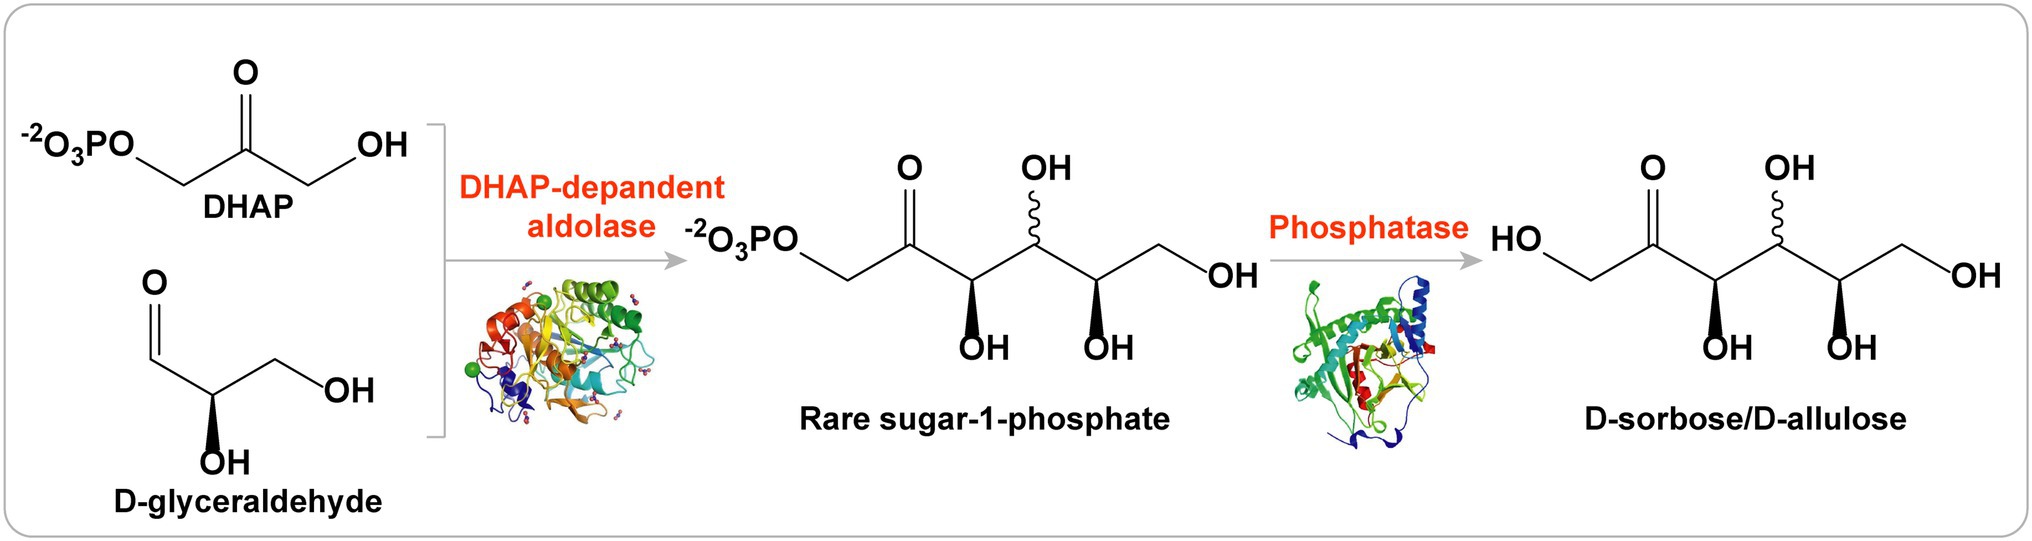
Figura 5. Strategia delle aldolasi dipendenti da DHAP per la produzione di D-allulosio.
Biosintesi del D-allulosio con RhaD aldolasi e D-gliceraldeide come accettore
Uno dei principali svantaggi delle strategie basate su aldolasi dipendenti da DHAP è che il substrato donatore, il DHAP, è molto costoso e instabile per una sintesi su larga scala ( Schümperli et al., 2007 ).
Tuttavia, esistono diversi modi per sintetizzare il DHAP tramite strategie enzimatiche. Ad esempio, il DHAP può essere prodotto tramite diidrossiacetone (DHA), glicerolo o glicerolo-3-fosfato, oppure attraverso percorsi metabolici partendo da una materia prima economica, come glucosio o glicerolo ( Figura 6; Sánchez-Moreno et al., 2004; Li et al., 2012, 2015a; Wei et al., 2015; Yang et al., 2015, 2016 ).
Nell'E. coli modificato artificialmente, la reazione aldolica catalizzata dalla RhaD è stata utilizzata per la sintesi di zuccheri rari (D-allulosio e D-sorbosio) usando glucosio come fonte di carbonio e aggiungendo continuamente D-gliceraldeide al terreno di coltura. A seguito dell'ottimizzazione delle condizioni di fermentazione, la resa isolata di D-allulosio e D-sorbosio è stata di 0,21 mol/mol di D-gliceraldeide ( Wei et al., 2015 ). Il D-allulosio e il D-sorbosio sono stati prodotti in un ceppo di C. glutamicum GRAS utilizzando glucosio e D-gliceraldeide come materie prime. È stato riscontrato che i ceppi ricombinanti di C. glutamicum contenenti RhaD e fruttosio-1-fosfatasi (YqaB) accumulavano 19,5 g/l di D-sorbosio e 13,4 g/l di D-allulosio in fermentazione fed-batch ( Yang et al., 2015 ). Inoltre, D-allulosio e D-sorbosio sono stati prodotti in un ceppo ricombinante di E. coli che sovraesprime l'aldolasi RhaD e YqaB mediante fermentazione a partire da glicerolo. Dopo 15 ore di fermentazione, è stata determinata la concentrazione di D-sorbosio (1,6 g/l) e D-allulosio (1,23 g/l) nel surnatante ( Li et al., 2015a ). Recentemente, il nostro gruppo ha costruito un sistema efficiente per la sintesi a cascata a cellule intere di D-sorbosio e D-allulosio a partire da glicerolo e D-gliceraldeide, che ha portato a 15,3 g/l di D-sorbosio e 6,4 g/l di D-allulosio durante la biotrasformazione batch ( Chen et al., 2020a ).
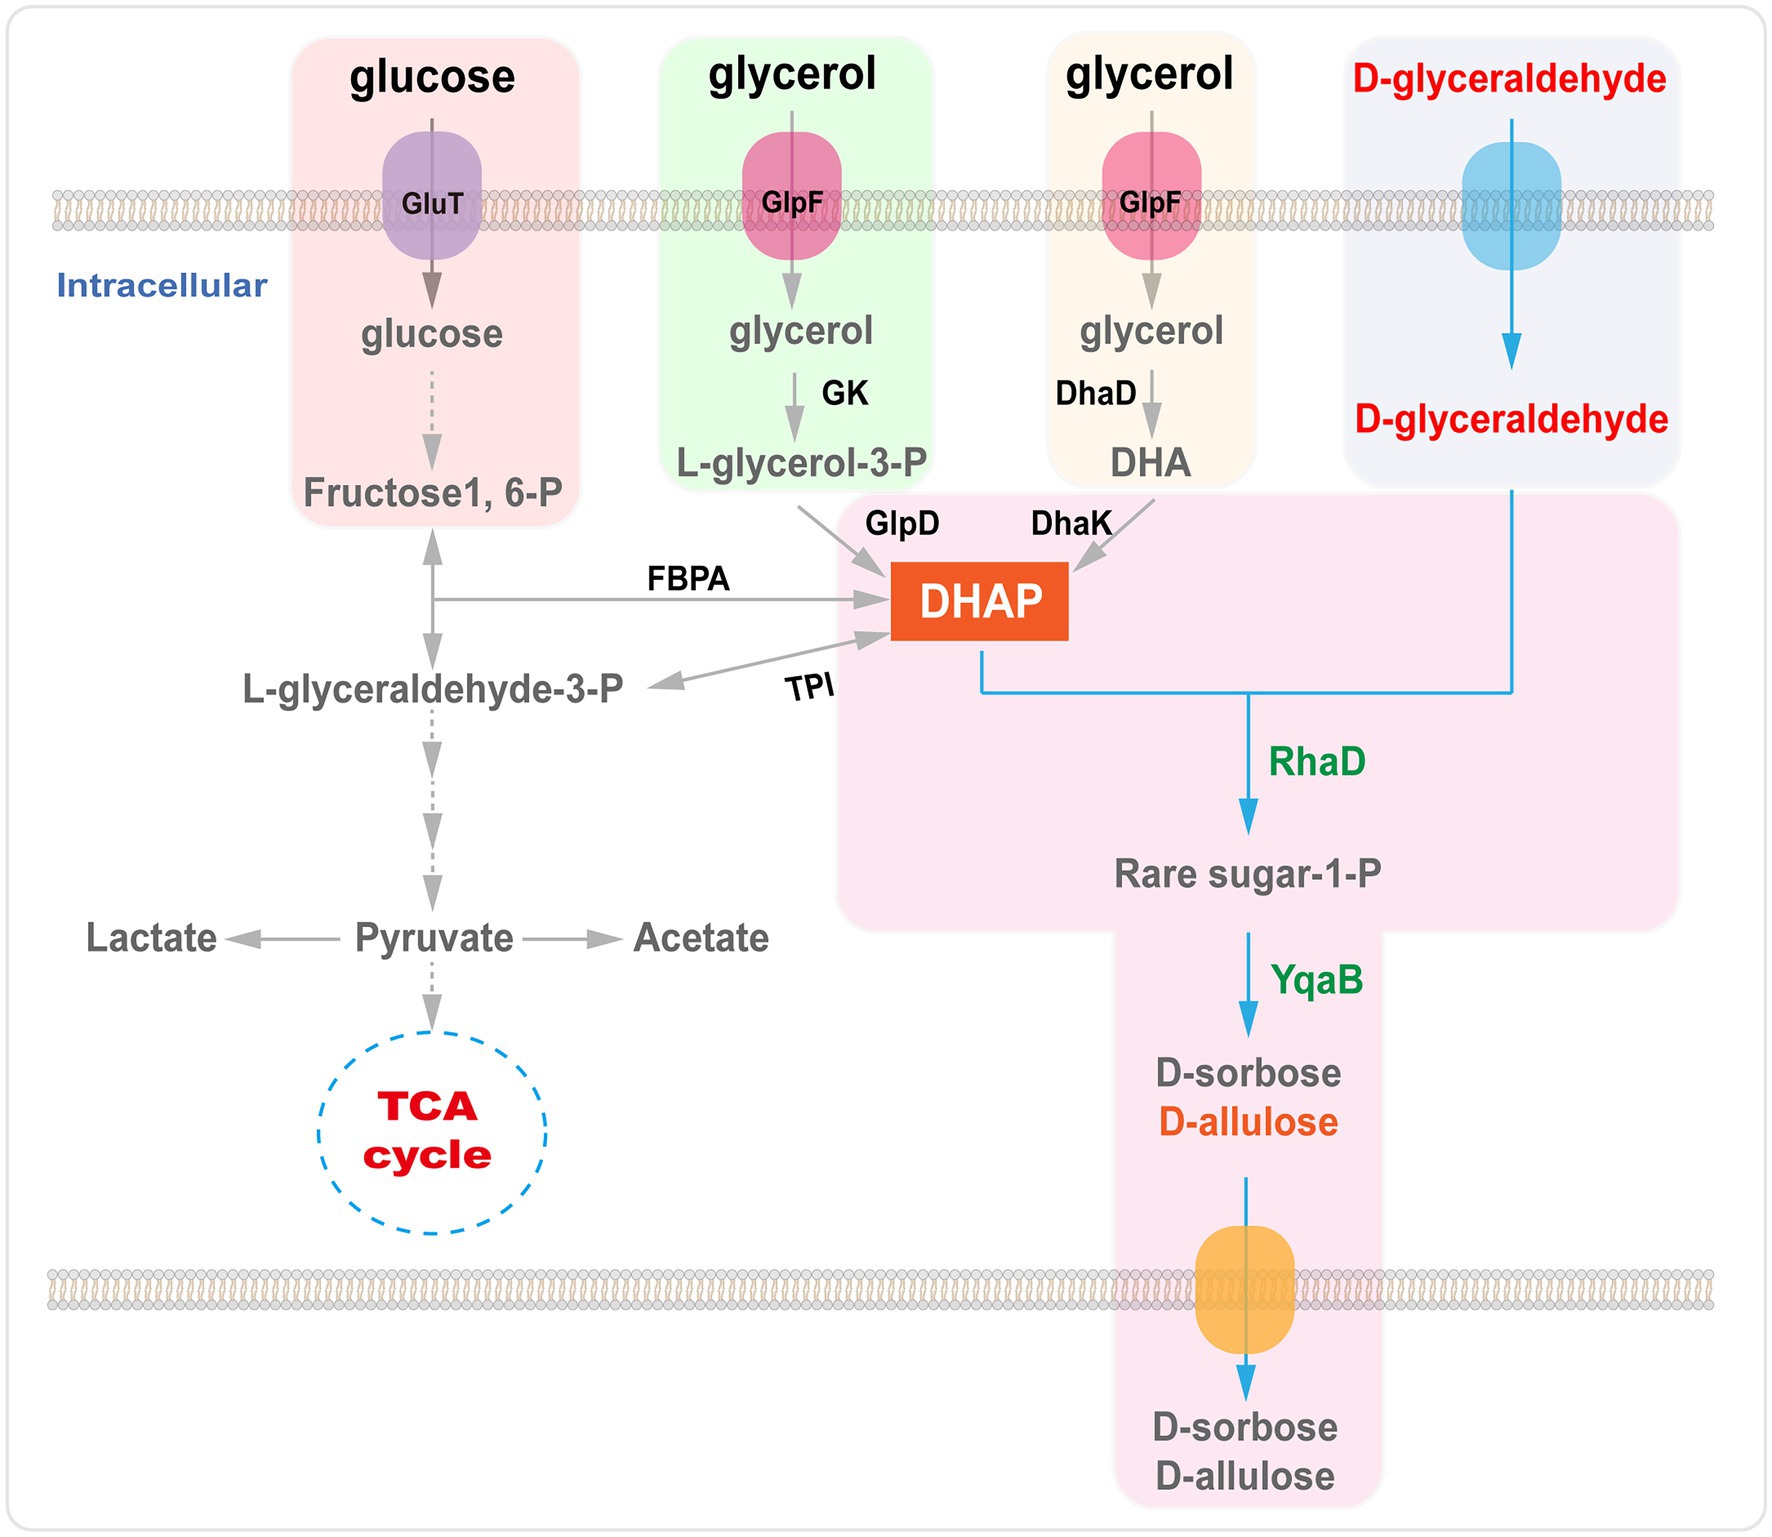
Figura 6. Biosintesi del D-allulosio tramite l'aldolasi RhaD da glicerolo o glucosio. GlpF, trasportatore del glicerolo; GK, glicerolo chinasi; GlpD, glicerolo-3-fosfato deidrogenasi; DhaD, glicerolo deidrogenasi; DhaK, diidrossiacetone chinasi; FBPA, fruttosio-1,6-difosfato aldolasi; TPI, trioso fosfato isomerasi; RhaD, L-ramnulosio-1-fosfato aldolasi; YqaB, fruttosio-1-fosfatasi.
Biosintesi del D-allulosio a partire dal glicerolo come unico substrato
Una piattaforma microbica basata sull'aldolasi RhaD per la sintesi del D-allulosio sarebbe promettente per la produzione su larga scala. La sfida principale è rappresentata dall'alto costo del substrato donatore DHAP e della molecola accettore D-gliceraldeide. Fortunatamente, il problema dell'accumulo di DHAP è stato risolto utilizzando il glicerolo, un economico sottoprodotto industriale, come fonte di carbonio "verde". Di conseguenza, la questione successiva è l'identificazione di un nuovo enzima in grado di convertire il glicerolo a basso valore in D-gliceraldeide. È necessario un enzima, come una glicerolo deidrogenasi o una glicerolo ossidasi, in grado di catalizzare efficacemente la conversione del glicerolo in D-gliceraldeide.
Per risolvere questo problema, il nostro gruppo ha creato una piattaforma per la sintesi a cascata a cellule intere di D-sorbosio e D-allulosio utilizzando il glicerolo come unico substrato. In questo sistema (Figura 7), il substrato donatore, DHAP, viene generato attraverso la via di assimilazione del glicerolo, mentre il DHAP endogeno viene prodotto tramite la sovraespressione della glicerolo chinasi (GK) e della glicerolo-3-fosfato ossidasi (GPO). L'accettore D-gliceraldeide viene prodotto direttamente dal glicerolo mediante l'alditolo ossidasi diStreptomyces coelicolor A3 (AldOS.coe). Successivamente, l'aldolasi RhaD catalizza la reazione aldolica tra DHAP e D-gliceraldeide, formando il corrispondente chetoso-1-fosfato. Infine, il D-sorbosio e il D-allulosio vengono ottenuti rimuovendo il gruppo fosfato tramite la fosfatasi YqaB. Con questo sistema, le rese di produzione di D-sorbosio e D-allulosio sono aumentate rispettivamente di circa 1,7 e 1,2 volte dopo la sovraespressione della perossidasi (Prx02 o KatE), per eliminare gli effetti dannosi del H₂O₂. In totale, abbiamo ottenuto 7,9 g/l di D-sorbosio e D-allulosio a partire dal glicerolo, con un tasso di conversione totale del 17,7% (Chen et al., 2020b).
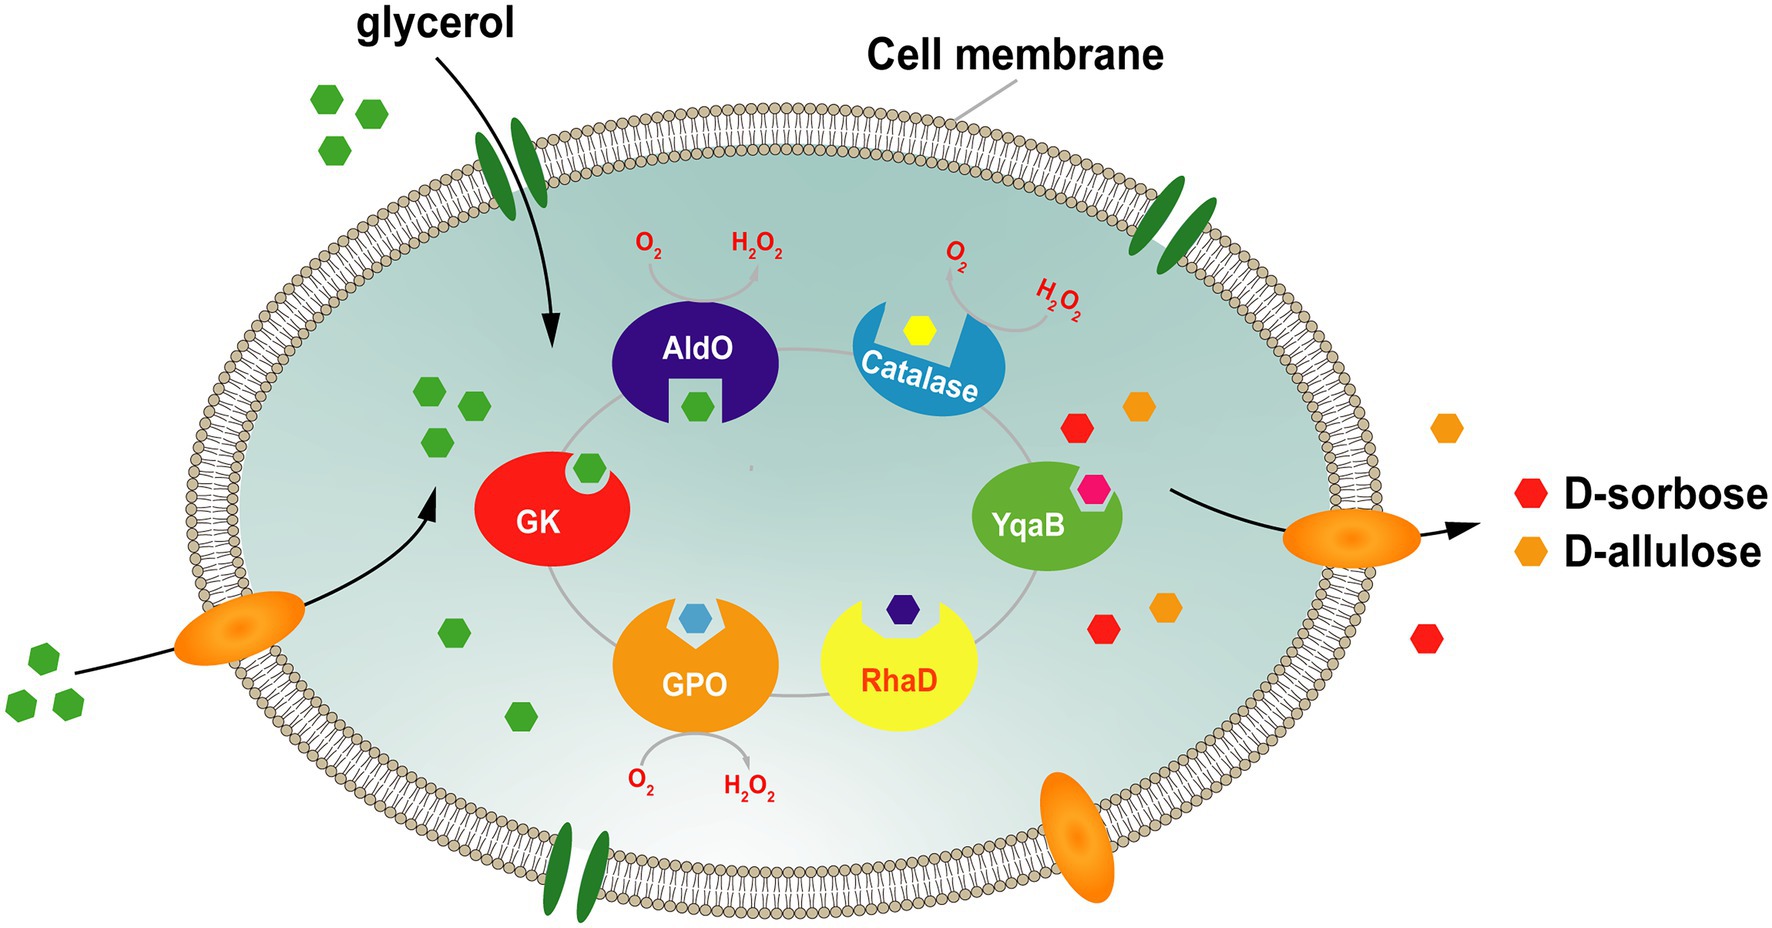
Figura 7. Strategia per la sintesi a cellule intere di D-sorbosio e D-allulosio da glicerolo. GK, glicerolo chinasi; GPO, glicerolo ossidasi; AldO, alditolo ossidasi; RhaD, L-ramnulosio-1-fosfato aldolasi; YqaB, fruttosio-1-fosfatasi.
Il nostro gruppo ha inoltre costruito un sistema multienzimatico a stadio singolo per la sintesi di D-sorbosio e D-allulosio utilizzando il glicerolo come unica fonte di carbonio (Figura 8). In questo caso, abbiamo inserito nel sistema la fosfatasi acida PhoN derivata daShigella flexneri (PhoN-Sf) al posto di GK e YqaB, la quale catalizza la reazione di fosforilazione del glicerolo nel primo passaggio e aiuta a riciclare il fosfato del chetoso-1-fosfato nell'ultimo passaggio, fornendo molecole di zuccheri rari liberi. Abbiamo introdotto l'AldOS.coe nella suddetta cascata multienzimatica per sintetizzare D-sorbosio e D-allulosio esclusivamente a partire dal glicerolo facilmente reperibile. Infine, abbiamo ottenuto 14,8 g/L di D-sorbosio e D-allulosio a partire dal glicerolo (Li et al., 2020b). La strategia sopra descritta rappresenta un approccio molto utile ed economico per la produzione di diversi altri zuccheri rari. In breve, la biosintesi del D-allulosio tramite fermentazione basata su aldolasi dipendenti dal DHAP è molto promettente. Sarebbe più redditizio costruire una fabbrica cellulare basata su una strategia con aldolasi dipendenti dal DHAP per la sintesi del D-allulosio.
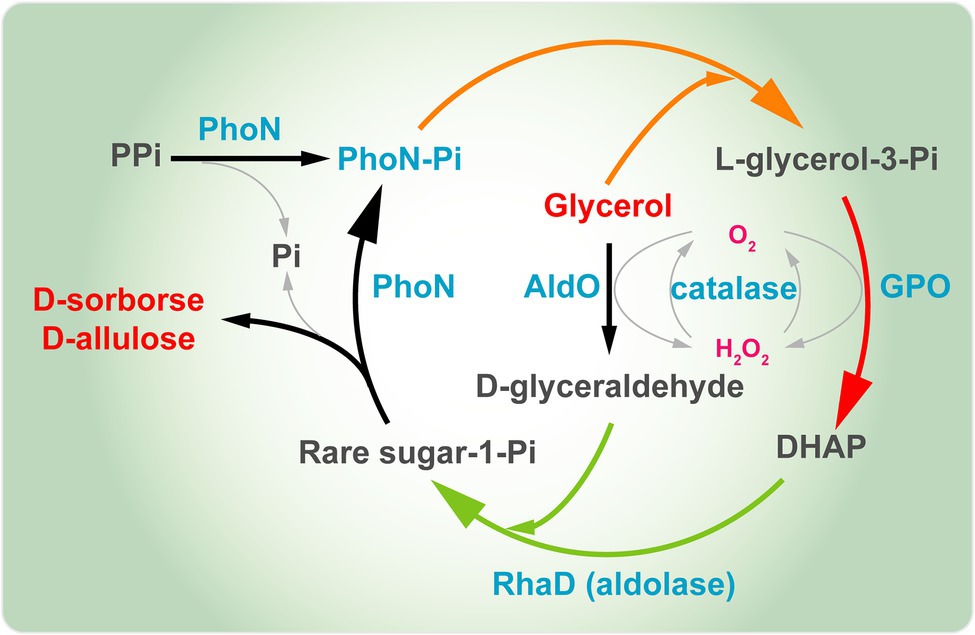
Figura 8. Sintesi multienzimatica di D-sorbosio e D-allulosio da glicerolo. PhoN, fosfatasi acida; GPO, glicerolo ossidasi; AldO, alditolo ossidasi; RhaD, L-ramnulosio-1-fosfato aldolasi; DHAP, diidrossiacetone fosfato.
Produzione di D-allulosio guidata dalla termodinamica basata sulla strategia di fosforilazione-defosforilazione
In realtà, le strategie sopra menzionate non sono ancora in grado di soddisfare la domanda di D-allulosio dell'industria alimentare. Pertanto, è interessante sviluppare una nuova strategia per la produzione di D-allulosio che comporti una bio-produzione verde altamente efficiente e a basso costo. Recentemente, You e colleghi hanno creato un biosistema enzimatico sinteticoin vitro per la produzione di D-allulosio a partire da amido economico, basandosi sulla "strategia termodinamicamente guidata" (Figura 9). Questo biosistemain vitro comprendeva cinque enzimi principali, con reazioni che procedono come segue: (1) la maltodestrina (derivato dell'amido) è stata fosforilata per produrre glucosio-1-fosfato (G1P) mediante l'α-glucano fosforilasi (αGP), con un cosubstrato fosfato. (2) Il G1P è stato convertito in glucosio-6-fosfato (G6P), catalizzato dalla fosfoglucomutasi (PGM). (3) Il G6P è stato convertito in fruttosio-6-fosfato (F6P), catalizzato dalla fosfoglucosio isomerasi (PGI). (4) L'epimerizzazione dell'F6P ha portato alla produzione di D-allulosio-6-fosfato (A6P), catalizzata dalla D-allulosio-6-fosfato 3-epimerasi (A6PE). (5) La defosforilazione dell'A6P ha portato alla produzione di D-allulosio e fosfato, catalizzata dalla D-allulosio-6-fosfato fosfatasi (A6PP). Inoltre, gli altri quattro enzimi ausiliari [isoamilasi (IA), 4-α-glucanotransferasi (4GT), polifosfato-glucochinasi (PPGK) e glucosio isomerasi (GI)] sono stati aggiunti al sistema di reazione in momenti diversi per ottenere un utilizzo completo della maltodestrina per la produzione di D-allulosio. In questo biosistema, l'energia di Gibbs della defosforilazione dell'A6P a D-allulosio è di -15,5 kJ/mol, il che è irreversibile, indicando che la fase di defosforilazione necessaria per produrre D-allulosio è termodinamicamente favorevole e unidirezionale, spingendo l'intera reazione verso il completamento. Dopo l'ottimizzazione delle condizioni di reazione, la resa di produzione di D-allulosio da 10 e 50 g/l di amido ha raggiunto rispettivamente l'88,2% e il 79,2% (Li et al., 2021). Complessivamente, questa strategia termodinamica guidata offre un'alternativa promettente per la produzione economicamente vantaggiosa di D-allulosio. Poiché il sistema contiene molti enzimi e le fasi di purificazione degli enzimi sono complesse, la strategia sopra descritta non è ancora in grado di soddisfare le esigenze di industrializzazione.
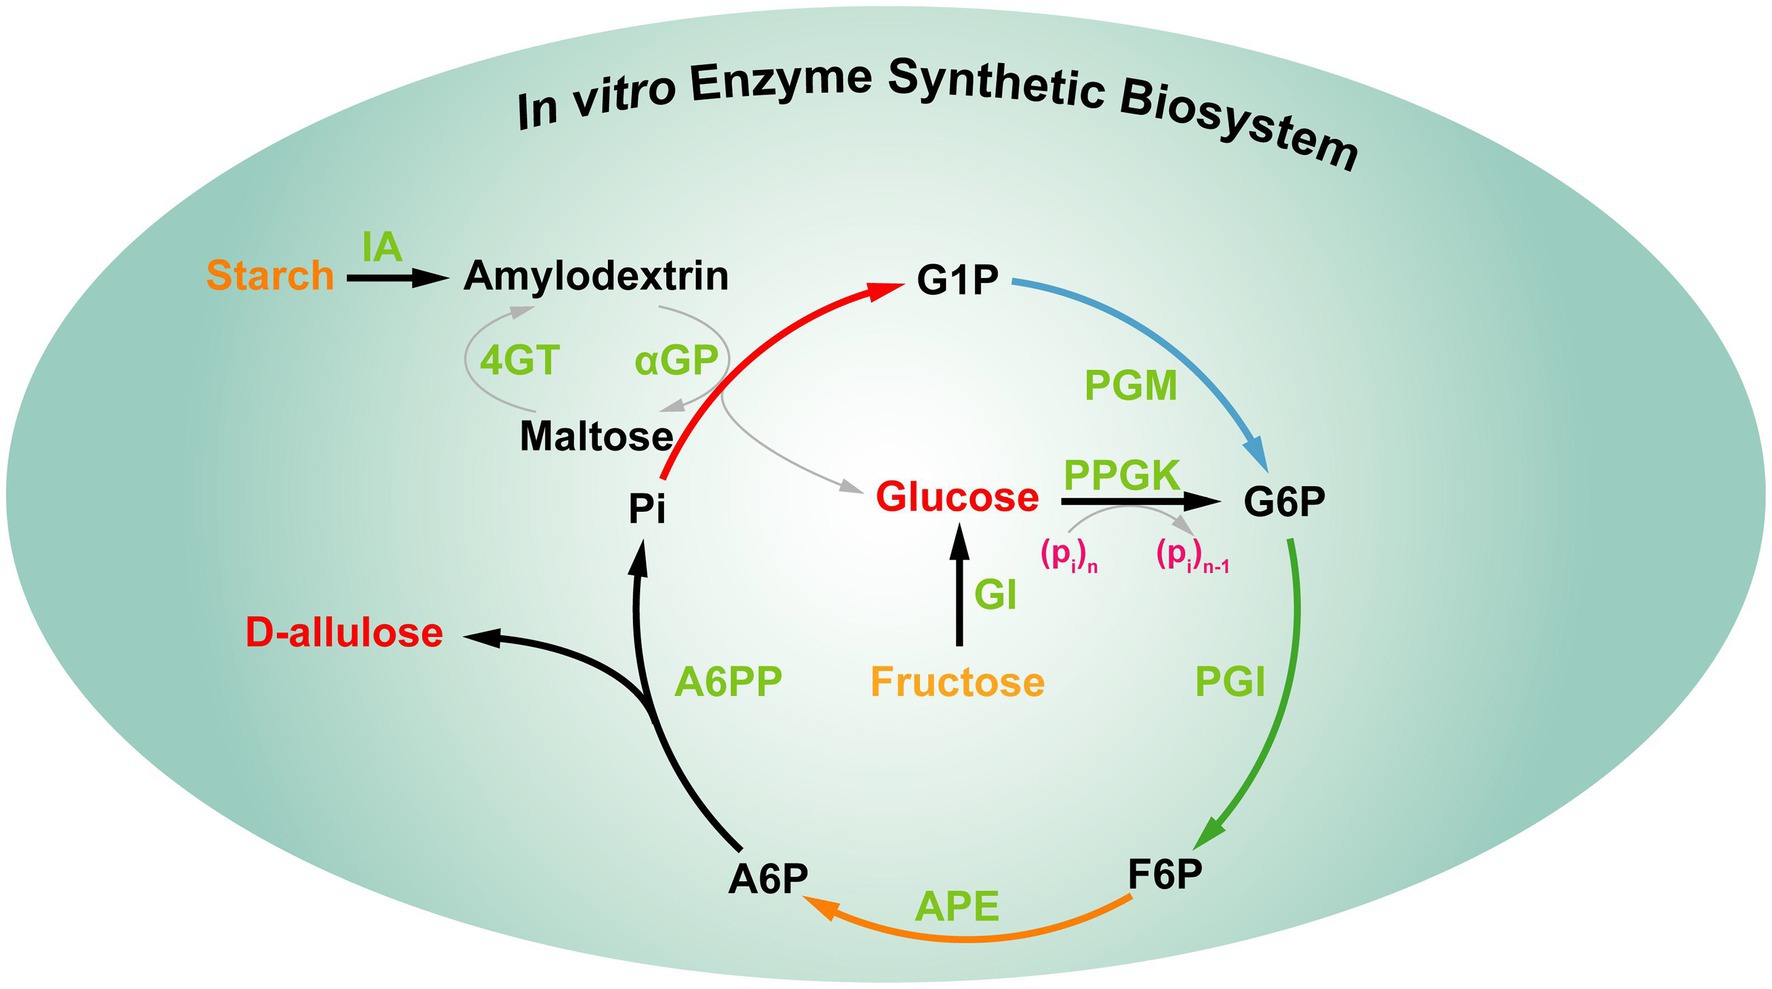
Figura 9. Sintesi multienzimaticain vitro di D-allulosio da amido. IA, isoamilasi; 4GT, 4-α-glucanotransferasi; αGP, α-glucano fosforilasi; PGM, fosfoglucomutasi; PPGK, polifosfato-glucochinasi; PGI, fosfoglucosio isomerasi; GI, glucosio isomerasi; APE, D-allulosio-6-fosfato-3-epimerasi; A6PP, D-allulosio-6-fosfato fosfatasi; G1P, glucosio-1-fosfato; G6P, glucosio-6-fosfato; F6P, fruttosio-6-fosfato; A6P, D-allulosio-6-fosfato.
Sintesi e prospettive future
Il metodo più comune per la produzione di D-allulosio si basa sulla strategia Izumoring, limitata dall'equilibrio termodinamico, il che porta a un basso tasso di conversione e a costi di sintesi relativamente elevati.
Pertanto, è necessario scoprire nuovi e robusti enzimi appartenenti alla famiglia delle DTEasi. Inoltre, sono applicabili strategie di evoluzione diretta (Zhang et al., 2016a; Zhu et al., 2019a) o l'immobilizzazione enzimatica (Ran et al., 2019; Wong et al., 2020).
Migliorare le prestazioni catalitiche della DTEasi sarà molto utile. Per la strategia basata su aldolasi dipendenti dal DHAP, il D-allulosio e il D-sorbosio vengono generati simultaneamente con l'RhaD, utilizzando la D-gliceraldeide come accettore. Per migliorare la stereoselettività delle aldolasi, vengono utilizzate diverse tecniche e metodi avanzati, tra cui l'evoluzione diretta (d’Oelsnitz and Ellington, 2018; Shepelin et al., 2018; Currin et al., 2021), tecniche di screening ad alto rendimento (Ung et al., 2018; Rienzo et al., 2021) e l'ingegneria razionale (Damborsky and Brezovsky, 2014; Windle et al., 2014; Kim et al., 2020).
È evidente che la strategia guidata dalla termodinamica sia un metodo promettente per la produzione di D-allulosio. Una delle direzioni future sarebbe la costruzione di una fabbrica cellulare microbica che utilizzi tale approccio. Diversi strumenti metabolici, come CRISPR/Cas9, possono contribuire alla produzione industriale di D-allulosio (Wu et al., 2019; Nishida and Kondo, 2021), auto-assemblaggio (Liu et al., 2019; Lange and Polizzi, 2021) e regolazione dinamica (Hartline et al., 2021; Zhu et al., 2021).
Si spera che, nel prossimo futuro, il D-allulosio diventi accessibile anche ai consumatori comuni.
Contributi degli autori
ZC ha eseguito l'elaborazione dei dati e la stesura della bozza originale. X-DG ha partecipato alla visualizzazione, alla ricerca e alla supervisione. ZL ha curato la revisione e l'editing. Tutti gli autori hanno contribuito all'articolo e hanno approvato la versione presentata.
Finanziamento
Questo lavoro è stato sostenuto dalla National Natural Science Foundation of China (n.: 32171475, 31971216), dalla China Postdoctoral Science Foundation (n.: 2021M691285), dal Shandong Provincial Major Science and Technology Innovation Project (n.: 2019JZZY011006), dalla Jiangsu Provincial Natural Science Foundation (n.: BK20210465) e dal Programma per l'Introduzione di Talenti Disciplinari nelle Università (n.: 111-2-06).
Conflitto di interessi
Gli autori dichiarano che la ricerca è stata condotta in assenza di relazioni commerciali o finanziarie che potrebbero essere interpretate come un potenziale conflitto di interessi.
Nota dell'editore
Tutte le dichiarazioni espresse nell'articolo sono esclusivamente quelle degli autori e non riflettono necessariamente quelle delle loro organizzazioni affiliate, dell'editore, dei redattori o dei revisori. Qualsiasi prodotto valutato nell'articolo, o dichiarazione fatta dal produttore, non è garantito né approvato dall'editore.
Ringraziamenti
Ringraziamo Zhou Xiaoman (Jiangnan University) per il disegno.
Riferimenti bibliografici
Basu, A., Basu, R., Shah, P., Vella, A., Johnson, C. M., Jensen, M., et al. (2001). Il diabete di tipo 2 compromette l'uptake splancnico di glucosio, ma non altera l'assorbimento intestinale del glucosio durante l'alimentazione enterale con glucosio: ulteriori prove di un difetto nell'attività della glucochinasi epatica. Diabetes 50, 1351–1362. doi: 10.2337/diabetes.50.6.1351
Bilal, M., Iqbal, H. M. N., Hu, H., Wang, W., and Zhang, X. (2018). Percorsi di ingegneria metabolica per la biosintesi di zuccheri rari, funzionalità fisiologiche e applicazioni: una revisione. Crit. Rev. Food Sci. Nutr. 58, 2768–2778. doi: 10.1080/10408398.2017.1341385
Bosshart, A., Panke, S., and Bechtold, M. (2013). L'ottimizzazione sistematica delle interazioni interfacciali aumenta la termostabilità di un enzima multimerico. Angew. Chem. Int. Ed. Engl. 52, 9673–9676. doi: 10.1002/anie.201304141
Brovetto, M., Gamenara, D., Méndez, P. S., and Seoane, G. A. (2011). Liasi che formano legami C-C nella sintesi organica. Chem. Rev. 111, 4346–4403. doi: 10.1021/cr100299p
Castro-Muñoz, R., Correa-Delgado, M., Córdova-Almeida, R., Lara-Nava, D., Chávez-Muñoz, M., Velásquez-Chávez, V. F., et al. (2022). Dolcificanti naturali: fonti, estrazione e usi attuali negli alimenti e nelle industrie alimentari. Food Chem. 370:130991. doi: 10.1016/j.foodchem.2021.130991
Chen, J., Huang, W., Zhang, T., Lu, M., and Jiang, B. (2019). Potenziale anti-obesità dello zucchero raro D-psicosio tramite la regolazione del metabolismo dei lipidi nei ratti. Food Funct. 10, 2417–2425. doi: 10.1039/c8fo01089g
Chen, Z., Li, Z., Li, F., Wang, N., and Gao, X.-D. (2020b). Caratterizzazione dell'alditolo ossidasi di Streptomyces coelicolor e sua applicazione nella produzione di zuccheri rari. Bioorg. Med. Chem. 28:115464. doi: 10.1016/j.bmc.2020.115464
Chen, Z., Li, Z., Li, F., Wang, M., Wang, N., and Gao, X.-D. (2020a). Sintesi a cascata di chetosi rare tramite cellule intere basata sull'L-ramnulosio-1-fosfato aldolasi. Enzym. Microb. Technol. 133:109456. doi: 10.1016/j.enzmictec.2019.109456
Chen, X., Wang, W., Xu, J., Yuan, Z., Yuan, T., Zhang, Y., et al. (2017). Produzione di D-psicosio dal D-glucosio tramite co-espressione di D-psicosio 3-epimerasi e xilosio isomerasi. Enzym. Microb. Technol. 105, 18–23. doi: 10.1016/j.enzmictec.2017.06.003
Chen, J., Zhu, Y., Fu, G., Song, Y., Jin, Z., Sun, Y., et al. (2016). Produzione intra- ed extracellulare ad alto livello di D-psicosio 3-epimerasi tramite un sistema di espressione modificato inducibile dallo xilosio in Bacillus subtilis. J. Ind. Microbiol. Biotechnol. 43, 1577–1591. doi: 10.1007/s10295-016-1819-6
Chung, Y. M., Hyun Lee, J., Youl Kim, D., Hwang, S. H., Hong, Y. H., Kim, S. B., et al. (2012). Il D-psicosio dietetico ha ridotto la massa grassa viscerale nei ratti obesi indotti da dieta ad alto contenuto di grassi. J. Food Sci. 77, H53–H58. doi: 10.1111/j.1750-3841.2011.02571.x
Currin, A., Parker, S., Robinson, C. J., Takano, E., Scrutton, N. S., and Breitling, R. (2021). L'arte in evoluzione di creare diversità genetica: dall'evoluzione diretta alla biologia sintetica. Biotechnol. Adv. 50:107762. doi: 10.1016/j.biotechadv.2021.107762
Dai, Y., Zhang, J., Jiang, B., Zhang, T., and Chen, J. (2021). Nuova strategia per la biosintesi di zuccheri rari: reazioni di aldolizzazione utilizzando aldolasi dipendenti dal diidrossiacetone fosfato (DHAP). Food Biosci. 44:101377. doi: 10.1016/j.fbio.2021.101377
Damborsky, J., and Brezovsky, J. (2014). Strumenti computazionali per progettare e ingegnerizzare enzimi. Curr. Opin. Chem. Biol. 19, 8–16. doi: 10.1016/j.cbpa.2013.12.003
d’Oelsnitz, S., and Ellington, A. (2018). Evoluzione diretta continua per l'ingegneria dei ceppi e delle proteine. Curr. Opin. Biotechnol. 53, 158–163. doi: 10.1016/j.copbio.2017.12.020
Doner, L. W. (1979). Isomerizzazione del D-fruttosio tramite base: valutazione tramite cromatografia liquida e isolamento del D-psicosio. Carbohydr. Res. 70, 209–216. doi: 10.1016/S0008-6215(00)87101-3
Granström, T. B., Takata, G., Tokuda, M., and Izumori, K. (2004). Izumoring: una strategia nuova e completa per la bioproduzione di zuccheri rari. J. Biosci. Bioeng. 97, 89–94. doi: 10.1016/S1389-1723(04)70173-5
Grassi, B., Onetto, M. T., Zapata, Y., Jofré, P., and Echeverría, G. (2021). Dose di saccarosio ridotta rispetto a quella standard per il trattamento dell'ipoglicemia in pazienti con diabete mellito di tipo 1 in terapia con pompe per insulina a sospensione predittiva dell'ipoglicemia (PLGS): uno studio randomizzato crossover a Santiago, Cile. Diabetes Metab. Syndr. Clin. Res. Rev. 15, 695–701. doi: 10.1016/j.dsx.2021.03.017
Guerrero-Wyss, M., Durán Agüero, S., and Angarita Dávila, L. (2018). Il D-tagatosio è un dolcificante promettente per controllare la glicemia: un nuovo alimento funzionale. Biomed. Res. Int. 2018:8718053. doi: 10.1155/2018/8718053
Gustavo, S. (2000). Reazioni di formazione di legami C-C enzimatiche nella sintesi organica. Curr. Org. Chem. 4, 283–304. doi: 10.2174/1385272003376283
Han, Y., Han, H. J., Kim, A. H., Choi, J. Y., Cho, S. J., Park, Y. B., et al. (2016). L'integrazione di D-allulosio ha normalizzato il peso corporeo e la massa del tessuto adiposo in topi obesi indotti dalla dieta tramite la regolazione del metabolismo lipidico in condizioni di alimentazione isocalorica. Mol. Nutr. Food Res. 60, 1695–1706. doi: 10.1002/mnfr.201500771
Hartline, C. J., Schmitz, A. C., Han, Y., and Zhang, F. (2021). Controllo dinamico nell'ingegneria metabolica: teorie, strumenti e applicazioni. Metab. Eng. 63, 126–140. doi: 10.1016/j.ymben.2020.08.015
Hayakawa, M., Hira, T., Nakamura, M., Iida, T., Kishimoto, Y., and Hara, H. (2018). La secrezione di GLP-1, ma non di GIP, è potentemente stimolata dal D-allulosio (D-psicosio) luminale nei ratti. Biochem. Biophys. Res. Commun. 496, 898–903. doi: 10.1016/j.bbrc.2018.01.128
Hayashi, N., Iida, T., Yamada, T., Okuma, K., Takehara, I., Yamamoto, T., et al. (2010). Studio sull'effetto di soppressione della glicemia postprandiale del D-psicosio nel diabete borderline e sulla sicurezza dell'ingestione a lungo termine da parte di soggetti umani normali. Biosci. Biotechnol. Biochem. 74, 510–519. doi: 10.1271/bbb.90707
He, W., Jiang, B., Mu, W., and Zhang, T. (2016). Produzione di D-allulosio con D-psicosio 3-epimerasi espressa e visualizzata sulla superficie delle spore di Bacillus subtilis. J. Agric. Food Chem. 64, 7201–7207. doi: 10.1021/acs.jafc.6b03347
Herling, A. W., Burger, H.-J., Schwab, D., Hemmerle, H., Below, P., and Schubert, G. (1998). Profilo farmacodinamico di un nuovo inibitore del sistema epatico glucosio-6-fosfatasi. Am. J. Phys. 274, G1087–G1093. doi: 10.2337/diabetes.47.5.85
Hoshikawa, H., Kamitori, K., Indo, K., Mori, T., Kamata, M., Takahashi, T., et al. (2018). Il trattamento combinato con D-allosio, docetaxel e radiazioni inibisce la crescita tumorale in un modello in vivo di cancro alla testa e al collo. Oncol. Lett. 15, 3422–3428. doi: 10.3892/ol.2018.7787
Hossain, A., Yamaguchi, F., Matsuo, T., Tsukamoto, I., Toyoda, Y., Ogawa, M., et al. (2015). Il raro zucchero D-allulosio: ruolo potenziale e monitoraggio terapeutico nel mantenimento dell'obesità e del diabete mellito di tipo 2. Pharmacol. Therapeut. 155, 49–59. doi: 10.1016/j.pharmthera.2015.08.004
Iida, T., Kishimoto, Y., Yoshikawa, Y., Hayashi, N., Okuma, K., Tohi, M., et al. (2008). La somministrazione acuta di D-psicosio riduce le risposte glicemiche a un test di tolleranza orale alla maltodestrina in adulti normali. J. Nutr. Sci. Vitaminol. 54, 511–514. doi: 10.3177/jnsv.54.511
Itoh, H., Sato, T., and Izumori, K. (1995). Preparazione del D-psicosio dal D-fruttosio tramite D-tagatosio 3-epimerasi immobilizzata. J. Ferment. Bioeng. 79, 184–185. doi: 10.1016/0922-338X(95)94091-5
Iturrate, L., Sánchez-Moreno, I., Oroz-Guinea, I., Pérez-Gil, J., and García-Junceda, E. (2010). Preparazione e caratterizzazione di un enzima bifunzionale aldolasi/chinasi: un biocatalizzatore più efficiente per la formazione di legami C-C. Chemistry 16, 4018–4030. doi: 10.1002/chem.200903096
Iwasaki, Y., Sendo, M., Dezaki, K., Hira, T., Sato, T., Nakata, M., et al. (2018). Il rilascio di GLP-1 e l'attivazione afferente vagale mediano gli effetti metabolici e cronoterapeutici benefici del D-allulosio. Nat. Commun. 9:113. doi: 10.1038/s41467-017-02488-y
Izumori, K. (2006). Izumoring: una strategia per la bioproduzione di tutti gli esosi. J. Biotechnol. 124, 717–722. doi: 10.1016/j.jbiotec.2006.04.016
Jia, M., Mu, W., Chu, F., Zhang, X., Jiang, B., Zhou, L. L., et al. (2014). Una D-psicosio 3-epimerasi con pH ottimale neutro da Clostridium bolteae per la produzione di D-psicosio: clonazione, espressione, purificazione e caratterizzazione. Appl. Microbiol. Biotechnol. 98, 717–725. doi: 10.1007/s00253-013-4924-8
Kanasaki, A., Jiang, Z., Mizokami, T., Shirouchi, B., Iida, T., Nagata, Y., et al. (2019). Il D-allulosio altera i livelli di colesterolo sierico in parte riducendo i livelli sierici di pcsk9 nei criceti. Atherosclerosis 287:e201. doi: 10.1016/j.atherosclerosis.2019.06.611
Khan, S. A., Verma, P., Ur Rahman, L., and Parasharami, V. A. (2021). “Capitolo 13 – Esplorazione di studi biotecnologici nel dolcificante a basso contenuto calorico Stevia rebaudiana: prospettive presenti e future,” in Piante medicinali e aromatiche: ampliare i loro orizzonti attraverso l'omica. eds. T. Aftab and K. R. Hakeem (Academic Press), 289–324.
Kim, H.-J., Hyun, E.-K., Kim, Y.-S., Lee, Y.-J., and Oh, D.-K. (2006). Caratterizzazione di una D-psicosio 3-epimerasi di Agrobacterium tumefaciens che converte il D-fruttosio in D-psicosio. Appl. Environ. Microbiol. 72, 981–985. doi: 10.1128/AEM.72.2.981-985.2006
Abstract di PubMed | Testo completo CrossRef | Google Scholar
Kim, S.-E., Kim, S. J., Kim, H.-J., e Sung, M.-K. (2017). D-Psicose, a sugar substitute, suppresses body fat deposition by altering networks of inflammatory response and lipid metabolism in C57BL/6J-ob/ob mice. J. Funct. Foods 28, 265–274. doi: 10.1016/j.jff.2016.11.029
Kim, T., Stogios, P. J., Khusnutdinova, A. N., Nemr, K., Skarina, T., Flick, R., et al. (2020). Rational engineering of 2-deoxyribose-5-phosphate aldolases for the biosynthesis of (R)-1,3-butanediol. J. Biol. Chem. 295, 597–609. doi: 10.1074/jbc.RA119.011363
Abstract di PubMed | Testo completo CrossRef | Google Scholar
Kimura, T., Kanasaki, A., Hayashi, N., Yamada, T., Iida, T., Nagata, Y., et al. (2017). D-Allulose enhances postprandial fat oxidation in healthy humans. Nutrition 43–44, 16–20. doi: 10.1016/j.nut.2017.06.007
Abstract di PubMed | Testo completo CrossRef | Google Scholar
Lai, W. T., Khong, N. M. H., Lim, S. S., Hee, Y. Y., Sim, B. I., Lau, K. Y., et al. (2017). A review: modified agricultural by-products for the development and fortification of food products and nutraceuticals. Trends Food Sci. Technol. 59, 148–160. doi: 10.1016/j.tifs.2016.11.014
Lange, O. J., e Polizzi, K. M. (2021). Click it or stick it: covalent and non-covalent methods for protein-self assembly. Curr. Opin. Syst. Biol. 28:100374. doi: 10.1016/j.coisb.2021.100374
Lee, D., Han, Y., Kwon, E. Y., e Choi, M. S. (2020). D-allulose ameliorates metabolic dysfunction in C57BL/KsJ-db/db mice. Molecules 25:3656. doi: 10.3390/molecules25163656
Abstract di PubMed | Testo completo CrossRef | Google Scholar
Li, A., Cai, L., Chen, Z., Wang, M., Wang, N., Nakanishi, H., et al. (2017). Recent advances in the synthesis of rare sugars using DHAP-dependent aldolases. Carbohydr. Res. 452, 108–115. doi: 10.1016/j.carres.2017.10.009
Abstract di PubMed | Testo completo CrossRef | Google Scholar
Li, Z., Cai, L., Wei, M., e Wang, P. G. (2012). One-pot four-enzyme synthesis of ketoses with fructose 1,6-bisphosphate aldolases from Staphylococcus carnosus and rabbit muscle. Carbohydr. Res. 357, 143–146. doi: 10.1016/j.carres.2012.05.007
Abstract di PubMed | Testo completo CrossRef | Google Scholar
Li, Z., He, B., Gao, Y., e Cai, L. (2015a). Synthesis of D-sorbose and D-psicose by recombinant Escherichia coli. J. Carbohydr. Chem. 34, 349–357. doi: 10.1080/07328303.2015.1068794
Li, Z., Li, F., Cai, L., Chen, Z., Qin, L., e Gao, X.-D. (2020b). One-pot multienzyme synthesis of rare ketoses from glycerol. J. Agric. Food Chem. 68, 1347–1353. doi: 10.1021/acs.jafc.9b06748
Abstract di PubMed | Testo completo CrossRef | Google Scholar
Li, Z., Li, Y., Duan, S., Liu, J., Yuan, P., Nakanishi, H., et al. (2015b). Bioconversion of D-glucose to D-psicose with immobilized D-xylose isomerase and D-psicose 3-epimerase on Saccharomyces cerevisiae spores. J. Ind. Microbiol. 42, 1117–1128. doi: 10.1007/s10295-015-1631-8
Abstract di PubMed | Testo completo CrossRef | Google Scholar
Li, C., Lin, J., Guo, Q., Zhang, C., Du, K., Lin, H., et al. (2018). D-Psicose 3-epimerase secretory overexpression, immobilization, and D-psicose biotransformation, separation and crystallization. J. Chem. Technol. Biotechnol. 93, 350–357. doi: 10.1002/jctb.5360
Li, Y., Shi, T., Han, P., e You, C. (2021). Thermodynamics-driven production of value-added D-allulose from inexpensive starch by an in vitro enzymatic synthetic biosystem. ACS Catal. 11, 5088–5099. doi: 10.1021/acscatal.0c05718
Li, W., Zhu, Y., Jiang, X., Zhang, W., Guang, C., e Mu, W. (2020a). One-pot production of D-allulose from inulin by a novel identified thermostable exoinulinase from Aspergillus piperis and Dorea sp. D-allulose 3-epimerase. Process Biochem. 99, 87–95. doi: 10.1016/j.procbio.2020.08.021
Lim, B. C., Kim, H. J., e Oh, D. K. (2009). A stable immobilized D-psicose 3-epimerase for the production of D-psicose in the presence of borate. Process Biochem. 44, 822–828. doi: 10.1016/j.procbio.2009.03.017
Liu, S., Ammirati, M. J., Song, X., Knafels, J. D., Zhang, J., Greasley, S. E., et al. (2012). Insights into mechanism of glucokinase activation: observation of multiple distinct protein conformations. J. Biol. Chem. 287, 13598–13610. doi: 10.1074/jbc.M111.274126
Abstract di PubMed | Testo completo CrossRef | Google Scholar
Liu, Z., Cao, S., Liu, M., Kang, W., e Xia, J. (2019). Self-assembled multienzyme nanostructures on synthetic protein scaffolds. ACS Nano 13, 11343–11352. doi: 10.1021/acsnano.9b04554
Abstract di PubMed | Testo completo CrossRef | Google Scholar
Lloyd, D. J., St Jean, D. J., Kurzeja, R. J., Wahl, R. C., Michelsen, K., Cupples, R., et al. (2013). Antidiabetic effects of glucokinase regulatory protein small-molecule disruptors. Nature 504, 437–440. doi: 10.1038/nature12724
Abstract di PubMed | Testo completo CrossRef | Google Scholar
Matsuo, T., e Izumori, K. (2009). D-Psicose inhibits intestinal alpha-glucosidase and suppresses the glycemic response after ingestion of carbohydrates in rats. J. Clin. Biochem. Nutr. 45, 202–206. doi: 10.3164/jcbn.09-36
Abstract di PubMed | Testo completo CrossRef | Google Scholar
Matsuo, T., Suzuki, H., Hashiguchi, M., e Izumori, K. (2002). D-psicose is a rare sugar that provides no energy to growing rats. J. Nutr. Sci. Vitaminol. 48, 77–80. doi: 10.3177/jnsv.48.77
McDonald, E. J. (1967). A new synthesis of D-psicose (D-ribo-hexulose). Carbohydr. Res. 5, 106–108. doi: 10.1016/0008-6215(67)85014-6
Moller, D., and Berger, J. (2003). Role of PPARs in the regulation of obesity-related insulin sensitivity and inflammation. Int. J. Obes. 27, S17–S21. doi: 10.1038/sj.ijo.0802494
Nagata, Y., Kanasaki, A., Tamaru, S., and Tanaka, K. (2015). D-psicose, an epimer of D-fructose, favorably alters lipid metabolism in Sprague–Dawley rats. J. Agric. Food Chem. 63, 3168–3176. doi: 10.1021/jf502535p
Narayan Patel, S., Singh, V., Sharma, M., Sangwan, R. S., Singhal, N. K., and Singh, S. P. (2018). Development of a thermo-stable and recyclable magnetic nanobiocatalyst for bioprocessing of fruit processing residues and D-allulose synthesis. Bioresour. Technol. 247, 633–639. doi: 10.1016/j.biortech.2017.09.112
Natsume, Y., Yamada, T., Iida, T., Ozaki, N., Gou, Y., Oshida, Y., et al. (2021). Investigation of D-allulose effects on high-sucrose diet-induced insulin resistance via hyperinsulinemic-euglycemic clamps in rats. Heliyon 7:e08013. doi: 10.1016/j.heliyon.2021.e08013
Nishida, K., and Kondo, A. (2021). CRISPR-derived genome editing technologies for metabolic engineering. Metab. Eng. 63, 141–147. doi: 10.1016/j.ymben.2020.12.002
Ochiai, M., Onishi, K., Yamada, T., Iida, T., and Matsuo, T. (2014). D-psicose increases energy expenditure and decreases body fat accumulation in rats fed a high-sucrose diet. Int. J. Food Sci. Nutr. 65, 245–250. doi: 10.3109/09637486.2013.845653
Park, S. Y., and Yoon, K. Y. (2015). Enzymatic production of soluble dietary fiber from the cellulose fraction of Chinese cabbage waste and potential use as a functional food source. Food Sci. Biotechnol. 24, 529–535. doi: 10.1007/s10068-015-0069-0
Pfefferkorn, J. A. (2013). Strategies for the design of hepatoselective glucokinase activators to treat type 2 diabetes. Expert. Opin. Drug. Discov. 8, 319–330. doi: 10.1517/17460441.2013.748744
Qi, Z., Zhu, Z., Wang, J.-W., Li, S., Guo, Q., Xu, P., et al. (2017). Biochemical analysis and the preliminary crystallographic characterization of D-tagatose 3-epimerase from Rhodobacter sphaeroides. Microb. Cell Factories 16:193. doi: 10.1186/s12934-017-0808-4
Ran, G., Tan, D., Zhao, J., Fan, F., Zhang, Q., Wu, X., et al. (2019). Functionalized polyhydroxyalkanoate nano-beads as a stable biocatalyst for cost-effective production of the rare sugar D-allulose. Bioresour. Technol. 289:121673. doi: 10.1016/j.biortech.2019.121673
Rienzo, M., Jackson, S. J., Chao, L. K., Leaf, T., Schmidt, T. J., Navidi, A. H., et al. (2021). High-throughput screening for high-efficiency small-molecule biosynthesis. Metab. Eng. 63, 102–125. doi: 10.1016/j.ymben.2020.09.004
Sánchez-Moreno, I., Francisco García-García, J., Bastida, A., and García-Junceda, E. (2004). Multienzyme system for dihydroxyacetone phosphate-dependent aldolase catalyzed C–C bond formation from dihydroxyacetone. Chem. Commun. 35, 1634–1635. doi: 10.1002/chin.200447149
Schümperli, M., Pellaux, R., and Panke, S. (2007). Chemical and enzymatic routes to dihydroxyacetone phosphate. Appl. Microbiol. Biotechnol. 75, 33–45. doi: 10.1007/s00253-007-0882-3
Shepelin, D., Hansen, A. S. L., Lennen, R., Luo, H., and Herrgård, M. J. (2018). Selecting the best: evolutionary engineering of chemical production in microbes. Genes 9:249. doi: 10.3390/genes9050249
Shintani, T., Sakoguchi, H., Yoshihara, A., Izumori, K., and Sato, M. (2017a). D-Allulose, a stereoisomer of D-fructose, extends Caenorhabditis elegans lifespan through a dietary restriction mechanism: a new candidate dietary restriction mimetic. Biochem. Biophys. Res. Commun. 493, 1528–1533. doi: 10.1016/j.bbrc.2017.09.147
Shintani, T., Yamada, T., Hayashi, N., Iida, T., Nagata, Y., Ozaki, N., et al. (2017b). Rare sugar syrup containing D-allulose but not high-fructose corn syrup maintains glucose tolerance and insulin sensitivity partly via hepatic glucokinase translocation in Wistar rats. J. Agric. Food Chem. 65, 2888–2894. doi: 10.1021/acs.jafc.6b05627
Song, Y., Nguyen, Q. A., Wi, S. G., Yang, J., and Bae, H. J. (2016). Strategy for dual production of bioethanol and D-psicose as value-added products from cruciferous vegetable residue. Bioresour. Technol. 223, 34–39. doi: 10.1016/j.biortech.2016.10.021
Song, Y., Oh, C., and Bae, H.-J. (2017). Simultaneous production of bioethanol and value-added D-psicose from Jerusalem artichoke (Helianthus tuberosus L.) tubers. Bioresour. Technol. 244, 1068–1072. doi: 10.1016/j.biortech.2017.08.079
Su, L., Sun, F., Liu, Z., Zhang, K., and Wu, J. (2018). Highly efficient production of clostridium cellulolyticum H10 D-psicose 3-epimerase in Bacillus subtilis and use of these cells to produce D-psicose. Microb. Cell Factories 17:188. doi: 10.1186/s12934-018-1037-1
Suna, S., Yamaguchi, F., Kimura, S., Tokuda, M., and Jitsunari, F. (2007). Preventive effect of D-psicose, one of rare ketohexoses, on di-(2-ethylhexyl) phthalate (DEHP)-induced testicular injury in rat. Toxicol. Lett. 173, 107–117. doi: 10.1016/j.toxlet.2007.06.015
Takata, M. K., Yamaguchi, F., Nakanose, K., Watanabe, Y., Hatano, N., Tsukamoto, I., et al. (2005). Neuroprotective effect of D-psicose on 6-hydroxydopamine-induced apoptosis in rat pheochromocytoma (PC12) cells. J. Biosci. Bioeng. 100, 511–516. doi: 10.1263/jbb.100.511
Toyoda, Y., Mori, S., Umemura, N., Futamura, N., Inoue, H., Hata, T., et al. (2010). Suppression of blood glucose levels by D-psicose in glucose tolerance test in diabetic rats. Jpn. Pharmacol. Ther. 65, 2888–2894. doi: 10.1021/acs.jafc.6b05627
Tseng, C.-W., Liao, C.-Y., Sun, Y., Peng, C.-C., Tzen, J. T. C., Guo, R.-T., et al. (2014). Immobilization of clostridium cellulolyticum D-psicose 3-epimerase on artificial oil bodies. J. Agric. Food Chem. 62, 6771–6776. doi: 10.1021/jf502022w
Ung, Y. T., Ong, C. E., and Pan, Y. (2018). Current high-throughput approaches of screening modulatory effects of xenobiotics on cytochrome P450 (CYP) enzymes. High Throughput. 7:29. doi: 10.3390/ht7040029
Wagner, N., Bosshart, A., Failmezger, J., Bechtold, M., and Panke, S. (2015). A separation-integrated cascade reaction to overcome thermodynamic limitations in rare-sugar synthesis. Angew. Chem. Int. Ed. Engl. 54, 4182–4186. doi: 10.1002/anie.201411279
Wei, M., Li, Z., Li, T., Wu, B., Liu, Y., Qu, J., et al. (2015). Transforming flask reaction into cell-based synthesis: production of polyhydroxylated molecules via engineered Escherichia coli. ACS Catal. 5, 4060–4065. doi: 10.1021/acscatal.5b00953
Windle, C. L., Müller, M., Nelson, A., and Berry, A. (2014). Engineering aldolases as biocatalysts. Curr. Opin. Chem. Biol. 19, 25–33. doi: 10.1016/j.cbpa.2013.12.010
Wong, J. X., Ogura, K., Chen, S., and Rehm, B. H. A. (2020). Bioengineered polyhydroxyalkanoates as immobilized enzyme scaffolds for industrial applications. Front. Bioeng. Biotechnol. 8:156. doi: 10.3389/fbioe.2020.00156
Wu, Y., Chen, T., Liu, Y., Tian, R., Lv, X., Li, J., et al. (2019). Design of a programmable biosensor-CRISPRi genetic circuits for dynamic and autonomous dual-control of metabolic flux in Bacillus subtilis. Nucleic Acids Res. 48, 996–1009. doi: 10.1093/nar/gkz1123
Wu, S., and Li, Z. (2018). Whole-cell cascade biotransformations for one-pot multistep organic synthesis. ChemCatChem 10, 2164–2178. doi: 10.1002/cctc.201701669
Xia, Y., Cheng, Q., Mu, W., Hu, X., Sun, Z., Qiu, Y., et al. (2021). Research advances of D-allulose: An overview of physiological functions, enzymatic biotransformation technologies, and production processes. Foods 10:2186. doi: 10.3390/foods10092186
Yang, J., Tian, C., Zhang, T., Ren, C., Zhu, Y., Zeng, Y., et al. (2019). Development of food-grade expression system for D-allulose 3-epimerase preparation with tandem isoenzyme genes in Corynebacterium glutamicum and its application in conversion of cane molasses to D-allulose. Biotechnol. Bioeng. 116, 745–756. doi: 10.1002/bit.26909
Yang, J., Zhu, Y., Li, J., Men, Y., Sun, Y., and Ma, Y. (2015). Biosynthesis of rare ketoses through constructing a recombination pathway in an engineered Corynebacterium glutamicum. Biotechnol. Bioeng. 112, 168–180. doi: 10.1002/bit.25345
Yang, J., Zhu, Y., Men, Y., Sun, S., Zeng, Y., Zhang, Y., et al. (2016). Pathway construction in Corynebacterium glutamicum and strain engineering to produce rare sugars from glycerol. J. Agric. Food Chem. 64, 9497–9505. doi: 10.1021/acs.jafc.6b03423
Yoshihara, A., Kozakai, T., Shintani, T., Matsutani, R., Ohtani, K., Iida, T., et al. (2017). Purification and characterization of D-allulose 3-epimerase derived from Arthrobacter globiformis M30, a GRAS microorganism. J. Biosci. Bioeng. 123, 170–176. doi: 10.1016/j.jbiosc.2016.09.004
Zhang, W., Chen, D., Chen, J., Xu, W., Chen, Q., Wu, H., et al. (2021). D-allulose, a versatile rare sugar: recent biotechnological advances and challenges. Crit. Rev. Food Sci. Nutr. doi: 10.1080/10408398.2021.2023091
Zhang, W., Jia, M., Yu, S., Zhang, T., Zhou, L., Jiang, B., et al. (2016a). Improving the thermostability and catalytic efficiency of the D-psicose 3-epimerase from Clostridium bolteae ATCC BAA-613 using site-directed mutagenesis. J. Agric. Food Chem. 64, 3386–3393. doi: 10.1021/acs.jafc.6b01058
Zhang, W., Li, H., Jiang, B., Zhang, T., and Mu, W. (2017). Production of D-allulose from D-glucose by Escherichia coli transformant cells co-expressing D-glucose isomerase and D-psicose 3-epimerase genes. J. Sci. Food Agric. 97, 3420–3426. doi: 10.1002/jsfa.8193
Zhang, W., Li, H., Zhang, T., Jiang, B., Zhou, L., and Mu, W. (2015). Characterization of a D-psicose 3-epimerase from Dorea sp. CAG317 with an acidic pH optimum and a high specific activity. J. Mol. Catal. B Enzym. 120, 68–74. doi: 10.1016/j.molcatb.2015.05.018
Zhang, J., Xu, C., Chen, X., Ruan, X., Zhang, Y., Xu, H., et al. (2020). Engineered Bacillus subtilis harbouring gene of D-tagatose 3-epimerase for the bioconversion of D-fructose into D-psicose through fermentation. Enzym. Microb. Technol. 136:109531. doi: 10.1016/j.enzmictec.2020.109531
Zhang, W., Yu, S., Zhang, T., Jiang, B., and Mu, W. (2016b). Recent advances in D-allulose: physiological functionalities, applications, and biological production. Trends Food Sci. Technol. 54, 127–137. doi: 10.1016/j.tifs.2016.06.004
Zhang, W., Zhang, T., Jiang, B., and Mu, W. (2016c). Biochemical characterization of a D-psicose 3-epimerase from Treponema primitia ZAS-1 and its application on enzymatic production of D-psicose. J. Sci. Food Agric. 96, 49–56. doi: 10.1002/jsfa.7187
Zhu, Z., Gao, D., Li, C., Chen, Y., Zhu, M., Liu, X., et al. (2019a). Redesign of a novel D-allulose 3-epimerase from Staphylococcus aureus for thermostability and efficient biocatalytic production of D-allulose. Microb. Cell Factories 18:59. doi: 10.1186/s12934-019-1107-z
Zhu, Z., Li, C., Liu, X., Gao, D., Wang, X., Tanokura, M., et al. (2019b). Biochemical characterization and biocatalytic application of a novel D-tagatose 3-epimerase from Sinorhizobium sp. RSC Adv. 9, 2919–2927. doi: 10.1039/C8RA10029B
Zhu, Y., Li, Y., Xu, Y., Zhang, J., Ma, L., Qi, Q., et al. (2021). Development of bifunctional biosensors for sensing and dynamic control of glycolysis flux in metabolic engineering. Metab. Eng. 68, 142–151. doi: 10.1016/j.ymben.2021.09.011
Parole chiave: zuccheri rari, D-allulosio, D-allulosio 3-epimerasi, biosintesi, aldolasi, applicazioni
Citazione: Chen Z, Gao XD e Li Z (2022) Nuovi progressi sulle funzioni fisiologiche e la biosintesi del D-allulosio. Front. Microbiol . 13:881037. doi: 10.3389/fmicb.2022.881037
Revisionato da:
Youqiang Xu , Università di Tecnologia e Commercio di Pechino, Cina;Xinqiang Xie , Accademia delle Scienze del Guangdong, Cina.
Copyright © 2022 Chen, Gao e Li. Questo è un articolo ad accesso aperto distribuito secondo i termini della licenza Creative Commons Attribution (CC BY). L'uso, la distribuzione o la riproduzione in altri forum sono consentiti, a condizione che l'autore/i originale/i e il detentore del copyright siano citati e che la pubblicazione originale in questa rivista sia citata, in conformità con la pratica accademica accettata. Non è consentito alcun uso, distribuzione o riproduzione che non sia conforme a questi termini.
*Corrispondenza: Zijie Li, lizijie@jiangnan.edu.cn
Disclaimer: Tutte le dichiarazioni espresse in questo articolo sono esclusivamente quelle degli autori e non riflettono necessariamente quelle delle loro organizzazioni affiliate, dell'editore, dei redattori o dei revisori. L'editore non garantisce né approva alcun prodotto valutato in questo articolo o le dichiarazioni rilasciate dal produttore.
