

Neueste Ergebnisse zu den physiologischen Funktionen und der Biosynthese von D-Allulose
Allulose StoreAnhörung der Seite
Quelle: frontiers
Bereich Lebensmittelmikrobiologie
Band 13 - 2022 |https://doi.org/10.3389/fmicb.2022.881037
Dieser Artikel ist Teil des ForschungsthemasInnovative mikrobielle Technologien für eine zukunftsfähige und nachhaltige Lebensmittelwissenschaft
Neueste Ergebnisse zu den physiologischen Funktionen und der Biosynthese von D-Allulose
- Schlüssellabor für Kohlenhydratchemie und Biotechnologie, Bildungsministerium, School of Biotechnology, Jiangnan University, Wuxi, China
D-Allulose, ein allgemein als sicher (GRAS) eingestufter Zucker, kommt in der Natur selten vor.
Aufgrund ihres niedrigen Kaloriengehalts, ihres sacharoseähnlichen Geschmacks und ihrer einzigartigen Funktionen ist sie eines der vielversprechendsten Süßungsmittel für die zukünftige Verwendung.
D-Allulose hat zahlreiche physiologische Wirkungen, wie z. B. Anti-Adipositas-, Anti-Hyperglykämie-, Anti-Diabetes-, entzündungshemmende, antioxidative und neuroprotektive Wirkungen.
Daher besitzt D-Allulose einen wichtigen Anwendungswert in der Lebensmittelindustrie, der Pharmaindustrie und im Gesundheitswesen.
Die hohen Kosten für die Herstellung von D-Allulose schränken jedoch ihre großflächige Anwendung ein. Derzeit ist die Biotransformation für die Synthese von D-Allulose sehr attraktiv; die zwei Hauptmethoden der Biosynthese sind die Izumoring-Strategie und die DHAP-abhängige Aldolase-Strategie.
Dieser Artikel bietet einen Überblick über die neuesten Ergebnisse zu den physiologischen Funktionen und der Biosynthese von D-Allulose. Darüber hinaus werden die Zukunftsaussichten für die Produktion von D-Allulose aufgezeigt.
Einleitung
In jüngster Zeit ist das Risiko für Adipositas, Hyperlipidämie, Bluthochdruck und Diabetes aufgrund der übermäßigen Aufnahme von fetthaltigen und zuckerreichen, kalorienreichen Diäten weltweit rapide gestiegen.
Sacharose, ein traditionelles Süßungsmittel für Lebensmittel, spielt aufgrund ihrer Süße und Schmackhaftigkeit eine wichtige Rolle in der Lebensmittelindustrie (Castro-Muñoz et al., 2022).
Sacharose weist jedoch einige Nachteile auf, wie etwa ihren hohen Kaloriengehalt, ihre Fähigkeit, hyperglykämische Reaktionen auszulösen, und ihr Potenzial für Diabetes (Grassi et al., 2021).
Daher haben kalorienarme Süßungsmittel als Ersatz das Interesse der Forscher geweckt (Khan et al., 2021).
Es wurden mehr als 30 Arten seltener Zucker berichtet (Granström et al., 2004). Sie verfügen über einzigartige biologische Funktionen und werden als Lebensmittelzusatzstoffe, Unterdrücker von Krebszellen sowie als Bausteine für Krebs- und Virusmedikamente verwendet (Zhang et al., 2016b; Li et al., 2017; Guerrero-Wyss et al., 2018; Hoshikawa et al., 2018; Xia et al., 2021).
D-Allulose (auch D-Psicose genannt) ist unter den seltenen Zuckern am bemerkenswertesten.
Es sind mehr als 20 Jahre vergangen, seit Ken Izumori erstmals über D-Allulose berichtete (Itoh et al., 1995).
Sie weist 70 % der Süßkraft von Sacharose auf, enthält jedoch nur 0,3 % ihres Energiegehalts.
Zudem enthält sie nahezu keine Kalorien (Matsuo et al., 2002).
Als industriell wichtiges Bioprodukt wurde D-Allulose von der US-amerikanischen Food and Drug Administration (FDA) im Jahr 2002 als „allgemein als sicher anerkannt“ (GRAS) eingestuft und für die Verwendung in Süßigkeiten, Fruchtsäften, Nahrungsergänzungsmitteln und anderen Diätprodukten zugelassen.
Daher besitzt D-Allulose einen wichtigen Anwendungswert in der Lebensmittelindustrie, der Pharmaindustrie und im Gesundheitswesen.
Es wird erwartet, dass D-Allulose den Süßungsmittelmarkt aufgrund ihres niedrigen Kaloriengehalts und ihrer Schmackhaftigkeit verändern wird, da sie mit anderen Zuckerersatzstoffen (Zuckeralkoholen wie Xylit, Mannit und Sorbit) konkurrieren kann.
Der kommerzielle Preis für D-Allulose wird voraussichtlich den Preis konkurrierender Zuckerersatzstoffe wie Xylit (2–5 USD/kg), Mannit (1–5 USD/kg) und Sorbit (1–10 USD/kg) erreichen.
D-Allulose wird in naher Zukunft in der großflächigen Produktion wettbewerbsfähig sein, ähnlich wie andere Süßungsmittel mit einem Verbrauch von mehreren Millionen Tonnen pro Jahr.
Derzeit gehören zu den Faktoren, die die Produktion und den Preis von D-Allulose einschränken, die hohen Kosten der Ausgangsstoffe, geringe Ausbeuten und Schwierigkeiten bei der Isolierung.
In diesem Artikel fassen wir die neuesten Ergebnisse zu den physiologischen Funktionen und der Biosynthese von D-Allulose zusammen und diskutieren sie.
Physiologische Funktionen der D-Allulose
Wirkung von D-Allulose auf den Lipidstoffwechsel
Es wurde nachgewiesen, dass D-Allulose bei Tieren und Menschen eine Anti-Adipositas-Wirkung durch die Reduzierung der Nahrungsaufnahme, der Fettmasse und des Gewichts des Fettgewebes ausübt (Kimura et al., 2017; Bilal et al., 2018).
Darüber hinaus deuten zahlreiche Beweise darauf hin, dass D-Allulose den Energieverbrauch steigern und die Fettablagerung bei normalen Ratten reduzieren kann (Chung et al., 2012; Ochiai et al., 2014).
Obwohl D-Allulose das Gewicht des Fettgewebes reduzieren kann, ist der Mechanismus noch nicht bekannt.
Sie kann die Aktivität der Fettsäure-Synthase (FSA) verringern und die β-Oxidation sowie die Aktivität der Carnitin-Palmitoyltransferase (CPT) im weißen Nebenhoden-Fettgewebe (WAT) erhöhen (Han et al., 2016).
Ferner kann die diätetische D-Allulose die Expression der mit der Lipogenese assoziierten Acetyl-CoA-Carboxylase alpha (ACCα) im WAT des Nebenhodens hemmen.
Darüber hinaus kann diätetische D-Allulose die Expression der mit der Fettsäureoxidation assoziierten AMP-aktivierten Proteinkinase alpha 2 (AMPKα2), der hormonempfindlichen Lipase (HSL) und des Peroxisom-Proliferator-aktivierten Rezeptors alpha (PPARα; Chen et al., 2019) stimulieren. Daher besitzt D-Allulose potenzielle Anti-Adipositas-Eigenschaften.
Anti-hyperglykämische Wirkung von D-Allulose
Die richtige Ernährung hat weltweit zu einem schnellen Anstieg der Inzidenz von Adipositas und durch Adipositas verursachtem Typ-2-Diabetes (T2DM) geführt, was die Kosten für die Behandlung dieser chronischen Krankheiten erheblich erhöht.
Daher ist es sehr wichtig, wirksame therapeutische Interventionen zur Behandlung von Diabetes und seinen Komplikationen zu identifizieren. Aufgrund ihrer vielversprechenden anti-hyperglykämischen Eigenschaften hat D-Allulose große Aufmerksamkeit erhalten, da sie in der Lage ist, den Plasmaglukosespiegel, das Körpergewicht und die Fettmasse zu regulieren (Matsuo und Izumori, 2009; Hossain et al., 2015; Lee et al., 2020).
Der Mechanismus ihrer antidiabetischen Wirkung ist jedoch noch nicht geklärt. Es wird vermutet, dass D-Allulose den Blutzuckerspiegel und die Insulinausschüttung oder die Aktivität von Glucosidasen und lipolytischen Enzymen beeinflusst.
Es wurde nachgewiesen, dass D-Allulose den durch Sacharose oder Maltose induzierten Anstieg der Plasmaglukosekonzentration erheblich hemmt (Matsuo und Izumori, 2009).
Darüber hinaus wurde gezeigt, dass D-Allulose die Aktivität der intestinalen Saccharase und Maltase wirksam hemmt.
Die Zugabe von D-Allulose (5 g) kann den durch orales Maltodextrin (75 g) induzierten Anstieg des Blutzuckerspiegels bei gesunden Erwachsenen signifikant unterdrücken.
Außerdem beeinflusst orales D-Allulose allein den Glukose- und Insulinspiegel im Blut nicht (Iida et al., 2008).
Es wurde auch nachgewiesen, dass D-Allulose den postprandialen Blutzuckeranstieg hemmt, hauptsächlich bei Patienten mit Grenzwert-Diabetes, und nach 12 Wochen kontinuierlicher D-Allulose-Einnahme wurden keine Nebenwirkungen oder klinischen Probleme festgestellt (Hayashi et al., 2010).
Obwohl zahlreiche Studien gezeigt haben, dass D-Allulose antidiabetische Aktivität besitzt, ist der Mechanismus noch nicht vollständig geklärt.
In der Leber wird der D-Glukosestoffwechsel durch die nukleozytoplasmatische Verlagerung der Glukokinase reguliert (Hossain et al., 2015).
Bei niedrigem Glukosespiegel verbleibt die Glukokinase in inaktiver Form, gebunden an das Glukokinase-regulierende Protein (GKRP), das im Zellkern der Hepatozyten rekrutiert wird. Wenn der Glukosespiegel einen hohen Wert erreicht, wird die Glukokinase durch Ablösung vom Glukokinase-GKRP-Komplex aktiviert und vom Kern in das Zytoplasma verlagert, wo sie am Glykogenstoffwechsel und der Blutzuckerhomöostase beteiligt ist (Liu et al., 2012).
Zum Beispiel kann die Aktivierung der Glukokinase die Glukosetoleranz und die Insulinsensitivität verbessern (Shintani et al., 2017b).
Eine beeinträchtigte Funktion der hepatischen Glukokinase bei Diabetes führt zur Pathogenese von Hyperglykämie (Basu et al., 2001).
Daher wird die Glukokinase als potenzielles Ziel für antidiabetische Medikamente angesehen (Lloyd et al., 2013).
Zudem wird die Glukokinase durch mehrere Fruktosephosphate aktiviert, wie Fruktose-6-phosphat (F6P) und Fruktose-1-phosphat (F1P; Pfefferkorn, 2013).
D-Allulose-1-phosphat aktiviert, ähnlich wie Fruktose-1-phosphat, ebenfalls die Glukokinase. Daher kann D-Allulose die Glukoseaufnahme der Leber erhöhen (Toyoda et al., 2010).
Die Glukose-6-phosphatase (G6Pase) trägt bei Diabetes zur Hyperglykämie bei und reguliert die geschwindigkeitsbestimmenden Schritte des hepatischen Glukoneogeneseflusses (Herling et al., 1998).
D-Allulose kann den Blutzuckerspiegel regulieren und durch Verringerung der G6Pase-Aktivität eine hypolipidämische Wirkung ausüben (Nagata et al., 2015).
Berichten zufolge kann die orale Verabreichung von D-Allulose die GLP-1-Sekretion stimulieren und somit zur Vorbeugung und Behandlung von Glukoseintoleranz eingesetzt werden (Hayakawa et al., 2018).
Kürzlich wurde bestätigt, dass D-Allulose die GLP-1-Freisetzung induziert, die vagale afferente Signalübertragung aktiviert, die Nahrungsaufnahme reduziert und die Hyperglykämie bei gesunden und adipösen diabetischen Ratten begrenzt.
Darüber hinaus kann orales D-Allulose unregelmäßiges Überessen, Adipositas und Diabetes korrigieren (Iwasaki et al., 2018).
Sonstige physiologische Funktionen der D-Allulose
D-Allulose wirkt entzündungshemmend, indem sie den Serumspiegel entzündungsfördernder Zytokine wie Tumornekrosefaktor-alpha (TNF-α), Interleukin-6 (IL-6) und Monozyten-Chemoattraktant-Protein 1 (MCP-1) unterdrückt. Diese Zytokine stammen hauptsächlich aus viszeralen Fettgeweben ( Moller und Berger, 2003 ; Kim et al., 2017 ).
D-Allulose besitzt auch antioxidative Eigenschaften; sie schützt durch die Bindung reaktiver Sauerstoffspezies (ROS) vor der durch 6-Hydroxydopamin induzierten Apoptose oder beugt Hodenschäden vor ( Takata et al., 2005 ; Suna et al., 2007 ).
D-Allulose kann zudem die Lebensdauer durch Erhöhung der Aktivität der Superoxid-Dismutase (SOD) und der Katalase (CAT) verlängern ( Shintani et al., 2017a ).
Darüber hinaus wurde nachgewiesen, dass D-Allulose den Serumcholesterinspiegel bei Hamstern verändert, teilweise durch die Senkung des Spiegels der Proproteinkonvertase Subtilisin/Kexin Typ 9 (Pcsk9) ( Kanasaki et al., 2019 ).
Des Weiteren kann D-Allulose die systemische und muskuläre Insulinsensitivität bei wachen Ratten verbessern ( Natsume et al., 2021 ). Die verschiedenen physiologischen Funktionen von D-Allulose sind in Abbildung 1 dargestellt.
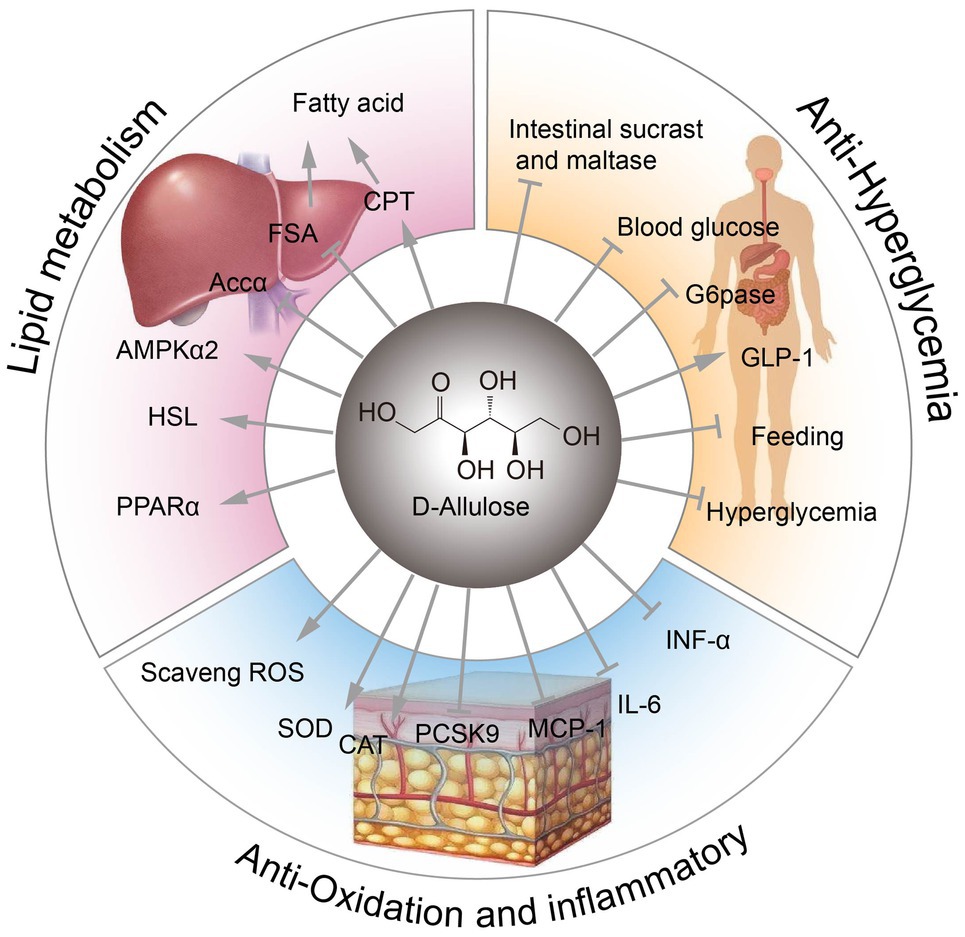
Abbildung 1 . Physiologische Funktionen von D-Allulose. FSA, Fettsäuresynthase; CPT, Carnitin-Palmitoyltransferase; ACCα, Acetyl-CoA-Carboxylase alpha; AMPKα, AMP-aktivierte Proteinkinase alpha; HSL, Hormonsensitive Lipase; PPARα, Peroxisom-Proliferator-aktivierter Rezeptor alpha; ROS, reaktive Sauerstoffspezies; SOD, Superoxid-Dismutase; CAT, Katalase-Aktivität; Pcsk9, Proprotein-Konvertase Subtilisin/Kexin Typ 9; MCP-1, Monozyten-Chemoattraktant-Protein 1; G6Pase, Glukose-6-Phosphatase.
Biologische Herstellung von D-Allulose
Wie oben beschrieben, besitzt D-Allulose zahlreiche nützliche physiologische Funktionen. D-Allulose kommt in der Natur jedoch nur selten vor, was ihre breite Anwendung stark einschränkt. Die traditionelle chemische Synthese von D-Allulose ist im Allgemeinen mit schwierigen Reaktionen und zahlreichen Nebenreaktionen verbunden ( McDonald, 1967 ; Doner, 1979 ).
Mit chemischen Methoden ist es schwierig, eine einzelne Produktkonfiguration herzustellen.
Im Gegensatz dazu bieten Biokonversionsansätze zahlreiche Vorteile, einschließlich milder Reaktionsbedingungen, weniger Nebenprodukte, einfacher Reinigungsschritte und umweltfreundlicher Eigenschaften ( Zhang et al., 2021 ).
Daher ist die Biotransformation schrittweise zur Hauptmethode für die D-Allulose-Synthese geworden.
Derzeit wird die biologische Herstellung von D-Allulose hauptsächlich durch zwei Strategien erreicht: (1) die Izumoring-Strategie und (2) die DHAP-abhängige Aldolase-Strategie.
Herstellung von D-Allulose mittels Izumoring-Strategie
Herstellung von D-Allulose aus D-Fruktose unter Verwendung von Enzymen der D-Tagatose-3-Epimerase-Familie
Die Izumoring-Strategie ist ein vielversprechender Ansatz für die biologische Produktion jeglicher Hexose-Zucker und umfasst D-Tagatose-3-Epimerasen (DTEasen), Polyol-Dehydrogenasen und Aldose-Isomerasen ( Izumori, 2006 ).
In den letzten Jahrzehnten hat sich die Izumoring-Strategie bei der Biosynthese seltener Zucker als effizient erwiesen.
Enzyme der DTEase-Familie sind Schlüsselenzyme für die Biosynthese von D-Allulose aus D-Fruktose ( Abbildung 2 ), dazu gehören DTEase und D-Allulose-3-Epimerase (DAEase).
DAEase weist eine höhere Spezifität für D-Allulose als für D-Tagatose auf ( Kim et al., 2006 ).
Seit der Identifizierung der ersten DTEase aus Pseudomonas cichorii ST-24 im Jahr 1993 wurden weitere DTEase-Enzyme aus verschiedenen Spezies isoliert, wie etwa Agrobacterium tumefaciens ( Kim et al., 2006 ), Clostridium bolteae ( Jia et al., 2014 ), Dorea sp. CAG317 ( Zhang et al., 2015 ), Ruminococcus sp. 5_1_39BFAA ( Chen et al., 2016 ), Treponema primitia ZAS-1 ( Zhang et al., 2016c ), Rhodobacter sphaeroides ( Qi et al., 2017 ), Ruminococcus sp. ( Li et al., 2018 ), Arthrobacter globiformis M30 ( Yoshihara et al., 2017 ), Clostridium cellulolyticum H10 ( Su et al., 2018 ), Sinorhizobium sp. ( Zhu et al., 2019b ) sowie Rhodopirellula baltica SH 1 ( Zhang et al., 2020 ). Details zu den katalytischen Eigenschaften von Enzymen der DTEase-Familie aus verschiedenen Spezies sind in Tabelle 1 dargestellt. Itoh et al. (1995) berichteten erstmals über die Immobilisierung von DTEase aus P. cichorii auf Chitopearl-Perlen und produzierten 90 g D-Allulose aus 500 g D-Fruktose.
Seitdem sind die Methoden zur Immobilisierung von DTEase auf breites Interesse gestoßen ( Lim et al., 2009 ; Tseng et al., 2014 ; Narayan Patel et al., 2018 ), wobei immobilisierte Enzyme eine verbesserte Thermostabilität und Lagerstabilität zeigten.
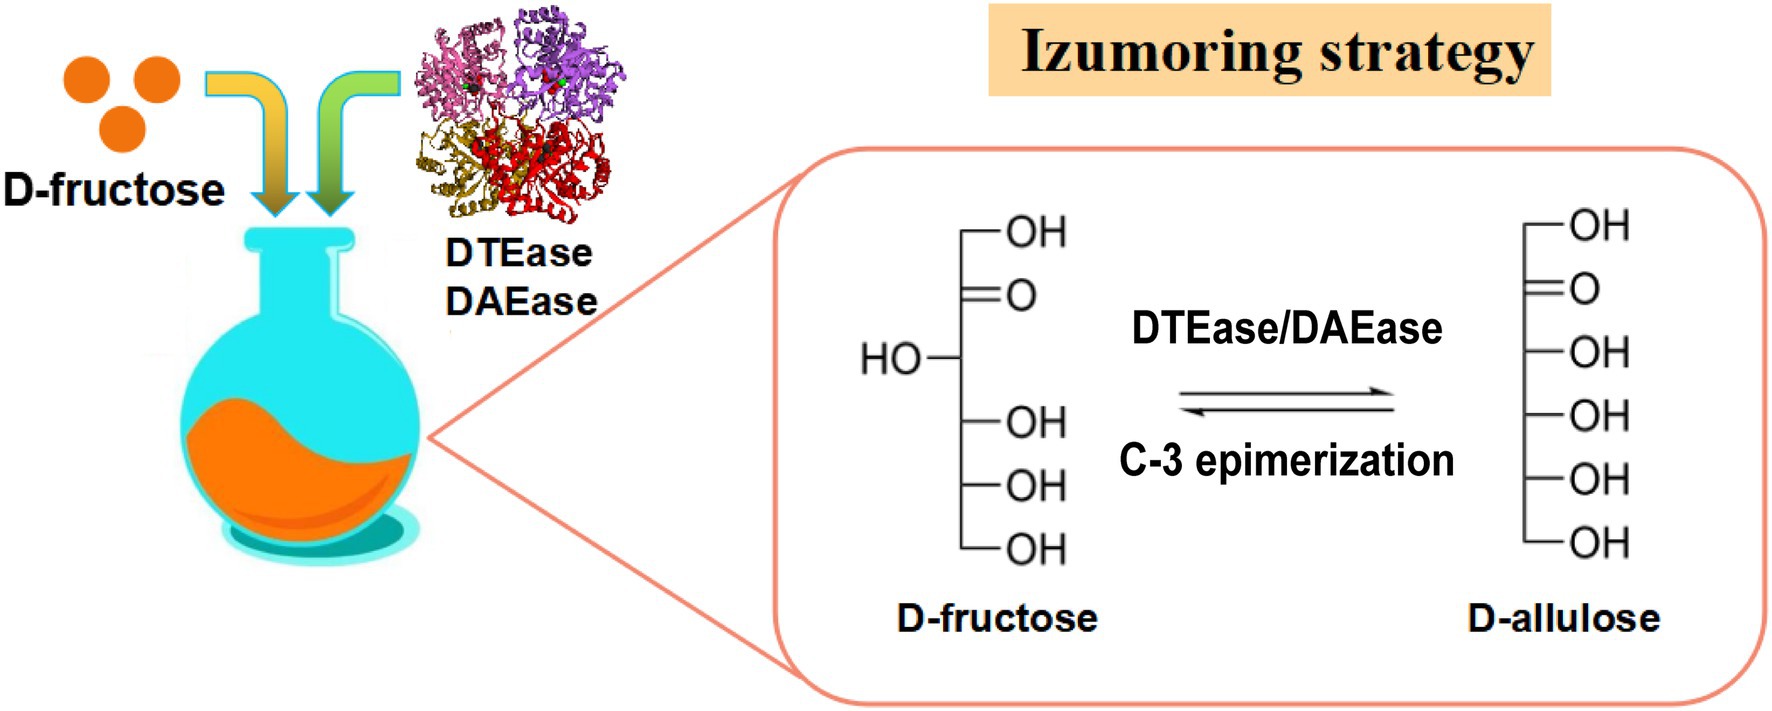
Abbildung 2 . Izumoring-Strategie zur Herstellung von D-Allulose. DTEase, D-Tagatose-3-Epimerase; DAEase, D-Allulose-3-Epimerase
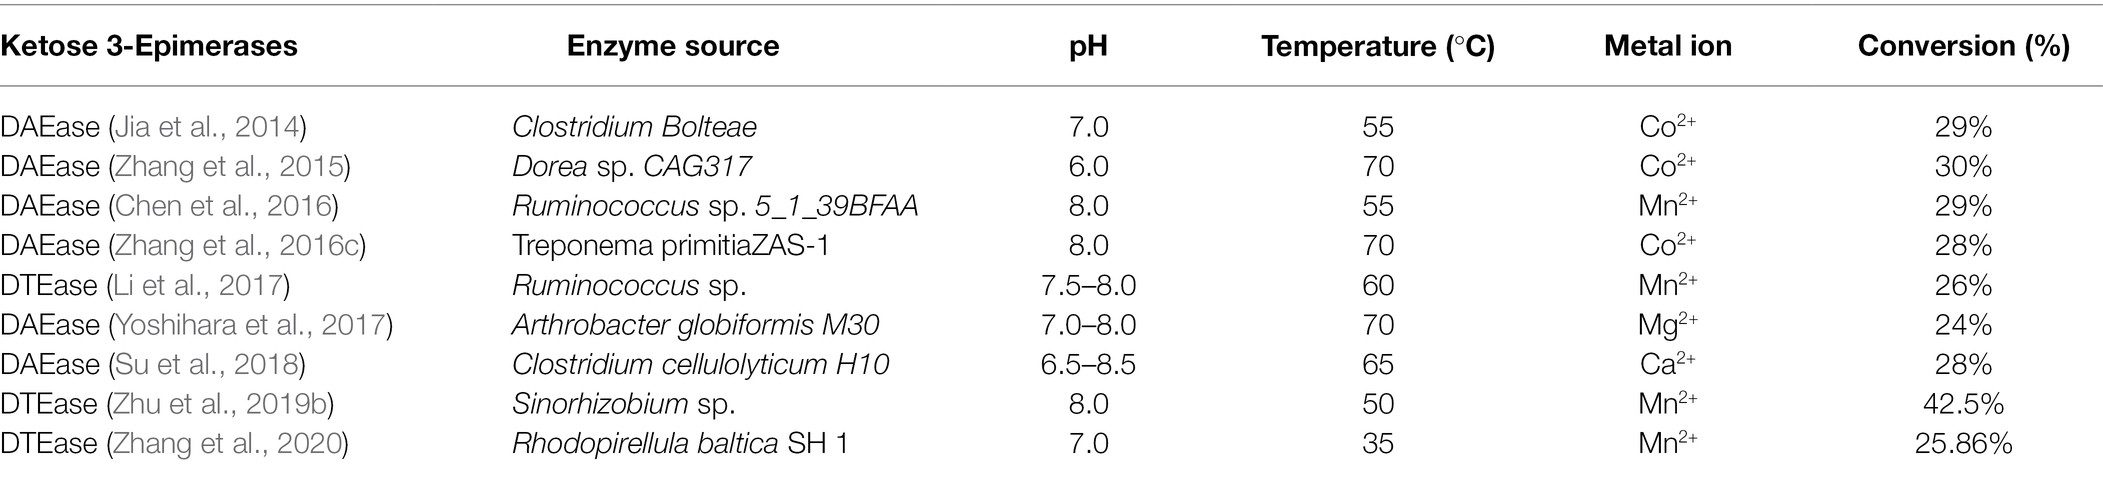
Tabelle 1 . Eigenschaften der Enzyme der DTEase-Familie.
Biosynthese von D-Allulose aus kostengünstigen Materialien auf Basis von DTEase-Enzymen
Derzeit verursachen landwirtschaftliche Nebenprodukte wie Obst- und Gemüsereste erhebliche landwirtschaftliche Probleme ( Lai et al., 2017 ).
Landwirtschaftliche Rückstände werden im Allgemeinen auf Mülldeponien vergraben oder verbrannt ( Park und Yoon, 2015 ). Diese Rückstände enthalten jedoch große Mengen an Ballaststoffen und Zuckern, einschließlich Saccharose, D-Glukose und D-Fruktose.
Die Umwandlung von Ballaststoffen und Zuckern in Produkte mit hohem Mehrwert stellt einen bedeutenden Schritt zur Linderung landwirtschaftlicher Probleme dar.
Die Kaskadenkatalyse wird im Vergleich zur traditionellen schrittweisen Synthese als ein sehr attraktiver Ansatz angesehen.
Diese Strategie wird häufig zur Herstellung seltener Zucker aus kostengünstigen Materialien wie Saccharose, Topinambur, Inulin und Obst-/Gemüserückständen verwendet ( Abbildung 3 ; Wagner et al., 2015 ; Song et al., 2016 , 2017 ; Zhang et al., 2017 ; Yang et al., 2019 ; Li et al., 2020a ).
D-Allulose wurde effizient aus Saccharose unter Verwendung von gereinigter rekombinanter Invertase, D-Xylose-Isomerase und DTEase synthetisiert.
Zudem wurde die praktische Integration der Kaskadenlösung und der chromatographischen Trennung mittels simuliertem bewegtem Bett (SMB) angewendet, um reine D-Allulose (99,9 %) mit einer sehr hohen Ausbeute (89 %) herzustellen ( Wagner et al., 2015 ).
D-Allulose kann auch durch eine zweistufige Kaskadenreaktion synthetisiert werden, die die Hydrolyse von Topinambur ( Song et al., 2017 ), Kreuzblütler-Pflanzenrückständen ( Song et al., 2016 ) und Inulin ( Li et al., 2020a ) umfasst.
Um die Produktionskosten zu senken und die Enzymreinigung zu vermeiden, entwickelten Zhu et al. ein einstufiges Zwei-Enzym-Reaktionssystem mit einer neuartigen Exo-Inulinase aus Bacillus velezensis (BvInu) und einer DAEase aus Ruminococcus sp. zur Herstellung von D-Allulose aus Topinambur.
BvInu und DAEase wurden in Bacillus subtilis exprimiert und ohne Reinigung in den Überstand sekretiert. Bei einem optimalen BvInu/RDAE-Verhältnis (80:40 U/g Inulin) wurden bei 50°C innerhalb von 2 Stunden 10,3 g/l D-Allulose aus 50 g/l Inulin gewonnen ( Zhu et al., 2020 ).
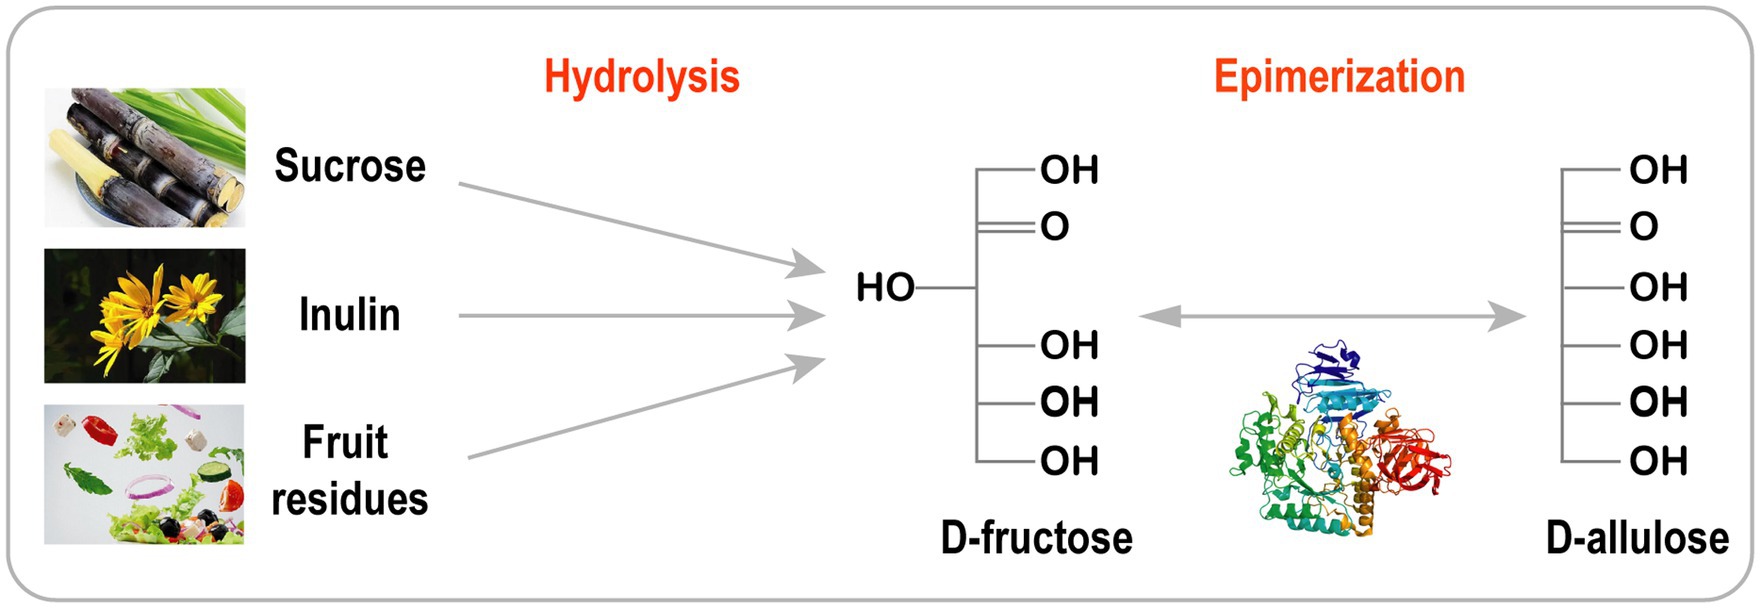
Abbildung 3 . Biosynthese von D-Allulose aus kostengünstigem Rohmaterial.
Biosynthese von D-Allulose mittels Mikroorganismen
Im Vergleich zu einstufigen Kaskadenreaktionen haben Ganzzell-Biokatalysator-Reaktionen zahlreiche Vorteile ( Abbildung 4 ): (1) Die enzymhaltigen Zellen können einfach hergestellt werden, ohne dass eine mühsame Aufreinigung der Enzyme erforderlich ist; (2) der zelluläre Kontext bietet eine geeignete Mikroumgebung und Kofaktor-Regenerierung (ATP, NAD+/NADH); (3) Zellwände und Membranen schützen die Enzyme vor rauen Reaktionsbedingungen; und (4) die intrazelluläre Kolokalisation mehrerer Enzyme erhöht die lokale Enzymkonzentration und verringert die Diffusion von Zwischenprodukten in Kaskadenreaktionen ( Wu und Li, 2018 ).
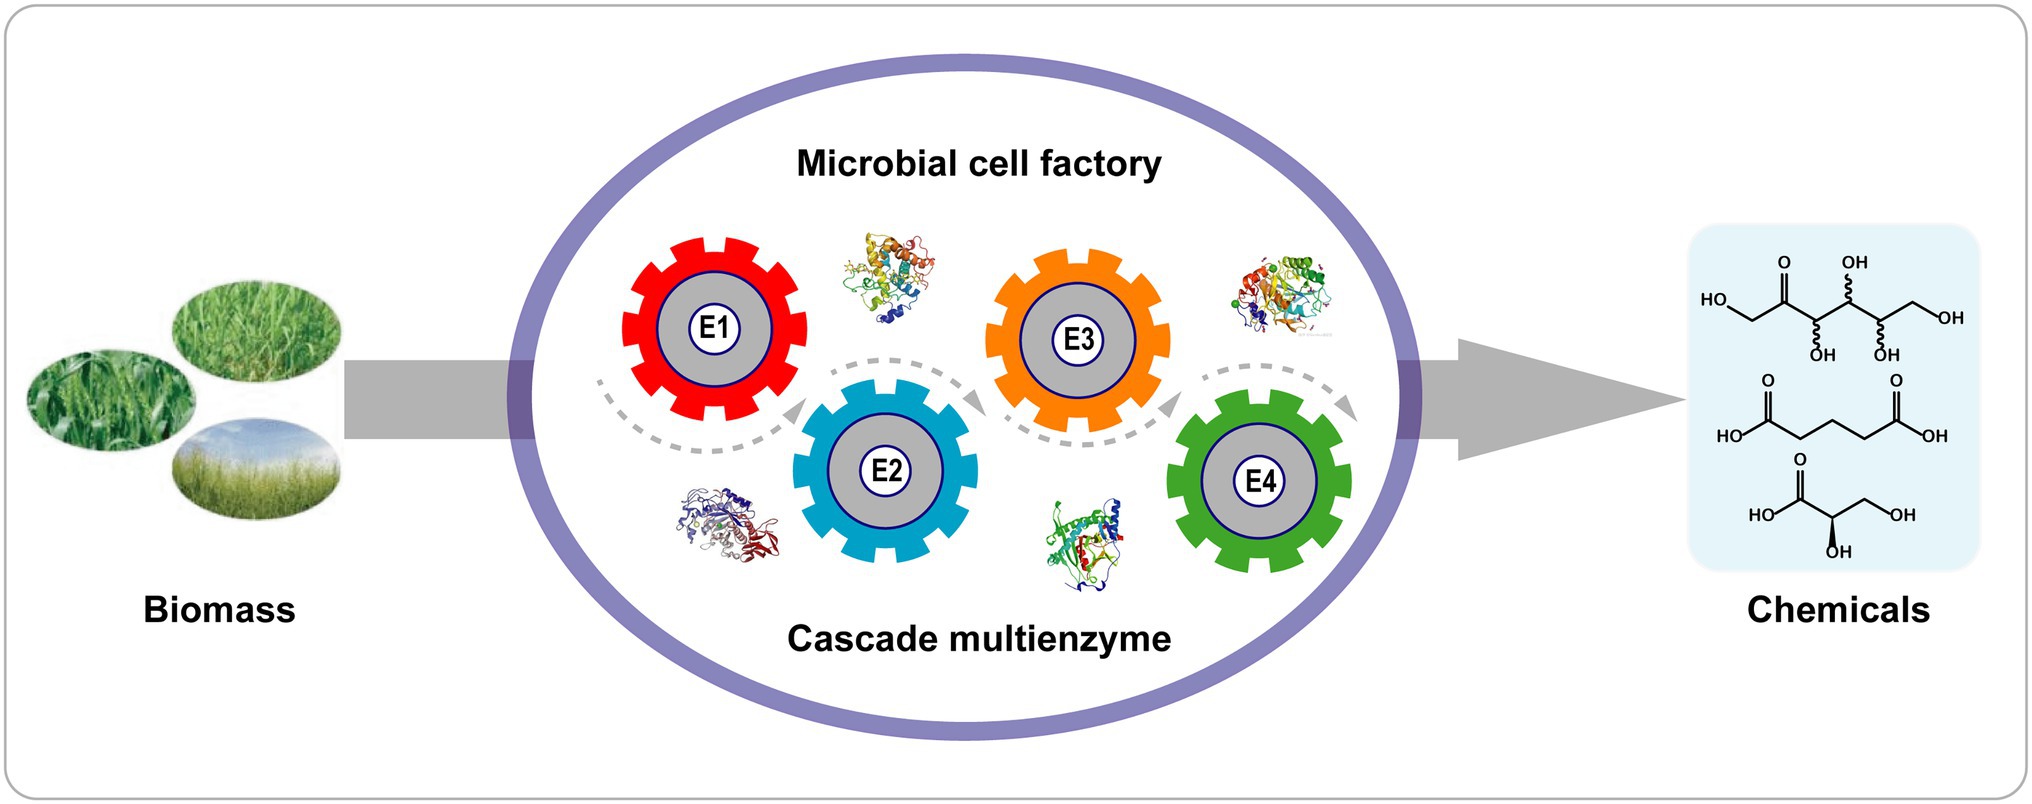
Abbildung 4 . Kaskaden-Biotransformation mit einer einzelnen rekombinanten Zelle. E1–E4 bezeichnen die Enzyme 1–4.
Modifiziertes Escherichia coli ist aufgrund seines sauberen Hintergrunds, der schnellen Wachstumsrate, der einfachen Kultivierung und der stabilen Genetik einer der am häufigsten verwendeten Organismen für die Herstellung von D-Allulose.
Die DAEase und die D-Glucose-Isomerase (Glase) von Acidothermus cellulolyticus wurden gemeinsam exprimiert, um D-Allulose aus D-Glucose herzustellen ( Zhang et al., 2017 ).
In ähnlicher Weise wurden DAEase und Xylose-Isomerase (XI) gemeinsam exprimiert, um D-Allulose unter Verwendung von D-Glucose als Substrat zu produzieren ( Chen et al., 2017 ).
In den beiden oben genannten Ansätzen wurde D-Glucose zunächst mittels Glase oder XI in D-Fructose umgewandelt und anschließend mittels DAEase sofort zu D-Allulose isomerisiert.
Obwohl durch die Manipulation von E. coli eine gute Produktivität erzielt wurde, war dies aufgrund von Endotoxinen und der Einstufung als nicht lebensmitteltauglich in der Lebensmittelindustrie nicht anwendbar. Dennoch wurde DAEase bis heute erfolgreich in verschiedenen lebensmittelsicheren Stämmen wie B. subtilis, Saccharomyces cerevisiae und Corynebacterium glutamicum exprimiert ( Li et al., 2015b ; He et al., 2016 ). He et al. (2016) präsentierten die DTEase von Clostridium scindens ATCC 35704 auf der Oberfläche von B. subtilis-Sporen, um D-Allulose aus D-Fructose herzustellen. Die DAEase wurde an den C-Terminus von CotZ gekoppelt und zeigte eine hohe Thermostabilität. Nach fünf Nutzungszyklen blieb 60% der Aktivität erhalten ( He et al., 2016 ).
In unserer früheren Studie haben wir eine Sporen-Oberflächen-Display-Technik zur Herstellung von D-Allulose aus D-Glucose entwickelt. Bei diesem Ansatz wurden das Schlüsselenzym XI aus Thermus thermophilus und die DAEase aus A. tumefaciens mittels biologischer bzw. chemischer Methoden auf S. cerevisiae-Sporen immobilisiert ( Li et al., 2015b ).
Darüber hinaus wurden mehrere DAEasen und Invertasen (INV) in C. glutamicum überexprimiert, und die mit Alginat immobilisierten modifizierten Zellen wurden einer Kaskadenreaktion in einem einstufigen Zweiphasen-Reaktionssystem unterzogen, um D-Allulose aus Rohrzuckermelasse herzustellen. Nach 8 Stunden Reaktion wurden 61,2 g/l D-Allulose erhalten, was 17,4% des gesamten Monosaccharids ausmachte ( Yang et al., 2019 ).
Gegenwärtig ist die Izumoring-Strategie die Hauptmethode für die industrielle Herstellung von D-Allulose, die unter Verwendung von SMB erreicht werden kann. Darüber hinaus kann die abgetrennte D-Fructose wiederverwendet werden, um D-Allulose herzustellen. Kurz gesagt, die Izumoring-Strategie ist der einfachste und häufigste Weg der D-Allulose-Biosynthese. Die Einschränkungen des thermodynamischen Gleichgewichts stellen jedoch einen Engpass dar, der die breite Anwendung von D-Allulose in der Lebensmittelindustrie begrenzt.
Herstellung von D-Allulose mittels DHAP-abhängiger Aldolasen
Wie oben erwähnt, wurden verschiedene Ansätze auf Basis der Izumoring-Strategie zur Herstellung von D-Allulose aus kostengünstigen Ausgangsmaterialien wie Topinambur, Inulin und landwirtschaftlichen Rückständen entwickelt.
Die durch das Schlüsselenzym DAEase katalysierte Reaktion ist jedoch reversibel und die Umwandlungsrate niedrig, was zu einem hohen Preis der erhaltenen D-Allulose führt. Zudem sind die meisten der für die D-Allulose-Synthese verwendeten Stämme keine GRAS-Mikroorganismen.
Daher ist die Etablierung einer kosteneffizienten und sicheren Plattform für die Massenproduktion von D-Allulose von größter Bedeutung.
Die durch Aldolasen katalysierten stereoselektiven Aldoladditionen sind zu einem grundlegenden Werkzeug in der asymmetrischen C-C-Synthese geworden ( Iturrate et al., 2010 ).
Unter den Mitgliedern der Aldolase-Familie sind DHAP-abhängige Aldolasen am weitesten verbreitet bei der Synthese zahlreicher Kohlenhydratverbindungen, die mit herkömmlichen chemischen Methoden schwer zu synthetisieren sind ( Bosshart et al., 2013 ).
Es gibt vier Arten von DHAP-abhängigen Aldolasen: L-Rhamnulose-1-phosphat-Aldolase (RhaD), L-Fuculose-1-phosphat-Aldolase (FucA), D-Fructose-1,6-bisphosphat-Aldolase (FruA) und D-Tagatose-1,6-bisphosphat-Aldolase (TagA).
Die stereoselektiven Aldolreaktionen dieser vier Aldolasen ergänzen sich gegenseitig. Theoretisch kann ein Satz von vier Ketosen hergestellt werden, wenn DHAP als Donor und dasselbe Aldehyd als Akzeptor verwendet wird ( Gustavo, 2000 ).
Daher eignen sich DHAP-abhängige Aldolasen aufgrund ihrer einzigartigen Stereoselektivität hervorragend zur Synthese verschiedener seltener Zucker (einschließlich D-Allulose, D-Sorbose, D-Tagatose und L-Fructose) ( Abbildung 5 ; Brovetto et al., 2011 ; Dai et al., 2021
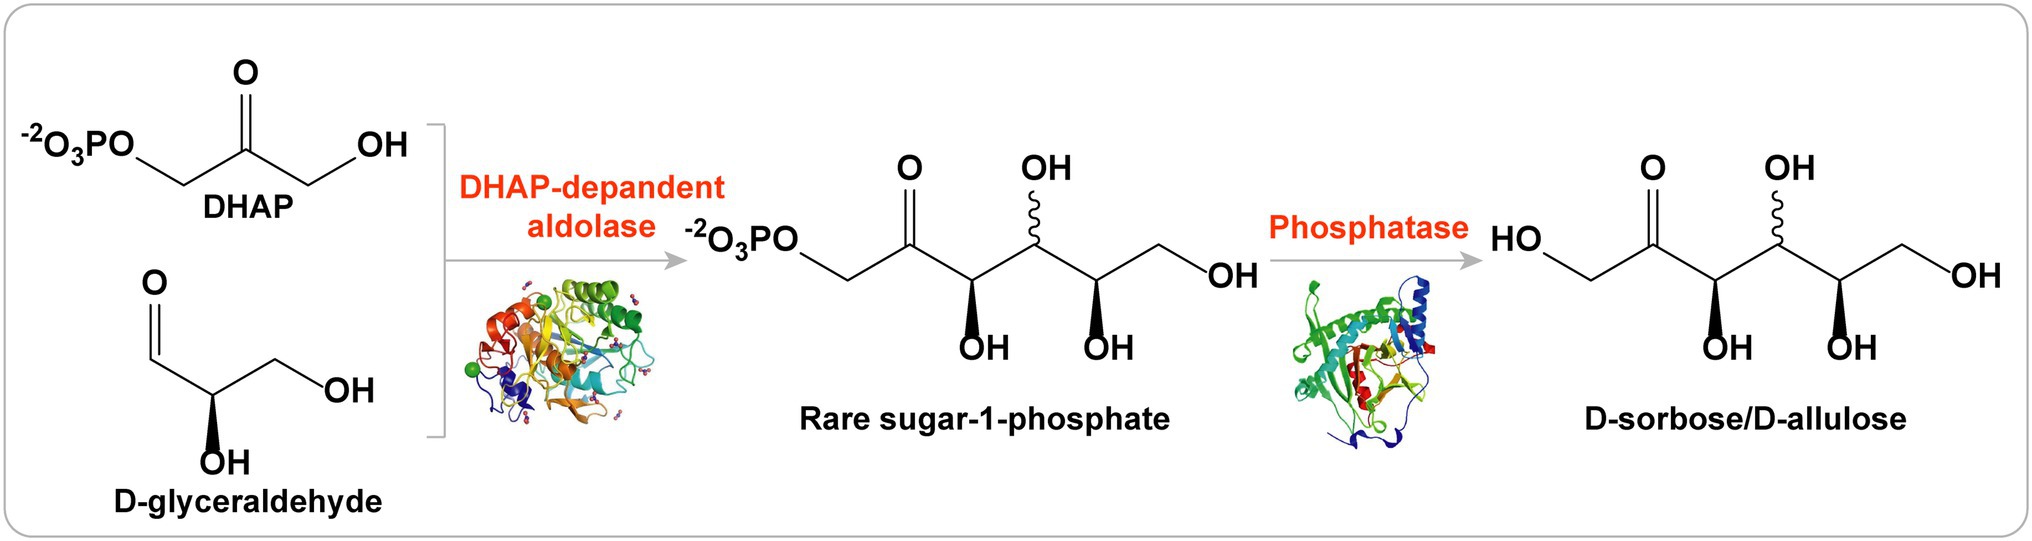
Abbildung 5 . Strategie der DHAP-abhängigen Aldolasen zur Herstellung von D-Allulose.
Biosynthese von D-Allulose mit RhaD-Aldolase und D-Glycerinaldehyd als Akzeptor
Ein wesentlicher Nachteil der Strategien mit DHAP-abhängigen Aldolasen ist, dass das Donorsubstrat, DHAP, sehr teuer und für die Synthese im großen Maßstab instabil ist ( Schümperli et al., 2007 ).
Es gibt jedoch mehrere Möglichkeiten der DHAP-Synthese über enzymatische Strategien. Beispielsweise kann DHAP über Dihydroxyaceton (DHA), Glycerin oder Glycerin-3-phosphat oder über metabolische Wege aus einem günstigen Rohmaterial wie Glucose oder Glycerin hergestellt werden ( Abbildung 6 ; Sánchez-Moreno et al., 2004 ; Li et al., 2012 , 2015a ; Wei et al., 2015 ; Yang et al., 2015 , 2016 ).
Im künstlich modifizierten E. coli wurde die durch RhaD katalysierte Aldolreaktion zur Synthese seltener Zucker (D-Allulose und D-Sorbose) unter Verwendung von Glucose als Kohlenstoffquelle durchgeführt und kontinuierlich D-Glycerinaldehyd in das Nährmedium dosiert. Nach Optimierung der Fermentationsbedingungen betrug die isolierte Ausbeute an D-Allulose und D-Sorbose 0,21 mol/mol D-Glycerinaldehyd ( Wei et al., 2015 ). D-Allulose und D-Sorbose wurden in einem GRAS-Stamm von C. glutamicum unter Verwendung von Glucose und D-Glycerinaldehyd als Ausgangsstoffe hergestellt. Es wurde festgestellt, dass rekombinante C. glutamicum-Stämme, die RhaD und Fructose-1-phosphatase (YqaB) tragen, in der Fed-Batch-Fermentation 19,5 g/l D-Sorbose und 13,4 g/l D-Allulose akkumulieren ( Yang et al., 2015 ). Darüber hinaus wurden D-Allulose und D-Sorbose in einem rekombinanten E. coli-Stamm hergestellt, der RhaD- und YqaB-Aldolase durch Fermentation aus Glycerin überexprimiert. Nach 15 Stunden Fermentation wurde die Konzentration von D-Sorbose (1,6 g/l) und D-Allulose (1,23 g/l) im Überstand bestimmt ( Li et al., 2015a ). Kürzlich hat unsere Gruppe ein effizientes System für die Ganzzell-Kaskadensynthese von D-Sorbose und D-Allulose aus Glycerin und D-Glycerinaldehyd konstruiert, das bei der Batch-Biotransformation 15,3 g/l D-Sorbose und 6,4 g/l D-Allulose ergab ( Chen et al., 2020a ).
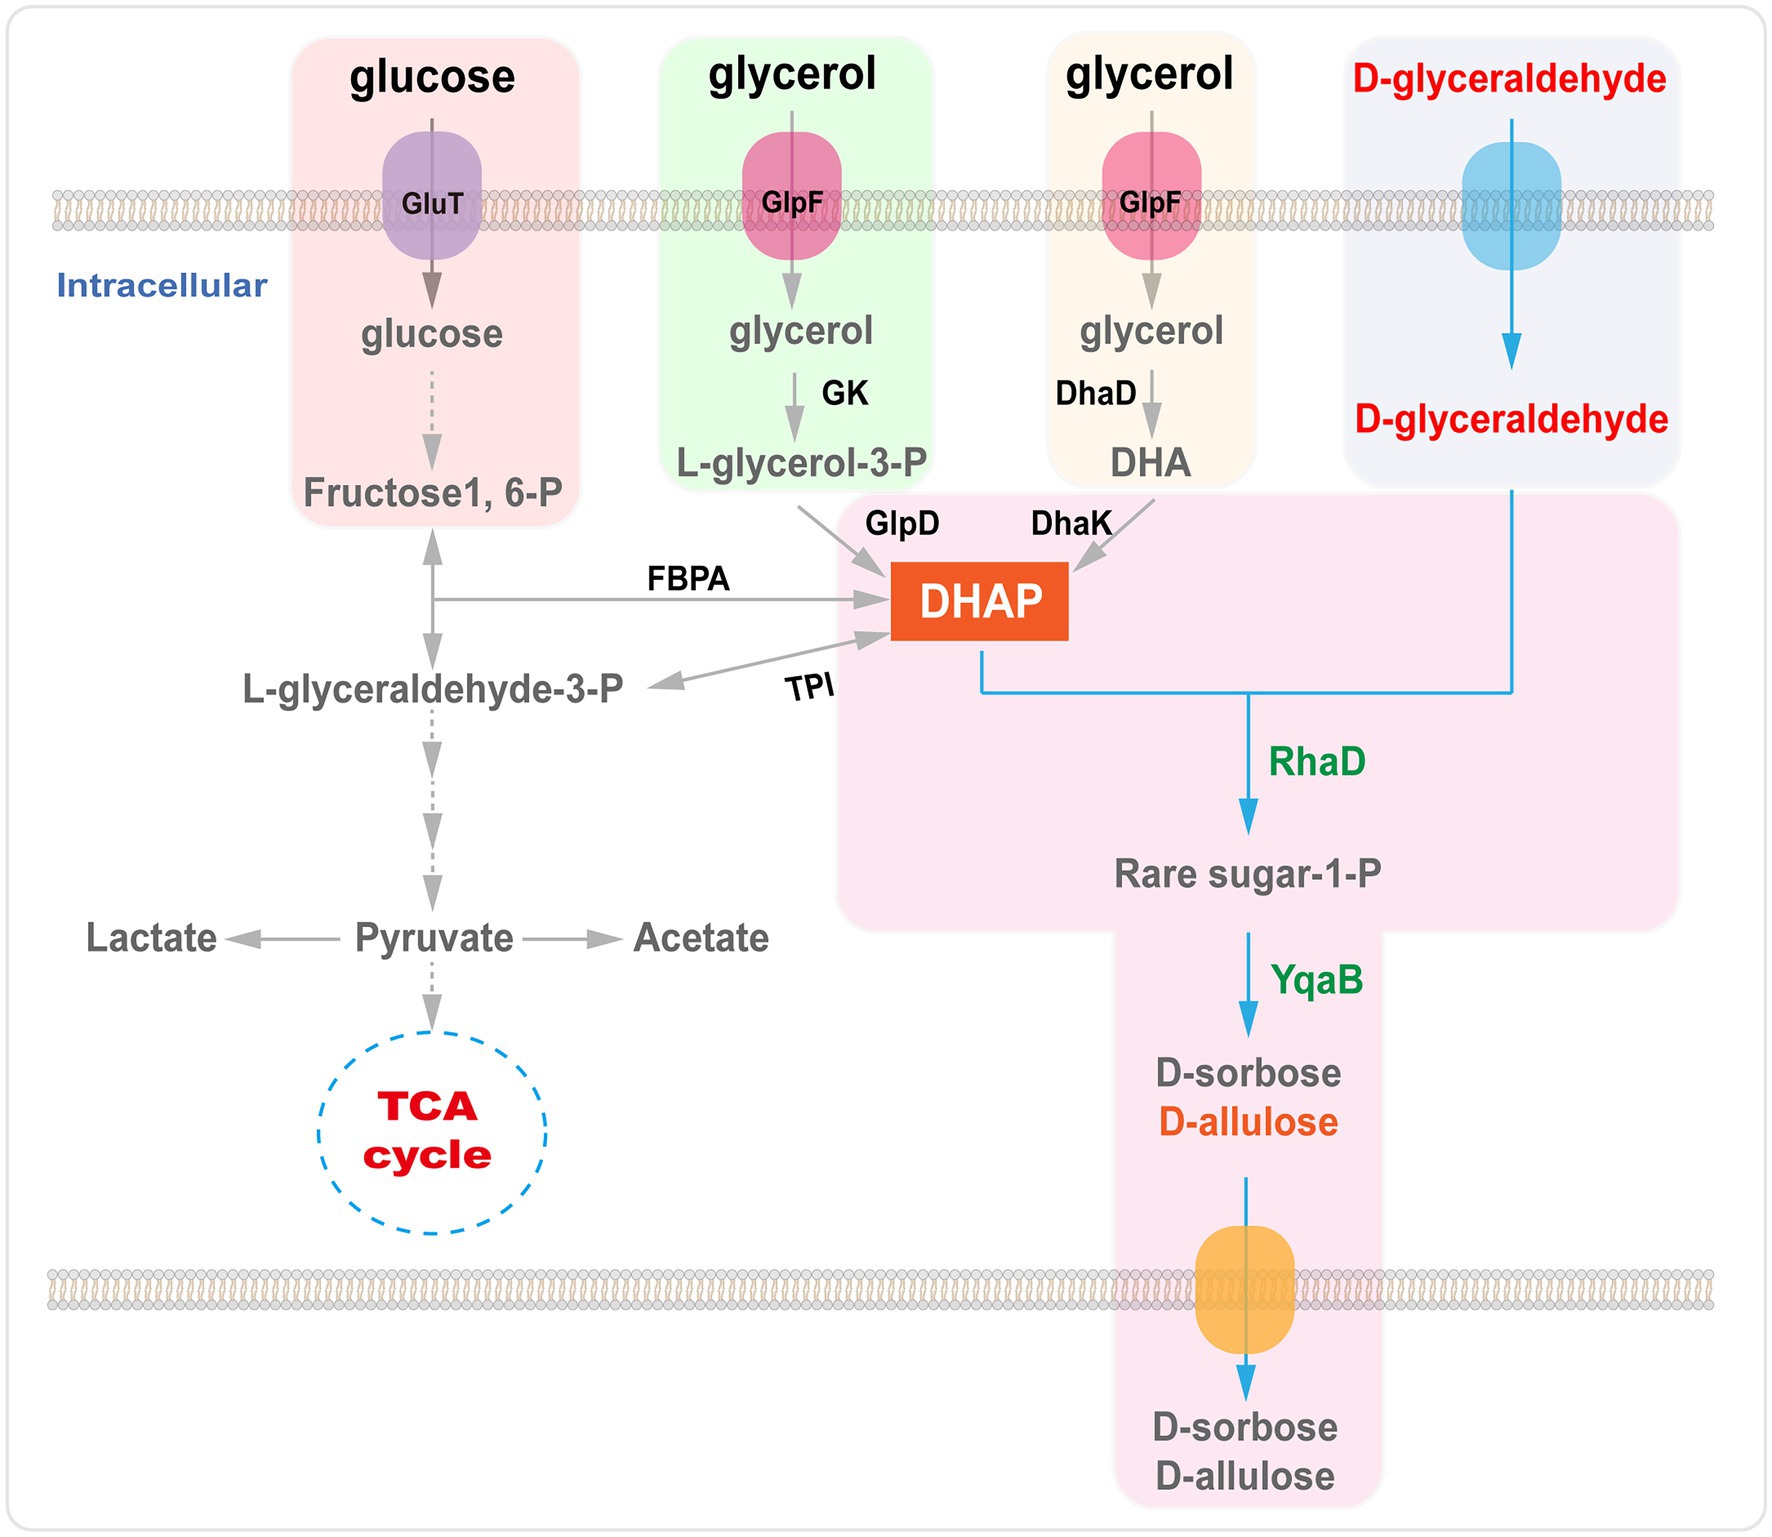
Abbildung 6. D-Allulose-Biosynthese mit RhaD-Aldolase aus Glycerin oder Glukose. GlpF, Glycerin-Transporter; GK, Glycerinkinase; GlpD, Glycerin-3-phosphat-Dehydrogenase; DhaD, Glycerin-Dehydrogenase; DhaK, Dihydroxyaceton-Kinasen; FBPA, Fruktose-1,6-diphosphat-Aldolase; TPI, Triosephosphat-Isomerase; RhaD, L-Rhamnulose-1-phosphat-Aldolase; YqaB, Fruktose-1-phosphatase.
D-Allulose-Biosynthese aus Glycerin als einzigem Substrat
Eine auf RhaD-Aldolase basierende Mikroorganismen-Plattform für die Synthese von D-Allulose wäre für die großtechnische Produktion vielversprechend. Die größte Herausforderung stellt die hohen Kosten des Donorsubstrats DHAP und des Akzeptormoleküls D-Glycerinaldehyd dar. Glücklicherweise wurde das Problem der DHAP-Akkumulation durch die Verwendung des billigen industriellen Nebenprodukts Glycerin als „grüne“ Kohlenstoffquelle gelöst. Die nächste Frage ist somit die Identifizierung eines neuen Enzyms, das das minderwertige Glycerin in D-Glycerinaldehyd umwandelt. Es wird eine Glycerin-Dehydrogenase oder Glycerin-Oxidase benötigt, die Glycerin effizient zu D-Glycerinaldehyd katalysieren kann.
Um dieses Problem zu lösen, hat unsere Gruppe eine Plattform für die Ganzzell-Kaskadensynthese von D-Sorbose und D-Allulose unter Verwendung von Glycerin als einzigem Substrat entwickelt. In diesem System ( Abbildung 7 ) entsteht das Donorsubstrat DHAP über den Glycerin-Assimilationsweg, während endogenes DHAP durch Überexpression von Glycerinkinase (GK) und Glycerinphosphat-Oxidase (GPO) erzeugt wird. Der Akzeptor D-Glycerinaldehyd wird direkt aus Glycerin durch die Alditol-Oxidase aus Streptomyces coelicolor A3 (AldO S.coe) hergestellt. Anschließend katalysiert RhaD die Aldolreaktion zwischen DHAP und D-Glycerinaldehyd, wodurch das entsprechende Ketose-1-phosphat entsteht. Schließlich werden D-Sorbose und D-Allulose durch Entfernung der Phosphatgruppe mittels YqaB-Phosphatase gewonnen. Mit diesem System stiegen die Produktionserträge von D-Sorbose und D-Allulose nach der Überexpression einer Peroxidase (Prx02 oder KatE) zur Eliminierung der schädlichen Auswirkungen von H₂O₂ um das etwa 1,7- bzw. 1,2-fache. Insgesamt wurden 7,9 g/l D-Sorbose und D-Allulose aus Glycerin bei einer Gesamtkonversionsrate von 17,7 % erhalten ( Chen et al., 2020b ).
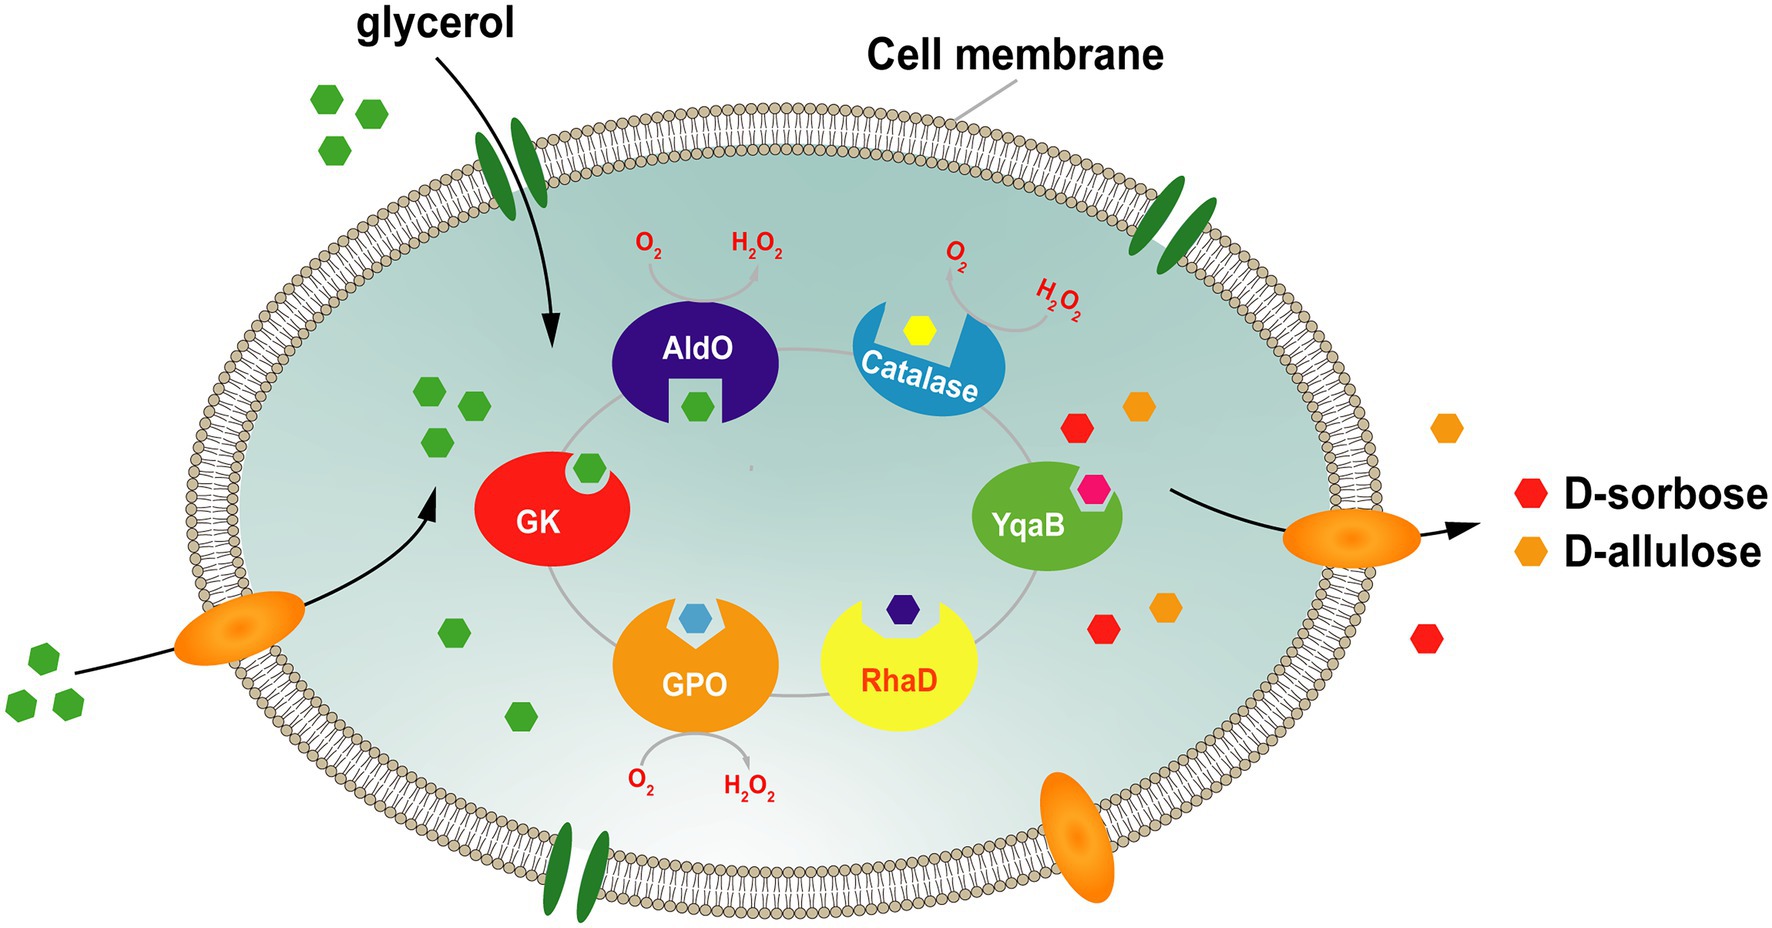
Abbildung 7. Strategie zur Ganzzell-Synthese von D-Sorbose und D-Allulose aus Glycerin. GK, Glycerinkinase; GPO, Glycerinoxidase; AldO, Alditol-Oxidase; RhaD, L-Rhamnulose-1-phosphat-Aldolase; YqaB, Fruktose-1-phosphatase.
Unsere Gruppe konstruierte auch ein einstufiges Multienzymsystem zur Synthese von D-Sorbose und D-Allulose aus Glycerin als einziger Kohlenstoffquelle ( Abbildung 8 ). Hier führten wir die saure Phosphatase PhoN aus Shigella flexneri (PhoN-Sf) anstelle von GK und YqaB in das System ein, die die Phosphorylierungsreaktion von Glycerin im ersten Schritt katalysierte und zur Rückgewinnung des Phosphats aus Ketose-1-phosphat im letzten Schritt beitrug, wodurch freie seltene Zuckermoleküle bereitgestellt wurden. Wir integrierten AldO S.coe in die oben genannte Multienzymkaskade, um D-Sorbose und D-Allulose ausschließlich aus leicht zugänglichem Glycerin zu synthetisieren. Schließlich erhielten wir 14,8 g/l D-Sorbose und D-Allulose aus Glycerin ( Li et al., 2020b ). Die oben genannte Strategie stellt einen sehr nützlichen und kostengünstigen Ansatz auch für die Herstellung verschiedener anderer seltener Zucker dar. Kurz gesagt, die D-Allulose-Biosynthese durch Fermentation auf Basis von DHAP-abhängigen Aldolasen ist sehr vielversprechend. Es wäre profitabler, eine Zellfabrik auf der Grundlage einer DHAP-abhängigen Aldolase-Strategie zur Synthese von D-Allulose aufzubauen.
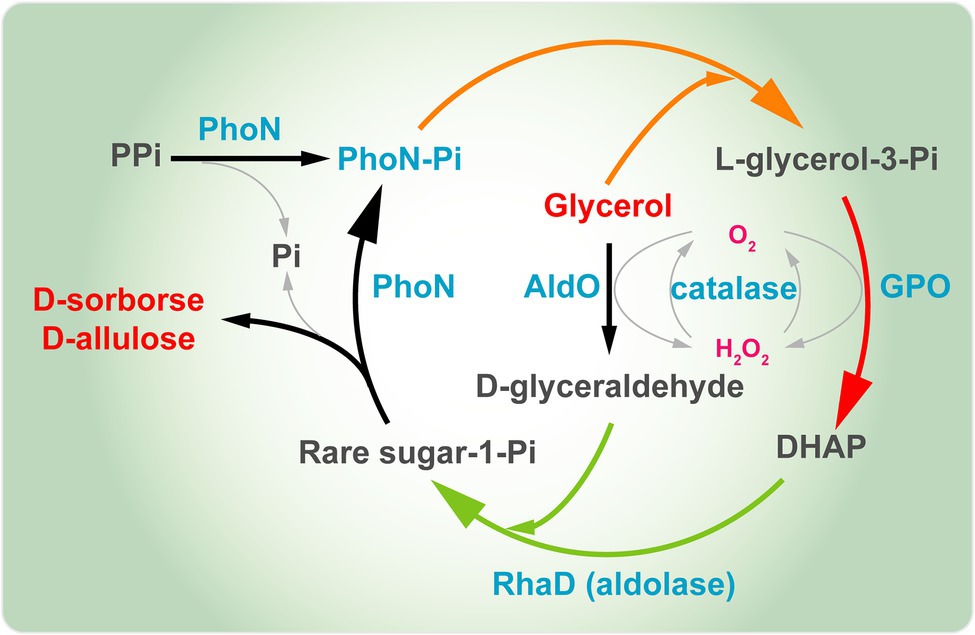
Abbildung 8. Multienzymatische Synthese von D-Sorbose und D-Allulose aus Glycerin. PhoN, saure Phosphatase; GPO, Glycerinoxidase; AldO, Alditol-Oxidase; RhaD, L-Rhamnulose-1-phosphat-Aldolase; DHAP, Dihydroxyacetonphosphat.
Thermodynamisch gesteuerte Herstellung von D-Allulose auf Basis einer Phosphorylierungs-Dephosphorylierungs-Strategie
Tatsächlich können die oben genannten Strategien den Bedarf der Lebensmittelindustrie an D-Allulose immer noch nicht decken. Daher ist die Entwicklung einer neuen Strategie zur Herstellung von D-Allulose interessant, die mit einer hocheffizienten und kostengünstigen „grünen“ Bioproduktion verbunden ist. Kürzlich haben You und Mitarbeiter ein synthetisches in vitro enzymatisches Biosystem zur Produktion von D-Allulose aus billiger Stärke auf der Grundlage einer „thermodynamisch gesteuerten Strategie“ etabliert ( Abbildung 9 ). Dieses in vitro Biosystem umfasste fünf Hauptenzyme, wobei die Reaktionen wie folgt abliefen: (1) Maltodextrin (ein Stärkederivat) wurde mittels α-Glucan-Phosphorylase (αGP) unter Verwendung von Phosphat als Kosubstrat zu Glukose-1-phosphat (G1P) phosphoryliert. (2) G1P wurde durch Phosphoglucomutase (PGM) zu Glukose-6-phosphat (G6P) umgewandelt. (3) G6P wurde durch Phosphoglukose-Isomerase (PGI) zu Fruktose-6-phosphat (F6P) umgewandelt. (4) Die Epimerisierung von F6P führte zur Bildung von D-Allulose-6-phosphat (A6P), katalysiert durch D-Allulose-6-phosphat-3-Epimerase (A6PE). (5) Die Dephosphorylierung von A6P führte zur Produktion von D-Allulose und Phosphat, katalysiert durch D-Allulose-6-phosphat-Phosphatase (A6PP). Zusätzlich wurden die anderen vier Hilfsenzyme [Isoamylase (IA), 4-α-Glucanotransferase (4GT), Polyphosphat-Glukokinase (PPGK) und Glukose-Isomerase (GI)] zu unterschiedlichen Zeitpunkten zum Reaktionssystem hinzugefügt, um eine vollständige Nutzung des Maltodextrins zur Herstellung von D-Allulose zu erreichen. In diesem Biosystem beträgt die Gibbs-Energie der Dephosphorylierung von A6P zu D-Allulose -15,5 kJ/mol, was irreversibel ist. Dies zeigt, dass der für die D-Allulose-Herstellung erforderliche Dephosphorylierungsschritt thermodynamisch günstig und gerichtet ist, um die Gesamtreaktion in Richtung Vervollständigung zu treiben. Nach Optimierung der Reaktionsbedingungen erreichten die Produktionserträge von D-Allulose aus 10 bzw. 50 g/l Stärke 88,2 % bzw. 79,2 % ( Li et al., 2021 ). Insgesamt bietet diese thermodynamisch gesteuerte Strategie eine vielversprechende Alternative zur kosteneffizienten Produktion von D-Allulose. Da das System mehrere Enzyme enthält und die Schritte zur Enzymreinigung mühsam sind, kann die oben genannte Strategie die Anforderungen der Industrialisierung noch nicht erfüllen.
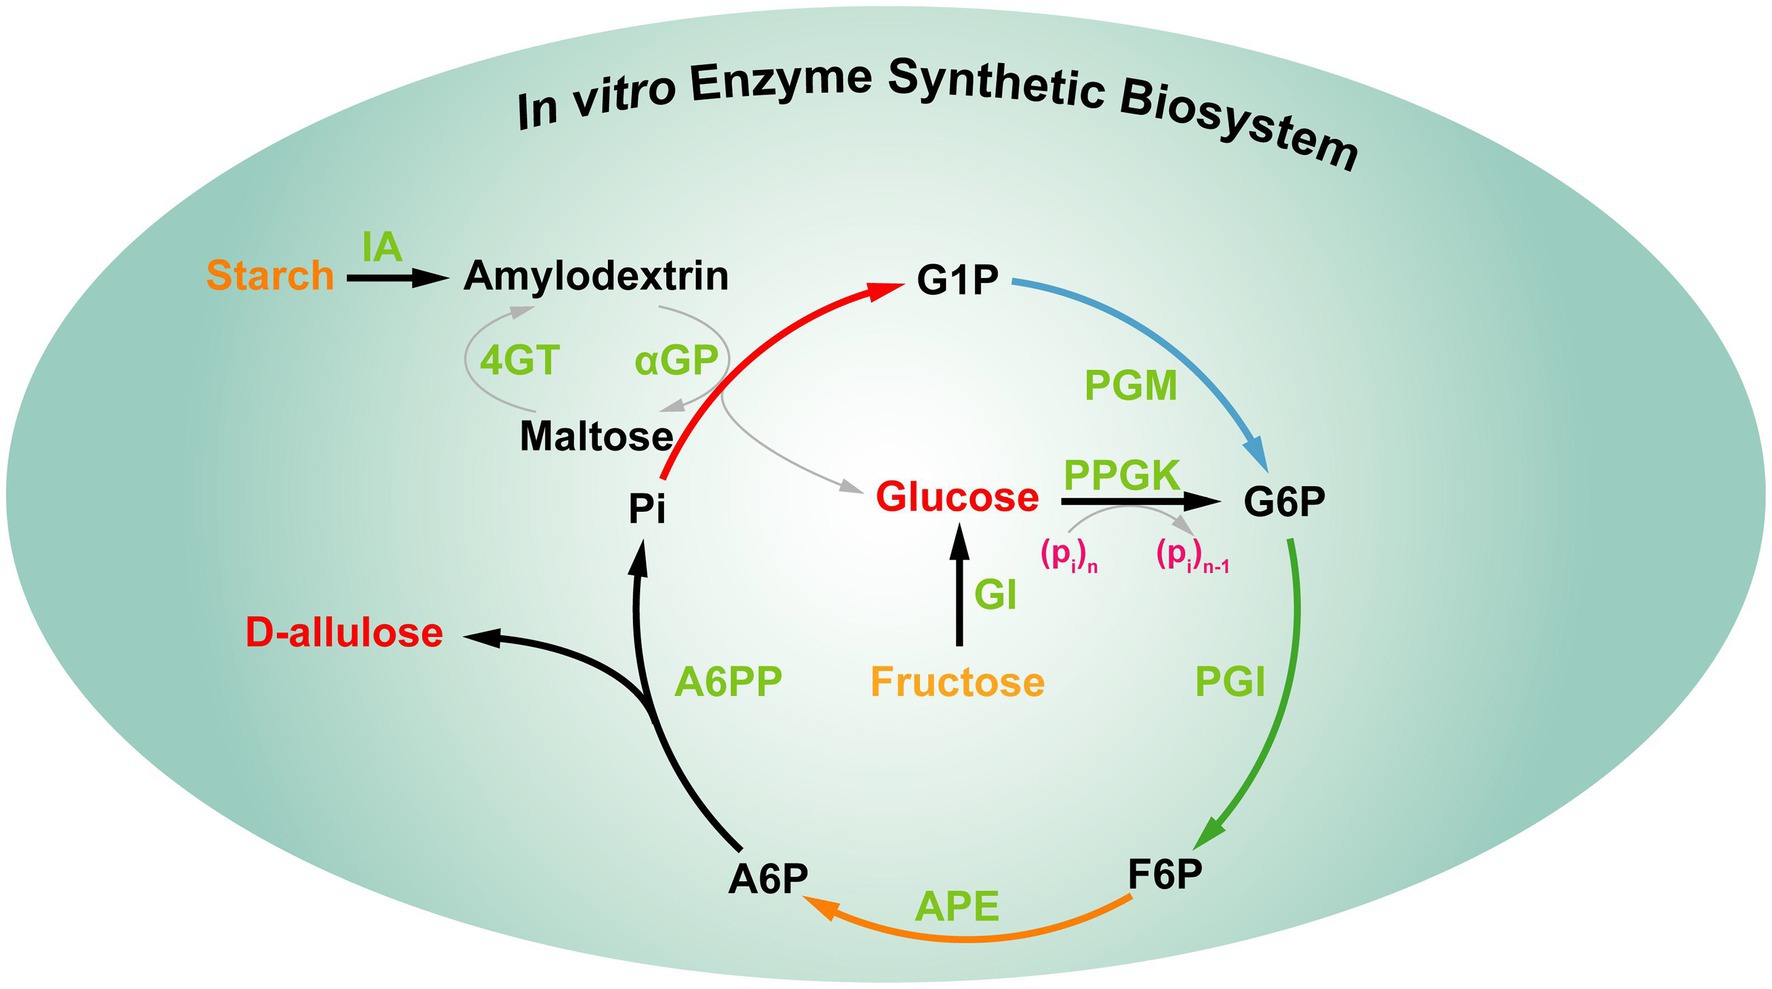
Abbildung 9. In vitro Multienzym-Synthese von D-Allulose aus Stärke. IA, Isoamylase; 4GT, 4-α-Glucanotransferase; αGP, α-Glucan-Phosphorylase; PGM, Phosphoglucomutase; PPGK, Polyphosphat-Glukokinase; PGI, Phosphoglukose-Isomerase; GI, Glukose-Isomerase; APE, D-Allulose-6-phosphat-3-Epimerase; A6PP, D-Allulose-6-phosphat-Phosphatase; G1P, Glukose-1-phosphat; G6P, Glukose-6-phosphat; F6P, Fruktose-6-phosphat; A6P, D-Allulose-6-phosphat.
Zusammenfassung und zukünftige Perspektiven
Die gebräuchlichste Methode zur Herstellung von D-Allulose basiert auf der Izumoring-Strategie, die durch das thermodynamische Gleichgewicht eingeschränkt ist, was zu einer niedrigen Konversionsrate und relativ hohen synthetischen Kosten führt.
Daher müssen neue und robuste Enzyme aus der DTEase-Familie entdeckt werden. Des Weiteren sind die Strategie der gerichteten Evolution (Zhang et al., 2016a; Zhu et al., 2019a) oder Enzymimmobilisierung (Ran et al., 2019; Wong et al., 2020) sehr nützlich, um die katalytische Leistung der DTEase zu verbessern.
Bei der DHAP-abhängigen Aldolase-Strategie werden D-Allulose und D-Sorbose gleichzeitig mit RhaD und D-Glycerinaldehyd als Akzeptor erzeugt. Zur Verbesserung der Stereoselektivität von Aldolasen werden zahlreiche fortgeschrittene Techniken und Methoden angewandt, einschließlich gerichteter Evolution (d’Oelsnitz and Ellington, 2018; Shepelin et al., 2018; Currin et al., 2021), Hochdurchsatz-Screening-Techniken (Ung et al., 2018; Rienzo et al., 2021) und rationales Design (Damborsky and Brezovsky, 2014; Windle et al., 2014; Kim et al., 2020).
Es ist offensichtlich, dass die thermodynamisch gesteuerte Strategie eine vielversprechende Methode zur Herstellung von D-Allulose ist. Eine zukünftige Richtung wäre der Aufbau einer mikrobiellen Zellfabrik unter Verwendung eines solchen Ansatzes. Zahlreiche metabolische Werkzeuge wie CRISPR/Cas9 können zur industriellen Produktion von D-Allulose beitragen (Wu et al., 2019; Nishida and Kondo, 2021), Selbstorganisation (Liu et al., 2019; Lange and Polizzi, 2021) und dynamische Regulierung (Hartline et al., 2021; Zhu et al., 2021).
Es ist zu hoffen, dass D-Allulose in naher Zukunft auch für den normalen Verbraucher erschwinglich wird.
Autorenbeiträge
ZC führte die Datenverarbeitung durch und verfasste den ursprünglichen Entwurf. X-DG trug zur Visualisierung, Untersuchung und Überwachung bei. ZL verfasste den Schreibteil – Überprüfung und Bearbeitung. Alle Autoren haben zum Artikel beigetragen und die eingereichte Version genehmigt.
Finanzierung
Diese Arbeit wurde von der Nationalen Stiftung für Naturwissenschaften Chinas (Nummern: 32171475, 31971216), der China Postdoctoral Science Foundation (Nummer: 2021M691285), dem Shandong Provincial Major Science and Technology Innovation Project (Nummer: 2019JZZY011006), der Jiangsu Provincial Natural Science Foundation (Nummer: BK20210465) sowie dem Programm zur Einführung von fachspezifischen Talenten an Universitäten (Nummer: 111-2-06) unterstützt.
Interessenkonflikt
Die Autoren erklären, dass die Forschung in Abwesenheit jeglicher kommerzieller oder finanzieller Beziehungen durchgeführt wurde, die als potenzieller Interessenkonflikt ausgelegt werden könnten.
Haftungsausschluss des Herausgebers
Alle in diesem Artikel geäußerten Aussagen sind ausschließlich die der Autoren und spiegeln nicht unbedingt die der verbundenen Organisationen, des Verlags, der Herausgeber oder der Gutachter wider. Der Verlag übernimmt keine Garantie für die im Artikel bewerteten Produkte oder für die vom Hersteller gemachten Angaben und unterstützt diese nicht.
Danksagung
Wir danken Zhou Xiaoman (Jiangnan Universität) für die Zeichnung.
Referenzen
Basu, A., Basu, R., Shah, P., Vella, A., Johnson, C. M., Jensen, M., et al. (2001). Typ-2-Diabetes beeinträchtigt die splanchnische Glukoseaufnahme, verändert jedoch nicht die intestinale Glukoseabsorption während der enteralen Glukoseernährung: weiterer Beleg für einen Defekt der hepatischen Glukokinase-Aktivität. Diabetes 50, 1351–1362. doi: 10.2337/diabetes.50.6.1351
Bilal, M., Iqbal, H. M. N., Hu, H., Wang, W., and Zhang, X. (2018). Metabolic engineering pathways for rare sugars biosynthesis, physiological functionalities, and applications-a review. Crit. Rev. Food Sci. Nutr. 58, 2768–2778. doi: 10.1080/10408398.2017.1341385
Bosshart, A., Panke, S., and Bechtold, M. (2013). Systematic optimization of interface interactions increases the thermostability of a multimeric enzyme. Angew. Chem. Int. Ed. Engl. 52, 9673–9676. doi: 10.1002/anie.201304141
Brovetto, M., Gamenara, D., Méndez, P. S., and Seoane, G. A. (2011). C-C bond-forming lyases in organic synthesis. Chem. Rev. 111, 4346–4403. doi: 10.1021/cr100299p
Castro-Muñoz, R., Correa-Delgado, M., Córdova-Almeida, R., Lara-Nava, D., Chávez-Muñoz, M., Velásquez-Chávez, V. F., et al. (2022). Natural sweeteners: sources, extraction and current uses in foods and food industries. Food Chem. 370:130991. doi: 10.1016/j.foodchem.2021.130991
Chen, J., Huang, W., Zhang, T., Lu, M., and Jiang, B. (2019). Anti-obesity potential of rare sugar D-psicose by regulating lipid metabolism in rats. Food Funct. 10, 2417–2425. doi: 10.1039/c8fo01089g
Chen, Z., Li, Z., Li, F., Wang, N., and Gao, X.-D. (2020b). Characterization of alditol oxidase from Streptomyces coelicolor and its application in the production of rare sugars. Bioorg. Med. Chem. 28:115464. doi: 10.1016/j.bmc.2020.115464
Chen, Z., Li, Z., Li, F., Wang, M., Wang, N., and Gao, X.-D. (2020a). Cascade synthesis of rare ketoses by whole cells based on L-rhamnulose-1-phosphate aldolase. Enzym. Microb. Technol. 133:109456. doi: 10.1016/j.enzmictec.2019.109456
Chen, X., Wang, W., Xu, J., Yuan, Z., Yuan, T., Zhang, Y., et al. (2017). Production of D-psicose from D-glucose by co-expression of D-psicose 3-epimerase and xylose isomerase. Enzym. Microb. Technol. 105, 18–23. doi: 10.1016/j.enzmictec.2017.06.003
Chen, J., Zhu, Y., Fu, G., Song, Y., Jin, Z., Sun, Y., et al. (2016). High-level intra- and extra-cellular production of D-psicose 3-epimerase via a modified xylose-inducible expression system in Bacillus subtilis. J. Ind. Microbiol. Biotechnol. 43, 1577–1591. doi: 10.1007/s10295-016-1819-6
Chung, Y. M., Hyun Lee, J., Youl Kim, D., Hwang, S. H., Hong, Y. H., Kim, S. B., et al. (2012). Dietary D-psicose reduced visceral fat mass in high-fat diet-induced obese rats. J. Food Sci. 77, H53–H58. doi: 10.1111/j.1750-3841.2011.02571.x
Currin, A., Parker, S., Robinson, C. J., Takano, E., Scrutton, N. S., and Breitling, R. (2021). The evolving art of creating genetic diversity: From directed evolution to synthetic biology. Biotechnol. Adv. 50:107762. doi: 10.1016/j.biotechadv.2021.107762
Dai, Y., Zhang, J., Jiang, B., Zhang, T., and Chen, J. (2021). New strategy for rare sugars biosynthesis: Aldol reactions using dihydroxyacetone phosphate (DHAP)-dependent aldolases. Food Biosci. 44:101377. doi: 10.1016/j.fbio.2021.101377
Damborsky, J., and Brezovsky, J. (2014). Computational tools for designing and engineering enzymes. Curr. Opin. Chem. Biol. 19, 8–16. doi: 10.1016/j.cbpa.2013.12.003
d’Oelsnitz, S., and Ellington, A. (2018). Continuous directed evolution for strain and protein engineering. Curr. Opin. Biotechnol. 53, 158–163. doi: 10.1016/j.copbio.2017.12.020
Doner, L. W. (1979). Isomerization of D-fructose by base: liquid-chromatographic evaluation and the isolation of D-psicose. Carbohydr. Res. 70, 209–216. doi: 10.1016/S0008-6215(00)87101-3
Granström, T. B., Takata, G., Tokuda, M., and Izumori, K. (2004). Izumoring: A novel and complete strategy for bioproduction of rare sugars. J. Biosci. Bioeng. 97, 89–94. doi: 10.1016/S1389-1723(04)70173-5
Grassi, B., Onetto, M. T., Zapata, Y., Jofré, P., and Echeverría, G. (2021). Lower versus standard sucrose dose for treating hypoglycemia in patients with type 1 diabetes mellitus in therapy with predictive low glucose suspend (PLGS) augmented insulin pumps: a randomized crossover trial in Santiago, Chile. Diabetes Metab. Syndr. Clin. Res. Rev. 15, 695–701. doi: 10.1016/j.dsx.2021.03.017
Guerrero-Wyss, M., Durán Agüero, S., und Angarita Dávila, L. (2018). D-Tagatose is a promising sweetener to control glycaemia: A new functional food. Biomed. Res. Int. 2018:8718053. doi: 10.1155/2018/8718053
Gustavo, S. (2000). Enzymatic C-C bond-forming reactions in organic synthesis. Curr. Org. Chem. 4, 283–304. doi: 10.2174/1385272003376283
Han, Y., Han, H. J., Kim, A. H., Choi, J. Y., Cho, S. J., Park, Y. B., et al. (2016). D-Allulose supplementation normalized the body weight and fat-pad mass in diet-induced obese mice via the regulation of lipid metabolism under isocaloric fed condition. Mol. Nutr. Food Res. 60, 1695–1706. doi: 10.1002/mnfr.201500771
Hartline, C. J., Schmitz, A. C., Han, Y., und Zhang, F. (2021). Dynamic control in metabolic engineering: theories, tools, and applications. Metab. Eng. 63, 126–140. doi: 10.1016/j.ymben.2020.08.015
Hayakawa, M., Hira, T., Nakamura, M., Iida, T., Kishimoto, Y., und Hara, H. (2018). Secretion of GLP-1 but not GIP is potently stimulated by luminal D-Allulose (D-Psicose) in rats. Biochem. Biophys. Res. Commun. 496, 898–903. doi: 10.1016/j.bbrc.2018.01.128
Hayashi, N., Iida, T., Yamada, T., Okuma, K., Takehara, I., Yamamoto, T., et al. (2010). Study on the postprandial blood glucose suppression effect of D-psicose in borderline diabetes and the safety of long-term ingestion by normal human subjects. Biosci. Biotechnol. Biochem. 74, 510–519. doi: 10.1271/bbb.90707
He, W., Jiang, B., Mu, W., und Zhang, T. (2016). Production of D-Allulose with D-psicose 3-epimerase expressed and displayed on the surface of Bacillus subtilis spores. J. Agric. Food Chem. 64, 7201–7207. doi: 10.1021/acs.jafc.6b03347
Herling, A. W., Burger, H.-J., Schwab, D., Hemmerle, H., Below, P., und Schubert, G. (1998). Pharmacodynamic profile of a novel inhibitor of the hepatic glucose-6-phosphatase system. Am. J. Phys. 274, G1087–G1093. doi: 10.2337/diabetes.47.5.85
Hoshikawa, H., Kamitori, K., Indo, K., Mori, T., Kamata, M., Takahashi, T., et al. (2018). Combined treatment with D-allose, docetaxel and radiation inhibits the tumor growth in an in vivo model of head and neck cancer. Oncol. Lett. 15, 3422–3428. doi: 10.3892/ol.2018.7787
Hossain, A., Yamaguchi, F., Matsuo, T., Tsukamoto, I., Toyoda, Y., Ogawa, M., et al. (2015). Rare sugar D-allulose: potential role and therapeutic monitoring in maintaining obesity and type 2 diabetes mellitus. Pharmacol. Therapeut. 155, 49–59. doi: 10.1016/j.pharmthera.2015.08.004
Iida, T., Kishimoto, Y., Yoshikawa, Y., Hayashi, N., Okuma, K., Tohi, M., et al. (2008). Acute D-psicose administration decreases the glycemic responses to an oral maltodextrin tolerance test in normal adults. J. Nutr. Sci. Vitaminol. 54, 511–514. doi: 10.3177/jnsv.54.511
Itoh, H., Sato, T., und Izumori, K. (1995). Preparation of D-psicose from D-fructose by immobilized D-tagatose 3-epimerase. J. Ferment. Bioeng. 79, 184–185. doi: 10.1016/0922-338X(95)94091-5
Iturrate, L., Sánchez-Moreno, I., Oroz-Guinea, I., Pérez-Gil, J., und García-Junceda, E. (2010). Preparation and characterization of a bifunctional aldolase/kinase enzyme: a more efficient biocatalyst for C-C bond formation. Chemistry 16, 4018–4030. doi: 10.1002/chem.200903096
Iwasaki, Y., Sendo, M., Dezaki, K., Hira, T., Sato, T., Nakata, M., et al. (2018). GLP-1 release and vagal afferent activation mediate the beneficial metabolic and chronotherapeutic effects of D-allulose. Nat. Commun. 9:113. doi: 10.1038/s41467-017-02488-y
Izumori, K. (2006). Izumoring: a strategy for bioproduction of all hexoses. J. Biotechnol. 124, 717–722. doi: 10.1016/j.jbiotec.2006.04.016
Jia, M., Mu, W., Chu, F., Zhang, X., Jiang, B., Zhou, L. L., et al. (2014). A D-psicose 3-epimerase with neutral pH optimum from Clostridium bolteae for D-psicose production: cloning, expression, purification, and characterization. Appl. Microbiol. Biotechnol. 98, 717–725. doi: 10.1007/s00253-013-4924-8
Kanasaki, A., Jiang, Z., Mizokami, T., Shirouchi, B., Iida, T., Nagata, Y., et al. (2019). D-allulose alters serum cholesterol levels partly via reducing serum pcsk9 levels in hamsters. Atherosclerosis 287:e201. doi: 10.1016/j.atherosclerosis.2019.06.611
Khan, S. A., Verma, P., Ur Rahman, L., und Parasharami, V. A. (2021). „Chapter 13 – Exploration of biotechnological studies in low-calorie sweetener Stevia rebaudiana: present and future prospects,“ in Medicinal and Aromatic Plants: Expanding Their Horizons Through Omics. eds. T. Aftab und K. R. Hakeem (Academic Press), 289–324.
Kim, H.-J., Hyun, E.-K., Kim, Y.-S., Lee, Y.-J., und Oh, D.-K. (2006). Characterization of an agrobacterium tumefaciens D-psicose 3-epimerase that converts D-fructose to D-psicose. Appl. Environ. Microbiol. 72, 981–985. doi: 10.1128/AEM.72.2.981-985.2006
Kim, S.-E., Kim, S. J., Kim, H.-J., und Sung, M.-K. (2017). D-Psicose, a sugar substitute, suppresses body fat deposition by altering networks of inflammatory response and lipid metabolism in C57BL/6J-ob/ob mice. J. Funct. Foods 28, 265–274. doi: 10.1016/j.jff.2016.11.029
Kim, T., Stogios, P. J., Khusnutdinova, A. N., Nemr, K., Skarina, T., Flick, R., et al. (2020). Rational engineering of 2-deoxyribose-5-phosphate aldolases for the biosynthesis of (R)-1,3-butanediol. J. Biol. Chem. 295, 597–609. doi: 10.1074/jbc.RA119.011363
Kimura, T., Kanasaki, A., Hayashi, N., Yamada, T., Iida, T., Nagata, Y., et al. (2017). D-Allulose enhances postprandial fat oxidation in healthy humans. Nutrition 43–44, 16–20. doi: 10.1016/j.nut.2017.06.007
Lai, W. T., Khong, N. M. H., Lim, S. S., Hee, Y. Y., Sim, B. I., Lau, K. Y., et al. (2017). A review: modified agricultural by-products for the development and fortification of food products and nutraceuticals. Trends Food Sci. Technol. 59, 148–160. doi: 10.1016/j.tifs.2016.11.014
Lange, O. J., und Polizzi, K. M. (2021). Click it or stick it: covalent and non-covalent methods for protein-self assembly. Curr. Opin. Syst. Biol. 28:100374. doi: 10.1016/j.coisb.2021.100374
Lee, D., Han, Y., Kwon, E. Y., und Choi, M. S. (2020). D-allulose ameliorates metabolic dysfunction in C57BL/KsJ-db/db mice. Molecules 25:3656. doi: 10.3390/molecules25163656
Li, A., Cai, L., Chen, Z., Wang, M., Wang, N., Nakanishi, H., et al. (2017). Recent advances in the synthesis of rare sugars using DHAP-dependent aldolases. Carbohydr. Res. 452, 108–115. doi: 10.1016/j.carres.2017.10.009
Li, Z., Cai, L., Wei, M., und Wang, P. G. (2012). One-pot four-enzyme synthesis of ketoses with fructose 1,6-bisphosphate aldolases from Staphylococcus carnosus and rabbit muscle. Carbohydr. Res. 357, 143–146. doi: 10.1016/j.carres.2012.05.007
Li, Z., He, B., Gao, Y., und Cai, L. (2015a). Synthesis of D-sorbose and D-psicose by recombinant Escherichia coli. J. Carbohydr. Chem. 34, 349–357. doi: 10.1080/07328303.2015.1068794
Li, Z., Li, F., Cai, L., Chen, Z., Qin, L., und Gao, X.-D. (2020b). One-pot multienzyme synthesis of rare ketoses from glycerol. J. Agric. Food Chem. 68, 1347–1353. doi: 10.1021/acs.jafc.9b06748
Li, Z., Li, Y., Duan, S., Liu, J., Yuan, P., Nakanishi, H., et al. (2015b). Bioconversion of D-glucose to D-psicose with immobilized D-xylose isomerase and D-psicose 3-epimerase on Saccharomyces cerevisiae spores. J. Ind. Microbiol. 42, 1117–1128. doi: 10.1007/s10295-015-1631-8
Li, C., Lin, J., Guo, Q., Zhang, C., Du, K., Lin, H., et al. (2018). D-Psicose 3-epimerase secretory overexpression, immobilization, and D-psicose biotransformation, separation and crystallization. J. Chem. Technol. Biotechnol. 93, 350–357. doi: 10.1002/jctb.5360
Li, Y., Shi, T., Han, P., und You, C. (2021). Thermodynamics-driven production of value-added D-allulose from inexpensive starch by an in vitro enzymatic synthetic biosystem. ACS Catal. 11, 5088–5099. doi: 10.1021/acscatal.0c05718
Li, W., Zhu, Y., Jiang, X., Zhang, W., Guang, C., und Mu, W. (2020a). One-pot production of D-allulose from inulin by a novel identified thermostable exoinulinase from Aspergillus piperis and Dorea sp. D-allulose 3-epimerase. Process Biochem. 99, 87–95. doi: 10.1016/j.procbio.2020.08.021
Lim, B. C., Kim, H. J., und Oh, D. K. (2009). A stable immobilized D-psicose 3-epimerase for the production of D-psicose in the presence of borate. Process Biochem. 44, 822–828. doi: 10.1016/j.procbio.2009.03.017
Liu, S., Ammirati, M. J., Song, X., Knafels, J. D., Zhang, J., Greasley, S. E., et al. (2012). Insights into mechanism of glucokinase activation: observation of multiple distinct protein conformations. J. Biol. Chem. 287, 13598–13610. doi: 10.1074/jbc.M111.274126
Liu, Z., Cao, S., Liu, M., Kang, W., und Xia, J. (2019). Self-assembled multienzyme nanostructures on synthetic protein scaffolds. ACS Nano 13, 11343–11352. doi: 10.1021/acsnano.9b04554
Lloyd, D. J., St Jean, D. J., Kurzeja, R. J., Wahl, R. C., Michelsen, K., Cupples, R., et al. (2013). Antidiabetic effects of glucokinase regulatory protein small-molecule disruptors. Nature 504, 437–440. doi: 10.1038/nature12724
Matsuo, T., und Izumori, K. (2009). D-Psicose inhibits intestinal alpha-glucosidase and suppresses the glycemic response after ingestion of carbohydrates in rats. J. Clin. Biochem. Nutr. 45, 202–206. doi: 10.3164/jcbn.09-36
Matsuo, T., Suzuki, H., Hashiguchi, M., und Izumori, K. (2002). D-psicose is a rare sugar that provides no energy to growing rats. J. Nutr. Sci. Vitaminol. 48, 77–80. doi: 10.3177/jnsv.48.77
McDonald, E. J. (1967). A new synthesis of D-psicose (D-ribo-hexulose). Carbohydr. Res. 5, 106–108. doi: 10.1016/0008-6215(67)85014-6
Moller, D., and Berger, J. (2003). Role of PPARs in the regulation of obesity-related insulin sensitivity and inflammation. Int. J. Obes. 27, S17–S21. doi: 10.1038/sj.ijo.0802494
Nagata, Y., Kanasaki, A., Tamaru, S., and Tanaka, K. (2015). D-psicose, an epimer of D-fructose, favorably alters lipid metabolism in Sprague–Dawley rats. J. Agric. Food Chem. 63, 3168–3176. doi: 10.1021/jf502535p
Narayan Patel, S., Singh, V., Sharma, M., Sangwan, R. S., Singhal, N. K., and Singh, S. P. (2018). Development of a thermo-stable and recyclable magnetic nanobiocatalyst for bioprocessing of fruit processing residues and D-allulose synthesis. Bioresour. Technol. 247, 633–639. doi: 10.1016/j.biortech.2017.09.112
Natsume, Y., Yamada, T., Iida, T., Ozaki, N., Gou, Y., Oshida, Y., et al. (2021). Investigation of D-allulose effects on high-sucrose diet-induced insulin resistance via hyperinsulinemic-euglycemic clamps in rats. Heliyon 7:e08013. doi: 10.1016/j.heliyon.2021.e08013
Nishida, K., and Kondo, A. (2021). CRISPR-derived genome editing technologies for metabolic engineering. Metab. Eng. 63, 141–147. doi: 10.1016/j.ymben.2020.12.002
Ochiai, M., Onishi, K., Yamada, T., Iida, T., and Matsuo, T. (2014). D-psicose increases energy expenditure and decreases body fat accumulation in rats fed a high-sucrose diet. Int. J. Food Sci. Nutr. 65, 245–250. doi: 10.3109/09637486.2013.845653
Park, S. Y., and Yoon, K. Y. (2015). Enzymatic production of soluble dietary fiber from the cellulose fraction of Chinese cabbage waste and potential use as a functional food source. Food Sci. Biotechnol. 24, 529–535. doi: 10.1007/s10068-015-0069-0
Pfefferkorn, J. A. (2013). Strategies for the design of hepatoselective glucokinase activators to treat type 2 diabetes. Expert. Opin. Drug. Discov. 8, 319–330. doi: 10.1517/17460441.2013.748744
Qi, Z., Zhu, Z., Wang, J.-W., Li, S., Guo, Q., Xu, P., et al. (2017). Biochemical analysis and the preliminary crystallographic characterization of D-tagatose 3-epimerase from Rhodobacter sphaeroides. Microb. Cell Factories 16:193. doi: 10.1186/s12934-017-0808-4
Ran, G., Tan, D., Zhao, J., Fan, F., Zhang, Q., Wu, X., et al. (2019). Functionalized polyhydroxyalkanoate nano-beads as a stable biocatalyst for cost-effective production of the rare sugar D-allulose. Bioresour. Technol. 289:121673. doi: 10.1016/j.biortech.2019.121673
Rienzo, M., Jackson, S. J., Chao, L. K., Leaf, T., Schmidt, T. J., Navidi, A. H., et al. (2021). High-throughput screening for high-efficiency small-molecule biosynthesis. Metab. Eng. 63, 102–125. doi: 10.1016/j.ymben.2020.09.004
Sánchez-Moreno, I., Francisco García-García, J., Bastida, A., and García-Junceda, E. (2004). Multienzyme system for dihydroxyacetone phosphate-dependent aldolase catalyzed C–C bond formation from dihydroxyacetone. Chem. Commun. 35, 1634–1635. doi: 10.1002/chin.200447149
Schümperli, M., Pellaux, R., and Panke, S. (2007). Chemical and enzymatic routes to dihydroxyacetone phosphate. Appl. Microbiol. Biotechnol. 75, 33–45. doi: 10.1007/s00253-007-0882-3
Shepelin, D., Hansen, A. S. L., Lennen, R., Luo, H., and Herrgård, M. J. (2018). Selecting the best: evolutionary engineering of chemical production in microbes. Genes 9:249. doi: 10.3390/genes9050249
Shintani, T., Sakoguchi, H., Yoshihara, A., Izumori, K., and Sato, M. (2017a). D-Allulose, a stereoisomer of D-fructose, extends Caenorhabditis elegans lifespan through a dietary restriction mechanism: a new candidate dietary restriction mimetic. Biochem. Biophys. Res. Commun. 493, 1528–1533. doi: 10.1016/j.bbrc.2017.09.147
Shintani, T., Yamada, T., Hayashi, N., Iida, T., Nagata, Y., Ozaki, N., et al. (2017b). Rare sugar syrup containing D-allulose but not high-fructose corn syrup maintains glucose tolerance and insulin sensitivity partly via hepatic glucokinase translocation in Wistar rats. J. Agric. Food Chem. 65, 2888–2894. doi: 10.1021/acs.jafc.6b05627
Song, Y., Nguyen, Q. A., Wi, S. G., Yang, J., and Bae, H. J. (2016). Strategy for dual production of bioethanol and D-psicose as value-added products from cruciferous vegetable residue. Bioresour. Technol. 223, 34–39. doi: 10.1016/j.biortech.2016.10.021
Song, Y., Oh, C., and Bae, H.-J. (2017). Simultaneous production of bioethanol and value-added D-psicose from Jerusalem artichoke (Helianthus tuberosus L.) tubers. Bioresour. Technol. 244, 1068–1072. doi: 10.1016/j.biortech.2017.08.079
Su, L., Sun, F., Liu, Z., Zhang, K., and Wu, J. (2018). Highly efficient production of clostridium cellulolyticum H10 D-psicose 3-epimerase in Bacillus subtilis and use of these cells to produce D-psicose. Microb. Cell Factories 17:188. doi: 10.1186/s12934-018-1037-1
Suna, S., Yamaguchi, F., Kimura, S., Tokuda, M., and Jitsunari, F. (2007). Preventive effect of D-psicose, one of rare ketohexoses, on di-(2-ethylhexyl) phthalate (DEHP)-induced testicular injury in rat. Toxicol. Lett. 173, 107–117. doi: 10.1016/j.toxlet.2007.06.015
Takata, M. K., Yamaguchi, F., Nakanose, K., Watanabe, Y., Hatano, N., Tsukamoto, I., et al. (2005). Neuroprotective effect of D-psicose on 6-hydroxydopamine-induced apoptosis in rat pheochromocytoma (PC12) cells. J. Biosci. Bioeng. 100, 511–516. doi: 10.1263/jbb.100.511
Toyoda, Y., Mori, S., Umemura, N., Futamura, N., Inoue, H., Hata, T., et al. (2010). Suppression of blood glucose levels by D-psicose in glucose tolerance test in diabetic rats. Jpn. Pharmacol. Ther. 65, 2888–2894. doi: 10.1021/acs.jafc.6b05627
Tseng, C.-W., Liao, C.-Y., Sun, Y., Peng, C.-C., Tzen, J. T. C., Guo, R.-T., et al. (2014). Immobilization of clostridium cellulolyticum D-psicose 3-epimerase on artificial oil bodies. J. Agric. Food Chem. 62, 6771–6776. doi: 10.1021/jf502022w
Ung, Y. T., Ong, C. E., and Pan, Y. (2018). Current high-throughput approaches of screening modulatory effects of xenobiotics on cytochrome P450 (CYP) enzymes. High Throughput. 7:29. doi: 10.3390/ht7040029
Wagner, N., Bosshart, A., Failmezger, J., Bechtold, M., and Panke, S. (2015). A separation-integrated cascade reaction to overcome thermodynamic limitations in rare-sugar synthesis. Angew. Chem. Int. Ed. Engl. 54, 4182–4186. doi: 10.1002/anie.201411279
Wei, M., Li, Z., Li, T., Wu, B., Liu, Y., Qu, J., et al. (2015). Transforming flask reaction into cell-based synthesis: production of polyhydroxylated molecules via engineered Escherichia coli. ACS Catal. 5, 4060–4065. doi: 10.1021/acscatal.5b00953
Windle, C. L., Müller, M., Nelson, A., and Berry, A. (2014). Engineering aldolases as biocatalysts. Curr. Opin. Chem. Biol. 19, 25–33. doi: 10.1016/j.cbpa.2013.12.010
Wong, J. X., Ogura, K., Chen, S., and Rehm, B. H. A. (2020). Bioengineered polyhydroxyalkanoates as immobilized enzyme scaffolds for industrial applications. Front. Bioeng. Biotechnol. 8:156. doi: 10.3389/fbioe.2020.00156
Wu, Y., Chen, T., Liu, Y., Tian, R., Lv, X., Li, J., et al. (2019). Design of a programmable biosensor-CRISPRi genetic circuits for dynamic and autonomous dual-control of metabolic flux in Bacillus subtilis. Nucleic Acids Res. 48, 996–1009. doi: 10.1093/nar/gkz1123
Wu, S., and Li, Z. (2018). Whole-cell cascade biotransformations for one-pot multistep organic synthesis. ChemCatChem 10, 2164–2178. doi: 10.1002/cctc.201701669
Xia, Y., Cheng, Q., Mu, W., Hu, X., Sun, Z., Qiu, Y., et al. (2021). Research advances of D-allulose: An overview of physiological functions, enzymatic biotransformation technologies, and production processes. Foods 10:2186. doi: 10.3390/foods10092186
Yang, J., Tian, C., Zhang, T., Ren, C., Zhu, Y., Zeng, Y., et al. (2019). Development of food-grade expression system for D-allulose 3-epimerase preparation with tandem isoenzyme genes in Corynebacterium glutamicum and its application in conversion of cane molasses to D-allulose. Biotechnol. Bioeng. 116, 745–756. doi: 10.1002/bit.26909
Yang, J., Zhu, Y., Li, J., Men, Y., Sun, Y., and Ma, Y. (2015). Biosynthesis of rare ketoses through constructing a recombination pathway in an engineered Corynebacterium glutamicum. Biotechnol. Bioeng. 112, 168–180. doi: 10.1002/bit.25345
Yang, J., Zhu, Y., Men, Y., Sun, S., Zeng, Y., Zhang, Y., et al. (2016). Pathway construction in Corynebacterium glutamicum and strain engineering to produce rare sugars from glycerol. J. Agric. Food Chem. 64, 9497–9505. doi: 10.1021/acs.jafc.6b03423
Yoshihara, A., Kozakai, T., Shintani, T., Matsutani, R., Ohtani, K., Iida, T., et al. (2017). Purification and characterization of D-allulose 3-epimerase derived from Arthrobacter globiformis M30, a GRAS microorganism. J. Biosci. Bioeng. 123, 170–176. doi: 10.1016/j.jbiosc.2016.09.004
Zhang, W., Chen, D., Chen, J., Xu, W., Chen, Q., Wu, H., et al. (2021). D-allulose, a versatile rare sugar: recent biotechnological advances and challenges. Crit. Rev. Food Sci. Nutr. doi: 10.1080/10408398.2021.2023091
Zhang, W., Jia, M., Yu, S., Zhang, T., Zhou, L., Jiang, B., et al. (2016a). Improving the thermostability and catalytic efficiency of the D-psicose 3-epimerase from Clostridium bolteae ATCC BAA-613 using site-directed mutagenesis. J. Agric. Food Chem. 64, 3386–3393. doi: 10.1021/acs.jafc.6b01058
Zhang, W., Li, H., Jiang, B., Zhang, T., and Mu, W. (2017). Production of D-allulose from D-glucose by Escherichia coli transformant cells co-expressing D-glucose isomerase and D-psicose 3-epimerase genes. J. Sci. Food Agric. 97, 3420–3426. doi: 10.1002/jsfa.8193
Zhang, W., Li, H., Zhang, T., Jiang, B., Zhou, L., and Mu, W. (2015). Characterization of a D-psicose 3-epimerase from Dorea sp. CAG317 with an acidic pH optimum and a high specific activity. J. Mol. Catal. B Enzym. 120, 68–74. doi: 10.1016/j.molcatb.2015.05.018
Zhang, J., Xu, C., Chen, X., Ruan, X., Zhang, Y., Xu, H., et al. (2020). Engineered Bacillus subtilis harbouring gene of D-tagatose 3-epimerase for the bioconversion of D-fructose into D-psicose through fermentation. Enzym. Microb. Technol. 136:109531. doi: 10.1016/j.enzmictec.2020.109531
Zhang, W., Yu, S., Zhang, T., Jiang, B., and Mu, W. (2016b). Recent advances in D-allulose: physiological functionalities, applications, and biological production. Trends Food Sci. Technol. 54, 127–137. doi: 10.1016/j.tifs.2016.06.004
Zhang, W., Zhang, T., Jiang, B., and Mu, W. (2016c). Biochemical characterization of a D-psicose 3-epimerase from Treponema primitia ZAS-1 and its application on enzymatic production of D-psicose. J. Sci. Food Agric. 96, 49–56. doi: 10.1002/jsfa.7187
Zhu, Z., Gao, D., Li, C., Chen, Y., Zhu, M., Liu, X., et al. (2019a). Redesign of a novel D-allulose 3-epimerase from Staphylococcus aureus for thermostability and efficient biocatalytic production of D-allulose. Microb. Cell Factories 18:59. doi: 10.1186/s12934-019-1107-z
Zhu, Z., Li, C., Liu, X., Gao, D., Wang, X., Tanokura, M., et al. (2019b). Biochemical characterization and biocatalytic application of a novel D-tagatose 3-epimerase from Sinorhizobium sp. RSC Adv. 9, 2919–2927. doi: 10.1039/C8RA10029B
Zhu, Y., Li, Y., Xu, Y., Zhang, J., Ma, L., Qi, Q., et al. (2021). Development of bifunctional biosensors for sensing and dynamic control of glycolysis flux in metabolic engineering. Metab. Eng. 68, 142–151. doi: 10.1016/j.ymben.2021.09.011
Schlüsselwörter: seltene Zucker, D-Allulose, D-Allulose-3-Epimerase, Biosynthese, Aldolasen, Anwendungen
Zitierweise: Chen Z, Gao XD und Li Z (2022) Aktuelle Fortschritte zu den physiologischen Funktionen und der Biosynthese von D-Allulose. Front. Microbiol . 13:881037. doi: 10.3389/fmicb.2022.881037
Begutachtet von:
Youqiang Xu , Pekinger Universität für Technologie und Wirtschaft, China;Xinqiang Xie , Akademie der Wissenschaften Guangdong, China.
Copyright © 2022 Chen, Gao und Li. Dies ist ein Open-Access-Artikel, der unter den Bedingungen der Creative Commons Attribution (CC BY) Lizenz verbreitet wird. Die Verwendung, Verbreitung oder Vervielfältigung in anderen Foren ist gestattet, sofern die ursprünglichen Autoren und die Urheberrechtsinhaber genannt werden und die Veröffentlichung in der ursprünglichen Fachzeitschrift gemäß der akzeptierten wissenschaftlichen Praxis zitiert wird. Eine Verwendung, Verbreitung oder Vervielfältigung, die nicht mit diesen Bedingungen übereinstimmt, ist nicht gestattet.
*Korrespondenz: Zijie Li, lizijie@jiangnan.edu.cn
Rechtlicher Hinweis: Alle in diesem Artikel geäußerten Aussagen liegen in der alleinigen Verantwortung der Autoren und spiegeln nicht unbedingt die Ansichten ihrer angeschlossenen Organisationen, des Herausgebers, der Redakteure oder der Gutachter wider. Der Herausgeber garantiert keine in diesem Artikel bewerteten Produkte oder Aussagen des Herstellers und unterstützt diese nicht.
