

Resultados mais recentes sobre as funções fisiológicas e a biossíntese da D-alulose
Allulose StoreAudição da página
Fonte: frontiers
Secção de Microbiologia Alimentar
Volume 13 - 2022 |https://doi.org/10.3389/fmicb.2022.881037
Este artigo faz parte do tópico de investigaçãoTecnologias microbianas inovadoras para uma ciência alimentar futura e sustentável
Resultados mais recentes sobre as funções fisiológicas e biossíntese da D-alulose
- Laboratório Chave de Química e Biotecnologia de Hidratos de Carbono, Ministério da Educação, Escola de Biotecnologia, Universidade de Jiangnan, Wuxi, China
A D-alulose, um açúcar geralmente reconhecido como seguro (GRAS), é rara na natureza.
Devido ao seu baixo teor calórico, sabor semelhante ao da sacarose e funções únicas, é um dos adoçantes mais promissores para utilização futura.
A D-alulose tem vários efeitos fisiológicos, tais como efeitos anti-obesidade, anti-hiperglicémia, anti-diabéticos, anti-inflamatórios, antioxidantes e neuroprotetores.
Portanto, a D-alulose tem um importante valor de aplicação nas indústrias alimentar, farmacêutica e da saúde.
No entanto, o elevado custo de produção da D-alulose limita a sua aplicação em larga escala. Atualmente, a biotransformação é muito atrativa para a síntese de D-alulose, sendo os dois principais métodos de biossíntese a estratégia Izumoring e a estratégia da aldolase dependente de DHAP.
Este artigo fornece uma visão geral dos resultados mais recentes relacionados com as funções fisiológicas e a biossíntese da D-alulose. Além disso, apresenta as perspetivas futuras para a produção de D-alulose.
Introdução
Recentemente, o risco de obesidade, hiperlipidemia, hipertensão e diabetes aumentou rapidamente em todo o mundo devido ao consumo excessivo de dietas ricas em gorduras e açúcares.
A sacarose, um adoçante alimentar tradicional, desempenha um papel importante na indústria alimentar devido à sua doçura e palatabilidade (Castro-Muñoz et al., 2022).
No entanto, a sacarose apresenta algumas desvantagens, como o seu elevado valor calórico, a capacidade de provocar respostas hiperglicémicas e a diabetes (Grassi et al., 2021).
Por conseguinte, os substitutos adoçantes de baixo teor calórico despertaram o interesse dos investigadores (Khan et al., 2021).
Foram reportados mais de 30 tipos de açúcares raros (Granström et al., 2004). Possuem funções biológicas únicas e são utilizados como aditivos alimentares, supressores de células cancerígenas, bem como blocos de construção para fármacos anticancerígenos e antivirais (Zhang et al., 2016b;Li et al., 2017;Guerrero-Wyss et al., 2018;Hoshikawa et al., 2018;Xia et al., 2021).
A D-alulose (também conhecida como D-psicose) é a mais notável entre os açúcares raros.
Passaram mais de 20 anos desde que Ken Izumori relatou a D-alulose pela primeira vez (Itoh et al., 1995).
Apresenta 70% da sua doçura, mas apenas 0,3% do seu teor energético em comparação com a sacarose.
Além disso, quase não contém calorias (Matsuo et al., 2002).
Como um bioproduto industrialmente importante, a D-alulose foi classificada pela Food and Drug Administration (FDA) dos Estados Unidos em 2002 como uma substância "geralmente reconhecida como segura" (GRAS) e aprovada para uso em doces, sumos, suplementos alimentares e outros produtos dietéticos.
Portanto, a D-alulose tem um importante valor de aplicação nas indústrias alimentar, farmacêutica e da saúde.
Espera-se que a D-alulose altere o mercado de adoçantes devido ao seu baixo teor calórico e palatabilidade, uma vez que será capaz de competir com outros substitutos do açúcar (polióis, como xilitol, manitol e sorbitol).
Prevê-se que o preço comercial da D-alulose se aproxime do preço dos adoçantes substitutos do açúcar concorrentes, tais como o xilitol (2–5 USD/kg), manitol (1–5 USD/kg) e sorbitol (1–10 USD/kg).
Num futuro próximo, a D-alulose tornar-se-á competitiva na produção em larga escala, semelhante a outros adoçantes com um consumo de vários milhões de toneladas por ano.
Atualmente, os fatores que limitam a produção e o preço da D-alulose incluem o elevado preço das matérias-primas, os baixos rendimentos e a dificuldade de isolamento.
Neste artigo, resumimos e discutimos os resultados mais recentes relacionados com as funções fisiológicas e a biossíntese da D-alulose.
Funções fisiológicas da D-alulose
O efeito da D-alulose no metabolismo lipídico
Demonstrou-se que a D-alulose possui efeitos anti-obesidade em animais e humanos através da redução da ingestão alimentar, da massa gorda e do peso do tecido adiposo (Kimura et al., 2017;Bilal et al., 2018).
Além disso, inúmeras evidências sugerem que a D-alulose pode aumentar o gasto energético e reduzir a acumulação de gordura em ratos normais (Chung et al., 2012;Ochiai et al., 2014).
Embora a D-alulose possa reduzir o peso do tecido adiposo, o mecanismo ainda é desconhecido.
Pode reduzir a atividade da ácido gordo sintase (FSA) e aumentar a β-oxidação e a atividade da carnitina palmitoiltransferase (CPT) no tecido adiposo branco epididimal (WAT;Han et al., 2016).
Além disso, a D-alulose na dieta pode inibir a expressão da acetil-CoA carboxilase alfa (ACCα) relacionada com a lipogénese no WAT epididimal.
Adicionalmente, a D-alulose na dieta pode estimular a expressão da proteína quinase ativada por AMP alfa 2 (AMPKα2), lipase sensível a hormonas (HSL) e recetor alfa ativado por proliferador de peroxissoma (PPARα) relacionados com a oxidação de ácidos gordos (Chen et al., 2019). Portanto, a D-alulose possui potenciais propriedades anti-obesidade.
O efeito anti-hiperglicémico da D-alulose
A nutrição inadequada levou a um rápido aumento da incidência de obesidade e da diabetes tipo 2 (T2DM) induzida pela obesidade em todo o mundo, o que aumenta significativamente os custos do tratamento destas doenças crónicas.
Portanto, é muito importante identificar intervenções terapêuticas eficazes para tratar a diabetes e as suas complicações. A D-alulose recebeu grande atenção devido às suas propriedades anti-hiperglicémicas promissoras, uma vez que é capaz de regular os níveis plasmáticos de glicose, o peso corporal e a massa gorda (Matsuo e Izumori, 2009;Hossain et al., 2015;Lee et al., 2020).
No entanto, o mecanismo do seu efeito antidiabético ainda não está claro. Supõe-se que a D-alulose afete os níveis de açúcar no sangue e a secreção de insulina, ou a atividade da glucosidase e das enzimas lipolíticas.
Foi demonstrado que a D-alulose inibe significativamente o aumento da concentração plasmática de glicose induzido pela sacarose ou maltose (Matsuo e Izumori, 2009).
Além disso, demonstrou-se que a D-alulose inibe eficazmente a atividade da sacarase e maltase intestinal.
A adição de D-alulose (5 g) pode suprimir significativamente o aumento dos níveis de açúcar no sangue induzido por maltodextrina oral (75 g) em adultos saudáveis.
Além disso, a D-alulose oral isolada não afeta os níveis de glicose e insulina no sangue (Iida et al., 2008).
Foi também demonstrado que a D-alulose inibe o aumento do açúcar no sangue pós-prandial, principalmente em pacientes com diabetes limítrofe, e não foram detetados efeitos secundários ou problemas clínicos após 12 semanas de ingestão contínua de D-alulose (Hayashi et al., 2010).
Embora vários estudos tenham demonstrado que a D-alulose possui atividade antidiabética, o mecanismo ainda não está totalmente esclarecido.
No fígado, o metabolismo da D-glicose é regulado pelo deslocamento nucleocitoplasmático da glicoquinase (Hossain et al., 2015).
Com baixos níveis de glicose, a glicoquinase permanece na forma inativa ligada à proteína reguladora da glicoquinase (GKRP), que é recrutada para o núcleo do hepatócito. Quando os níveis de glicose atingem níveis elevados, a glicoquinase é ativada pela dissociação do complexo glicoquinase-GKRP e transloca-se do núcleo para o citoplasma, onde participa no metabolismo do glicogénio e na homeostase do açúcar no sangue (Liu et al., 2012).
Por exemplo, a ativação da glicoquinase pode melhorar a tolerância à glicose e a sensibilidade à insulina (Shintani et al., 2017b).
O funcionamento prejudicado da glicoquinase hepática na diabetes leva à patogénese da hiperglicémia (Basu et al., 2001).
Portanto, a glicoquinase é considerada um alvo potencial para medicamentos antidiabéticos (Lloyd et al., 2013).
Além disso, a glicoquinase é ativada por vários fosfatos de frutose, tais como a frutose-6-fosfato (F6P) e a frutose-1-fosfato (F1P;Pfefferkorn, 2013).
A D-alulose-1-fosfato, tal como a frutose-1-fosfato, também ativa a glicoquinase. Portanto, a D-alulose pode aumentar a utilização hepática de glicose (Toyoda et al., 2010).
A glicose-6-fosfatase (G6Pase) contribui para a hiperglicémia na diabetes e regula as etapas limitantes da taxa de fluxo gluconeogénico hepático (Herling et al., 1998).
A D-alulose pode regular os níveis de açúcar no sangue e exercer um efeito hipolipidémico reduzindo a atividade da G6Pase (Nagata et al., 2015).
Relatórios indicam que a administração oral de D-alulose pode estimular a secreção de GLP-1 e, portanto, ser aplicada na prevenção e tratamento da intolerância à glicose (Hayakawa et al., 2018).
Recentemente, confirmou-se que a D-alulose induz a libertação de GLP-1, ativa a sinalização aferente vagal, reduz a ingestão alimentar e limita a hiperglicémia em ratos saudáveis e ratos obesos diabéticos.
Além disso, a D-alulose oral pode corrigir a alimentação compulsiva, a obesidade e a diabetes (Iwasaki et al., 2018).
Outras funções fisiológicas da D-alulose
A D-alulose exerce um efeito anti-inflamatório através da supressão dos níveis séricos de citocinas pró-inflamatórias, tais como o fator de necrose tumoral alfa (TNF-α), a interleucina-6 (IL-6) e a proteína quimiotática de monócitos 1 (MCP-1). Estas citocinas provêm principalmente dos tecidos adiposos viscerais ( Moller e Berger, 2003 ; Kim et al., 2017 ).
A D-alulose possui também um efeito antioxidante, protegendo contra a apoptose induzida pela 6-hidroxidopamina ou prevenindo danos testiculares através da eliminação de espécies reativas de oxigénio (EROs) ( Takata et al., 2005 ; Suna et al., 2007 ).
A D-alulose pode também prolongar a esperança de vida aumentando a atividade da superóxido dismutase (SOD) e da catalase (CAT) ( Shintani et al., 2017a ).
Além disso, foi demonstrado que a D-alulose altera os níveis de colesterol sérico em hamsters, em parte através da redução dos níveis de proproteína convertase subtilisina/kexina tipo 9 (Pcsk9) ( Kanasaki et al., 2019 ).
Adicionalmente, a D-alulose pode melhorar a sensibilidade sistémica e muscular à insulina em ratos acordados ( Natsume et al., 2021 ). As várias funções fisiológicas da D-alulose estão ilustradas na Figura 1.
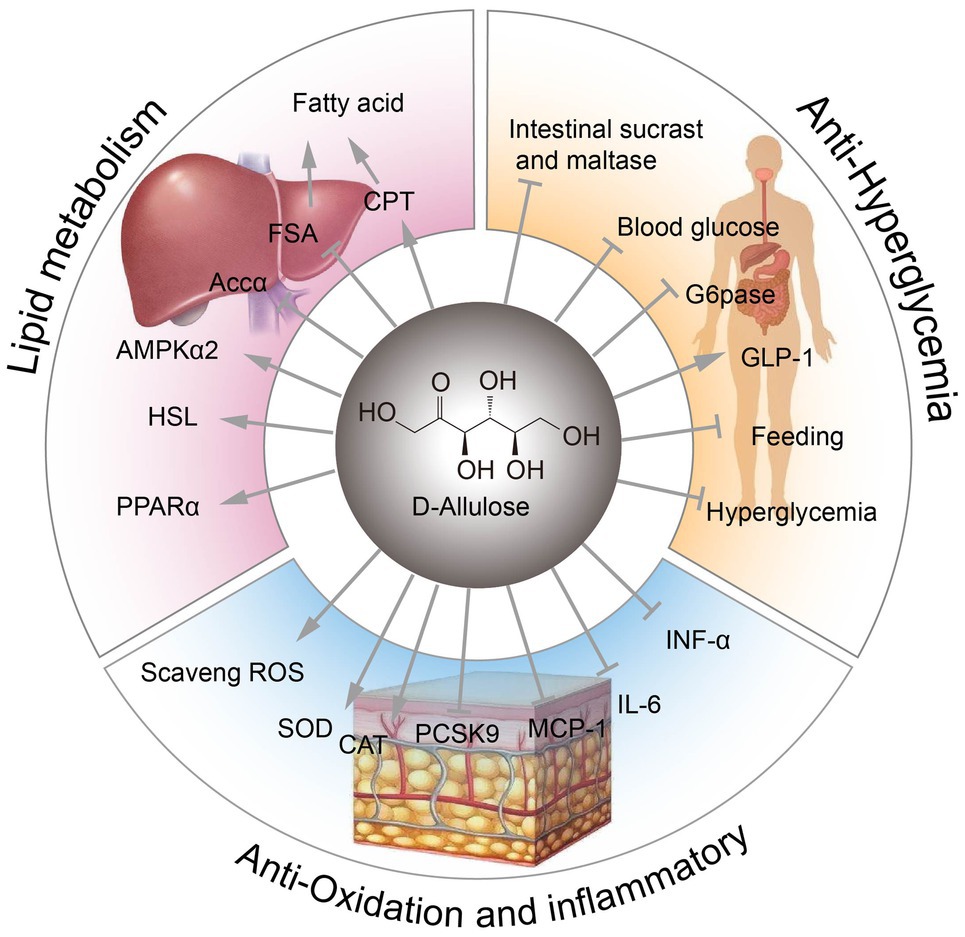
Figura 1 . Funções fisiológicas da D-alulose. FSA, ácido gordo sintase; CPT, carnitina palmitoiltransferase; ACCα, acetil-CoA carboxilase alfa; AMPKα, proteína cinase ativada por AMP alfa; HSL, lipase sensível a hormonas; PPARα, recetor ativado por proliferador de peroxissomas alfa; ROS, espécies reativas de oxigénio; SOD, superóxido dismutase; CAT, atividade da catalase; Pcsk9, proproteína convertase subtilisina/kexina tipo 9; MCP-1, proteína quimiotática de monócitos 1; G6Pase, glucose-6-fosfatase.
Produção biológica de D-alulose
Como descrito acima, a D-alulose apresenta inúmeras funções fisiológicas benéficas. Contudo, a D-alulose é rara na natureza, o que limita significativamente a sua ampla aplicação. A síntese química tradicional da D-alulose envolve geralmente reações difíceis e inúmeras reações secundárias ( McDonald, 1967 ; Doner, 1979 ).
É difícil produzir uma configuração de produto única através de métodos químicos.
Por outro lado, as abordagens de bioconversão oferecem várias vantagens, incluindo condições de reação suaves, poucos subprodutos, passos de purificação simples e propriedades ecológicas ( Zhang et al., 2021 ).
Por conseguinte, a biotransformação tornou-se gradualmente o principal método de síntese de D-alulose.
Atualmente, a produção biológica de D-alulose é alcançada principalmente através de duas estratégias: (1) a estratégia Izumoring e (2) a estratégia da aldolase dependente de DHAP.
Produção de D-alulose utilizando a estratégia Izumoring
Produção de D-alulose a partir de D-frutose utilizando enzimas da família D-tagatose 3-epimerase
A estratégia Izumoring é uma abordagem promissora para a bioprodução de qualquer açúcar hexose e envolve D-tagatose 3-epimerases (DTEases), poliol desidrogenases e aldose isomerases ( Izumori, 2006 ).
Nas últimas décadas, a estratégia Izumoring provou ser eficaz na biossíntese de açúcares raros.
As enzimas da família DTEase são enzimas chave para a biossíntese de D-alulose a partir de D-frutose ( Figura 2 ), incluindo a DTEase e a D-alulose 3-epimerase (DAEase).
A DAEase mostra uma maior especificidade pela D-alulose do que pela D-tagatose ( Kim et al., 2006 ).
Desde a identificação da primeira DTEase proveniente da Pseudomonas cichorii ST-24 em 1993, outras enzimas DTEase foram isoladas de várias espécies, tais como Agrobacterium tumefaciens ( Kim et al., 2006 ), Clostridium bolteae ( Jia et al., 2014 ), Dorea sp. CAG317 ( Zhang et al., 2015 ), Ruminococcus sp. 5_1_39BFAA ( Chen et al., 2016 ), Treponema primitia ZAS-1 ( Zhang et al., 2016c ), Rhodobacter sphaeroides ( Qi et al., 2017 ), Ruminococcus sp. ( Li et al., 2018 ), Arthrobacter globiformis M30 ( Yoshihara et al., 2017 ), Clostridium cellulolyticum H10 ( Su et al., 2018 ), Sinorhizobium sp. ( Zhu et al., 2019b ), bem como Rhodopirellula baltica SH 1 ( Zhang et al., 2020 ). Os detalhes das propriedades catalíticas das enzimas da família DTEase provenientes de diferentes espécies são apresentados na Tabela 1 . Itoh et al. (1995) relataram pela primeira vez a imobilização de DTEase de P. cichorii em esferas de chitopearl e produziram 90 g de D-alulose a partir de 500 g de D-frutose.
Desde então, os métodos de imobilização de DTEase têm despertado um interesse generalizado ( Lim et al., 2009 ; Tseng et al., 2014 ; Narayan Patel et al., 2018 ), e as enzimas imobilizadas demonstraram uma melhor termoestabilidade e estabilidade de armazenamento.
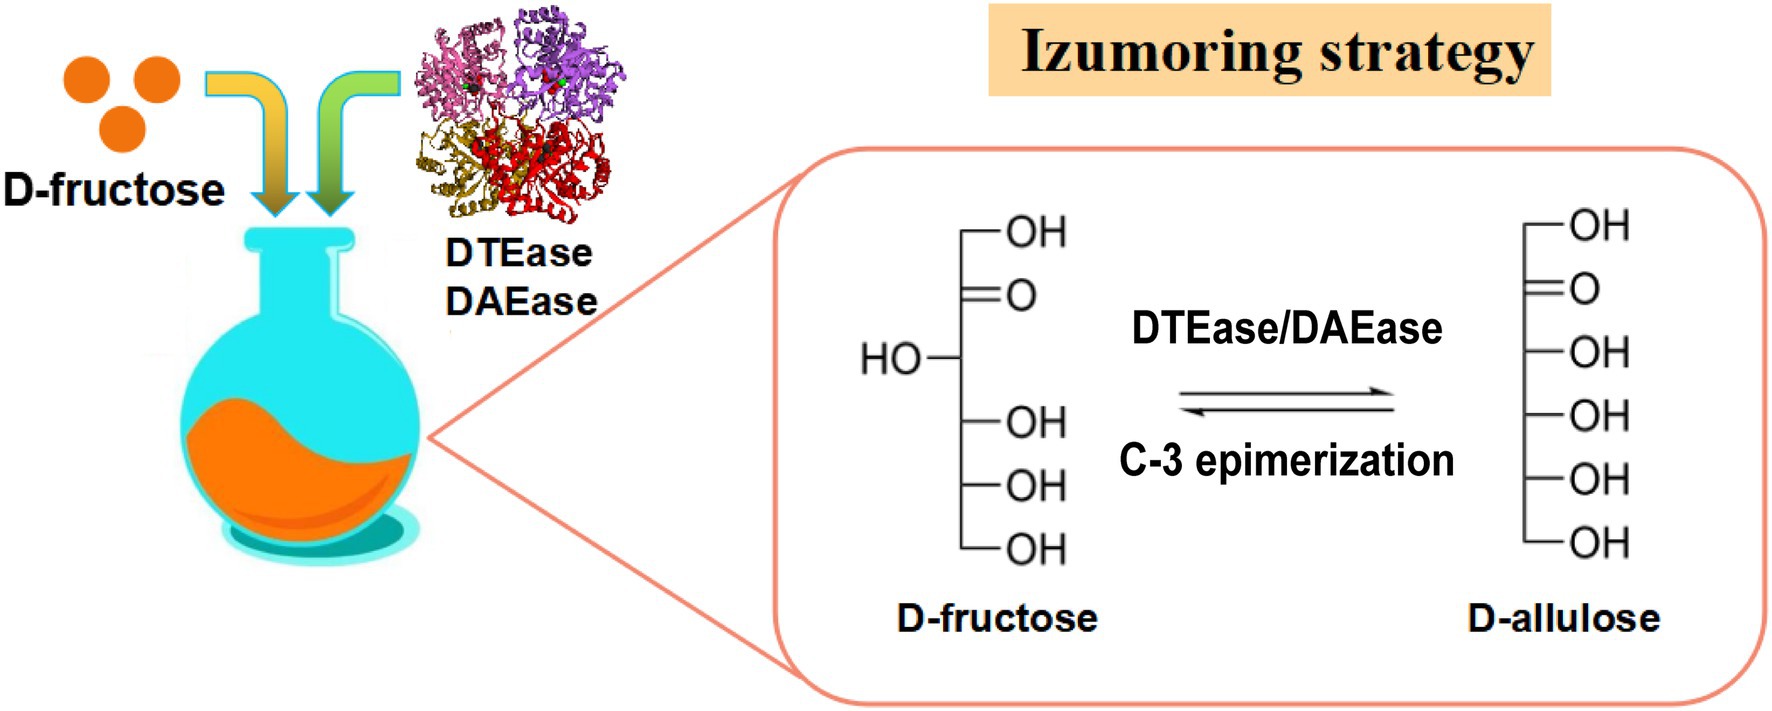
Figura 2 . Estratégia Izumoring para a produção de D-alulose. DTEase, D-tagatose 3-epimerase; DAEase, D-alulose 3-epimerase.
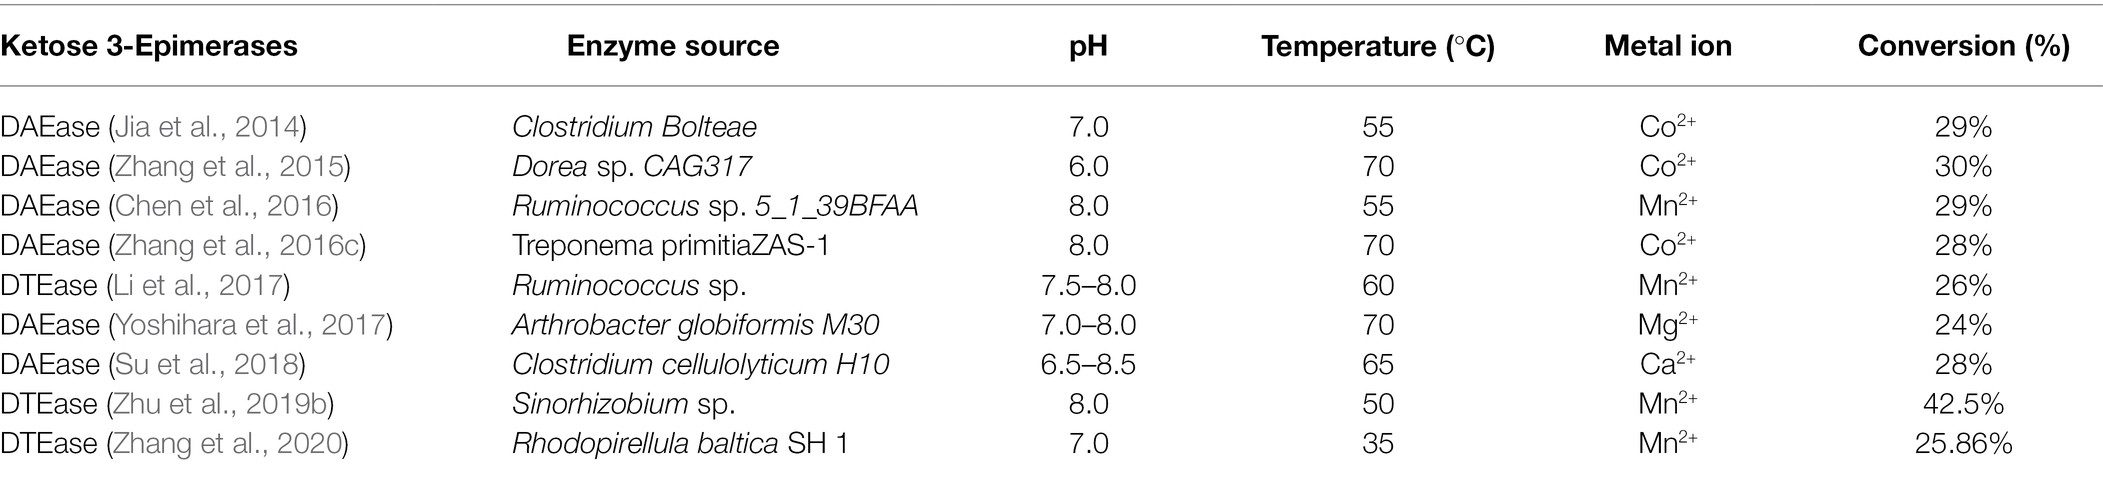
Tabela 1 . Propriedades das enzimas da família DTEase.
Biossíntese de D-alulose a partir de materiais de baixo custo com base em enzimas DTEase
Atualmente, os subprodutos agrícolas, tais como resíduos de frutas e vegetais, causam problemas agrícolas significativos ( Lai et al., 2017 ).
Os resíduos agrícolas são geralmente enterrados em aterros sanitários ou queimados ( Park e Yoon, 2015 ). Contudo, estes resíduos contêm grandes quantidades de fibra alimentar e açúcares, incluindo sacarose, D-glucose e D-frutose.
A conversão de fibras alimentares e açúcares em produtos de elevado valor acrescentado representa um passo significativo para aliviar os problemas agrícolas.
A catálise em cascata é considerada uma abordagem muito atrativa em comparação com a síntese tradicional passo a passo.
Esta estratégia é frequentemente aplicada para a produção de açúcares raros a partir de materiais de baixo custo, tais como sacarose, alcachofra de Jerusalém, inulina e resíduos de frutas/vegetais ( Figura 3 ; Wagner et al., 2015 ; Song et al., 2016 , 2017 ; Zhang et al., 2017 ; Yang et al., 2019 ; Li et al., 2020a ).
A D-alulose foi sintetizada de forma eficiente a partir de sacarose utilizando invertase recombinante purificada, D-xilose isomerase e DTEase.
Além disso, a integração prática da solução em cascata e da cromatografia de leito móvel simulado (SMB) foi aplicada para produzir D-alulose pura (99,9%) com um rendimento muito elevado (89%; Wagner et al., 2015 ).
A D-alulose também pode ser sintetizada através de uma reação em cascata de duas etapas que envolve a hidrólise da alcachofra de Jerusalém ( Song et al., 2017 ), resíduos vegetais crucíferos ( Song et al., 2016 ) e inulina ( Li et al., 2020a ).
Para reduzir os custos de produção e evitar a purificação enzimática, Zhu e os seus colaboradores desenvolveram um sistema de reação de um passo e duas enzimas, com uma nova exo-inulinase proveniente de Bacillus velezensis (BvInu) e uma DAEase de Ruminococcus sp. para a produção de D-alulose a partir de alcachofra-topinambo.
A BvInu e a DAEase foram expressas em Bacillus subtilis e secretadas para o sobrenadante sem purificação. Com a proporção ótima de BvInu/RDAE (80:40 U/g de inulina) a 50°C durante 2 horas, obtiveram-se 10,3 g/l de D-alulose a partir de 50 g/l de inulina ( Zhu et al., 2020 ).
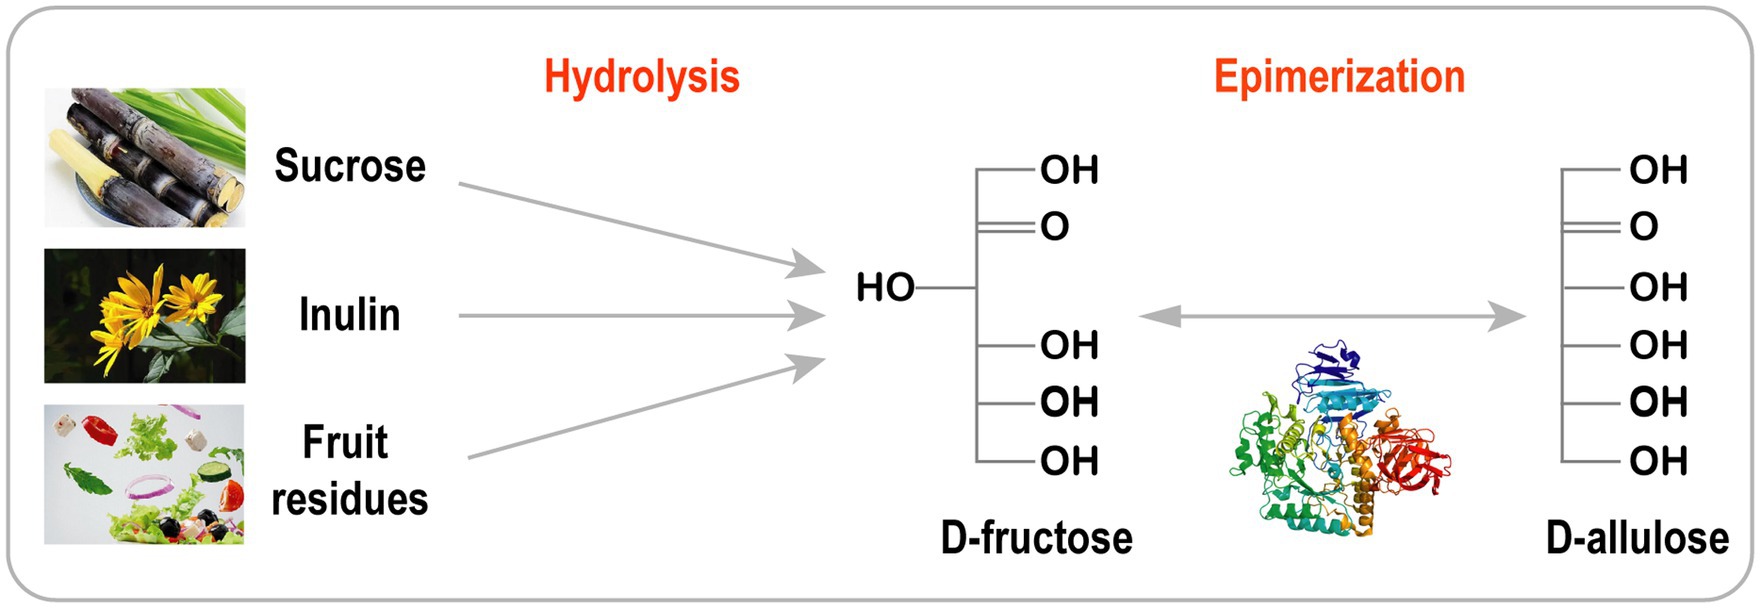
Figura 3. Biossíntese de D-alulose a partir de matéria-prima barata.
Biossíntese de D-alulose com o auxílio de microrganismos
Comparativamente às reações em cascata de um único passo, as reações com biocatalisadores de células completas possuem diversas vantagens ( Figura 4 ): (1) As células que contêm as enzimas são facilmente produzidas sem a necessidade de uma purificação laboriosa das enzimas; (2) o contexto celular proporciona um microambiente adequado e regeneração de cofatores (ATP, NAD+/NADH); (3) as paredes celulares e as membranas protegem as enzimas de condições de reação adversas; e (4) a colocalização intracelular de múltiplas enzimas aumenta a concentração local das enzimas e reduz a difusão de intermediários nas reações em cascata ( Wu e Li, 2018 ).
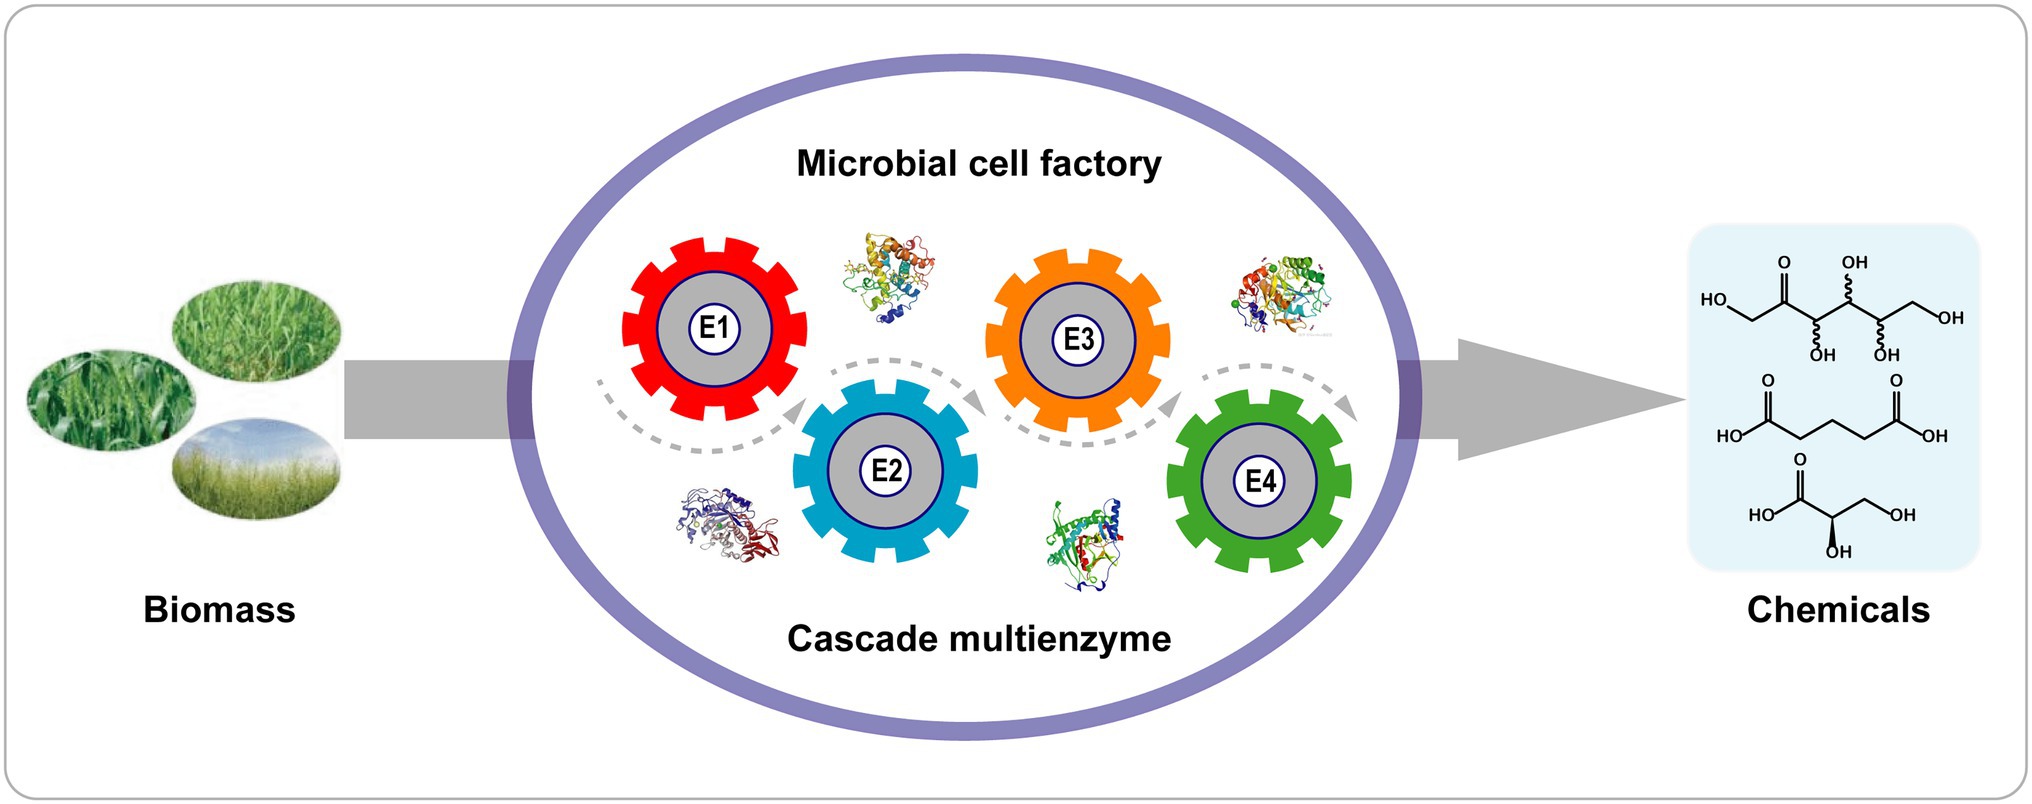
Figura 4. Biotransformação em cascata com uma única célula recombinante. E1–E4 designam as enzimas 1 a 4.
A Escherichia coli modificada é um dos organismos mais utilizados para a produção de D-alulose devido ao seu histórico limpo, rápida taxa de crescimento, cultura simples e genética estável.
A DAEase e a D-glicose isomerase (GIase) de Acidothermus cellulolyticus foram coexpressas para produzir D-alulose a partir de D-glicose ( Zhang et al., 2017 ).
Da mesma forma, a DAEase e a xilose isomerase (XI) foram coexpressas para produzir D-alulose utilizando D-glicose como substrato ( Chen et al., 2017 ).
Nas duas abordagens acima, a D-glicose foi primeiro convertida em D-frutose usando a GIase ou a XI, e então a D-frutose foi imediatamente isomerizada em D-alulose usando a DAEase.
Embora se tenha alcançado uma boa produtividade através da manipulação de E. coli, o que não era aplicável na indústria alimentar devido às endotoxinas e à sua classificação não adequada para uso alimentar, a DAEase foi, até à data, expressa com sucesso em várias estirpes seguras para o consumo alimentar, tais como B. subtilis, Saccharomyces cerevisiae e Corynebacterium glutamicum ( Li et al., 2015b; He et al., 2016). He et al. (2016) exibiram a DTEase de Clostridium scindens ATCC 35704 na superfície de esporos de B. subtilis para produzir D-alulose a partir de D-frutose. A DAEase foi ligada ao C-terminal da CotZ e demonstrou uma elevada termoestabilidade. Após cinco ciclos de utilização, manteve-se 60% da atividade ( He et al., 2016 ).
No nosso estudo anterior, desenvolvemos uma técnica de exibição na superfície de esporos para a produção de D-alulose a partir de D-glicose. Nesta abordagem, a enzima-chave XI de Thermus thermophilus e a DAEase de A. tumefaciens foram imobilizadas por métodos biológicos e químicos, respetivamente, em esporos de S. cerevisiae ( Li et al., 2015b ).
Além disso, várias DAEases e invertases (INV) foram sobre-expressas em C. glutamicum, e as células modificadas imobilizadas com alginato foram submetidas a uma reação em cascata num sistema de reação de um passo e duas etapas para produzir D-alulose a partir de melaço de cana. Após 8 horas de reação, obtiveram-se 61,2 g/L de D-alulose, o que representou 17,4% do total de monossacarídeos ( Yang et al., 2019 ).
Atualmente, a estratégia Izumoring é o principal método de produção industrial de D-alulose, alcançado através do uso de SMB. Além disso, a D-frutose separada pode ser reutilizada para produzir D-alulose. Em suma, a estratégia Izumoring é a forma mais simples e comum de biossíntese de D-alulose. Contudo, as limitações do equilíbrio termodinâmico constituem um estrangulamento que restringe a ampla aplicação da D-alulose na indústria alimentar.
Produção de D-alulose com o auxílio de aldolases dependentes de DHAP
Como mencionado anteriormente, várias abordagens baseadas na estratégia Izumoring foram desenvolvidas para a produção de D-alulose a partir de matérias-primas baratas, tais como alcachofra-topinambo, inulina e resíduos agrícolas.
No entanto, a reação catalisada pela enzima-chave DAEase é reversível e a taxa de conversão é baixa, o que leva ao elevado preço da D-alulose obtida. Além disso, a maioria das estirpes utilizadas na síntese de D-alulose não são microrganismos GRAS.
Por conseguinte, é extremamente importante criar uma plataforma rentável e segura para a produção em massa de D-alulose.
As adições aldólicas estereosseletivas catalisadas por aldolases tornaram-se ferramentas essenciais na síntese assimétrica de CC ( Iturrate et al., 2010 ).
Entre os membros da família das aldolases, as aldolases dependentes de DHAP são as mais difundidas na síntese de numerosos compostos de hidratos de carbono que são difíceis de sintetizar por métodos químicos tradicionais ( Bosshart et al., 2013 ).
Existem quatro tipos de aldolases dependentes de DHAP: L-ramnulose-1-fosfato aldolase (RhaD), L-fuculose-1-fosfato aldolase (FucA), D-frutose-1,6-bisfosfato aldolase (FruA) e D-tagatose-1,6-bisfosfato aldolase (TagA).
As reações aldólicas estereosseletivas destas quatro aldolases complementam-se mutuamente. Teoricamente, é possível produzir um conjunto de quatro cetoses se utilizarmos DHAP como dador e o mesmo aldeído como recetor ( Gustavo, 2000 ).
Portanto, as aldolases dependentes de DHAP são excelentes para a síntese de vários açúcares raros (incluindo D-alulose, D-sorbose, D-tagatose e L-frutose) devido à sua estereosseletividade única ( Figura 5; Brovetto et al., 2011; Dai et al., 2021
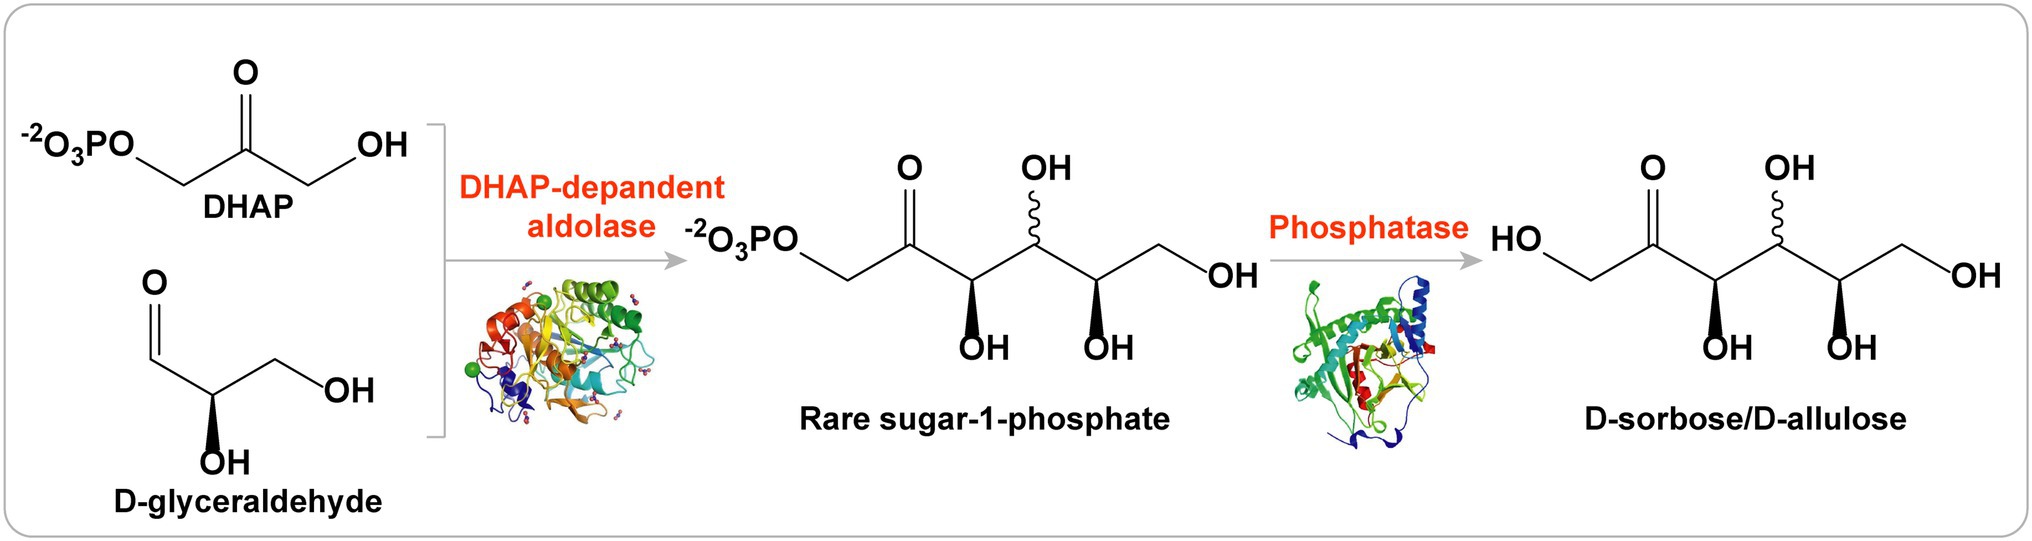
Figura 5. Estratégia das aldolases dependentes de DHAP para a produção de D-alulose.
Biossíntese de D-alulose com RhaD aldolase e aceitador de D-gliceraldeído
Uma das principais desvantagens das estratégias de aldolases dependentes de DHAP é que o substrato dador, DHAP, é muito caro e instável para uma síntese em larga escala ( Schümperli et al., 2007 ).
No entanto, existem várias formas de sintetizar DHAP através de estratégias enzimáticas. Por exemplo, a DHAP pode ser produzida a partir de di-hidroxiacetona (DHA), glicerol ou glicerol-3-fosfato, ou através de vias metabólicas a partir de uma matéria-prima barata, como a glicose ou o glicerol ( Figura 6; Sánchez-Moreno et al., 2004; Li et al., 2012, 2015a; Wei et al., 2015; Yang et al., 2015, 2016 ).
Na E. coli artificialmente modificada, a reação aldólica catalisada por RhaD para a síntese de açúcares raros (D-alulose e D-sorbose) utilizou glicose como fonte de carbono, sendo adicionado continuamente D-gliceraldeído ao meio de cultura. Após a otimização das condições de fermentação, o rendimento isolado de D-alulose e D-sorbose foi de 0,21 mol/mol de D-gliceraldeído ( Wei et al., 2015 ). A D-alulose e a D-sorbose foram produzidas numa estirpe C. glutamicum GRAS com os materiais de base glicose e D-gliceraldeído. Verificou-se que as estirpes de C. glutamicum recombinantes que transportam RhaD e frutose-1-fosfatase (YqaB) acumulam 19,5 g/l de D-sorbose e 13,4 g/l de D-alulose em fermentação descontínua alimentada ( Yang et al., 2015 ). Além disso, produziram-se D-alulose e D-sorbose numa estirpe de E. coli recombinante que sobre-expressa a aldolase RhaD e YqaB a partir de glicerol por fermentação. Após 15 horas de fermentação, determinou-se a concentração de D-sorbose (1,6 g/l) e de D-alulose (1,23 g/l) no sobrenadante ( Li et al., 2015a ). Recentemente, o nosso grupo construiu um sistema eficiente para a síntese em cascata de células completas de D-sorbose e D-alulose a partir de glicerol e D-gliceraldeído, o que resultou em 15,3 g/l de D-sorbose e 6,4 g/l de D-alulose durante a biotransformação descontínua ( Chen et al., 2020a ).
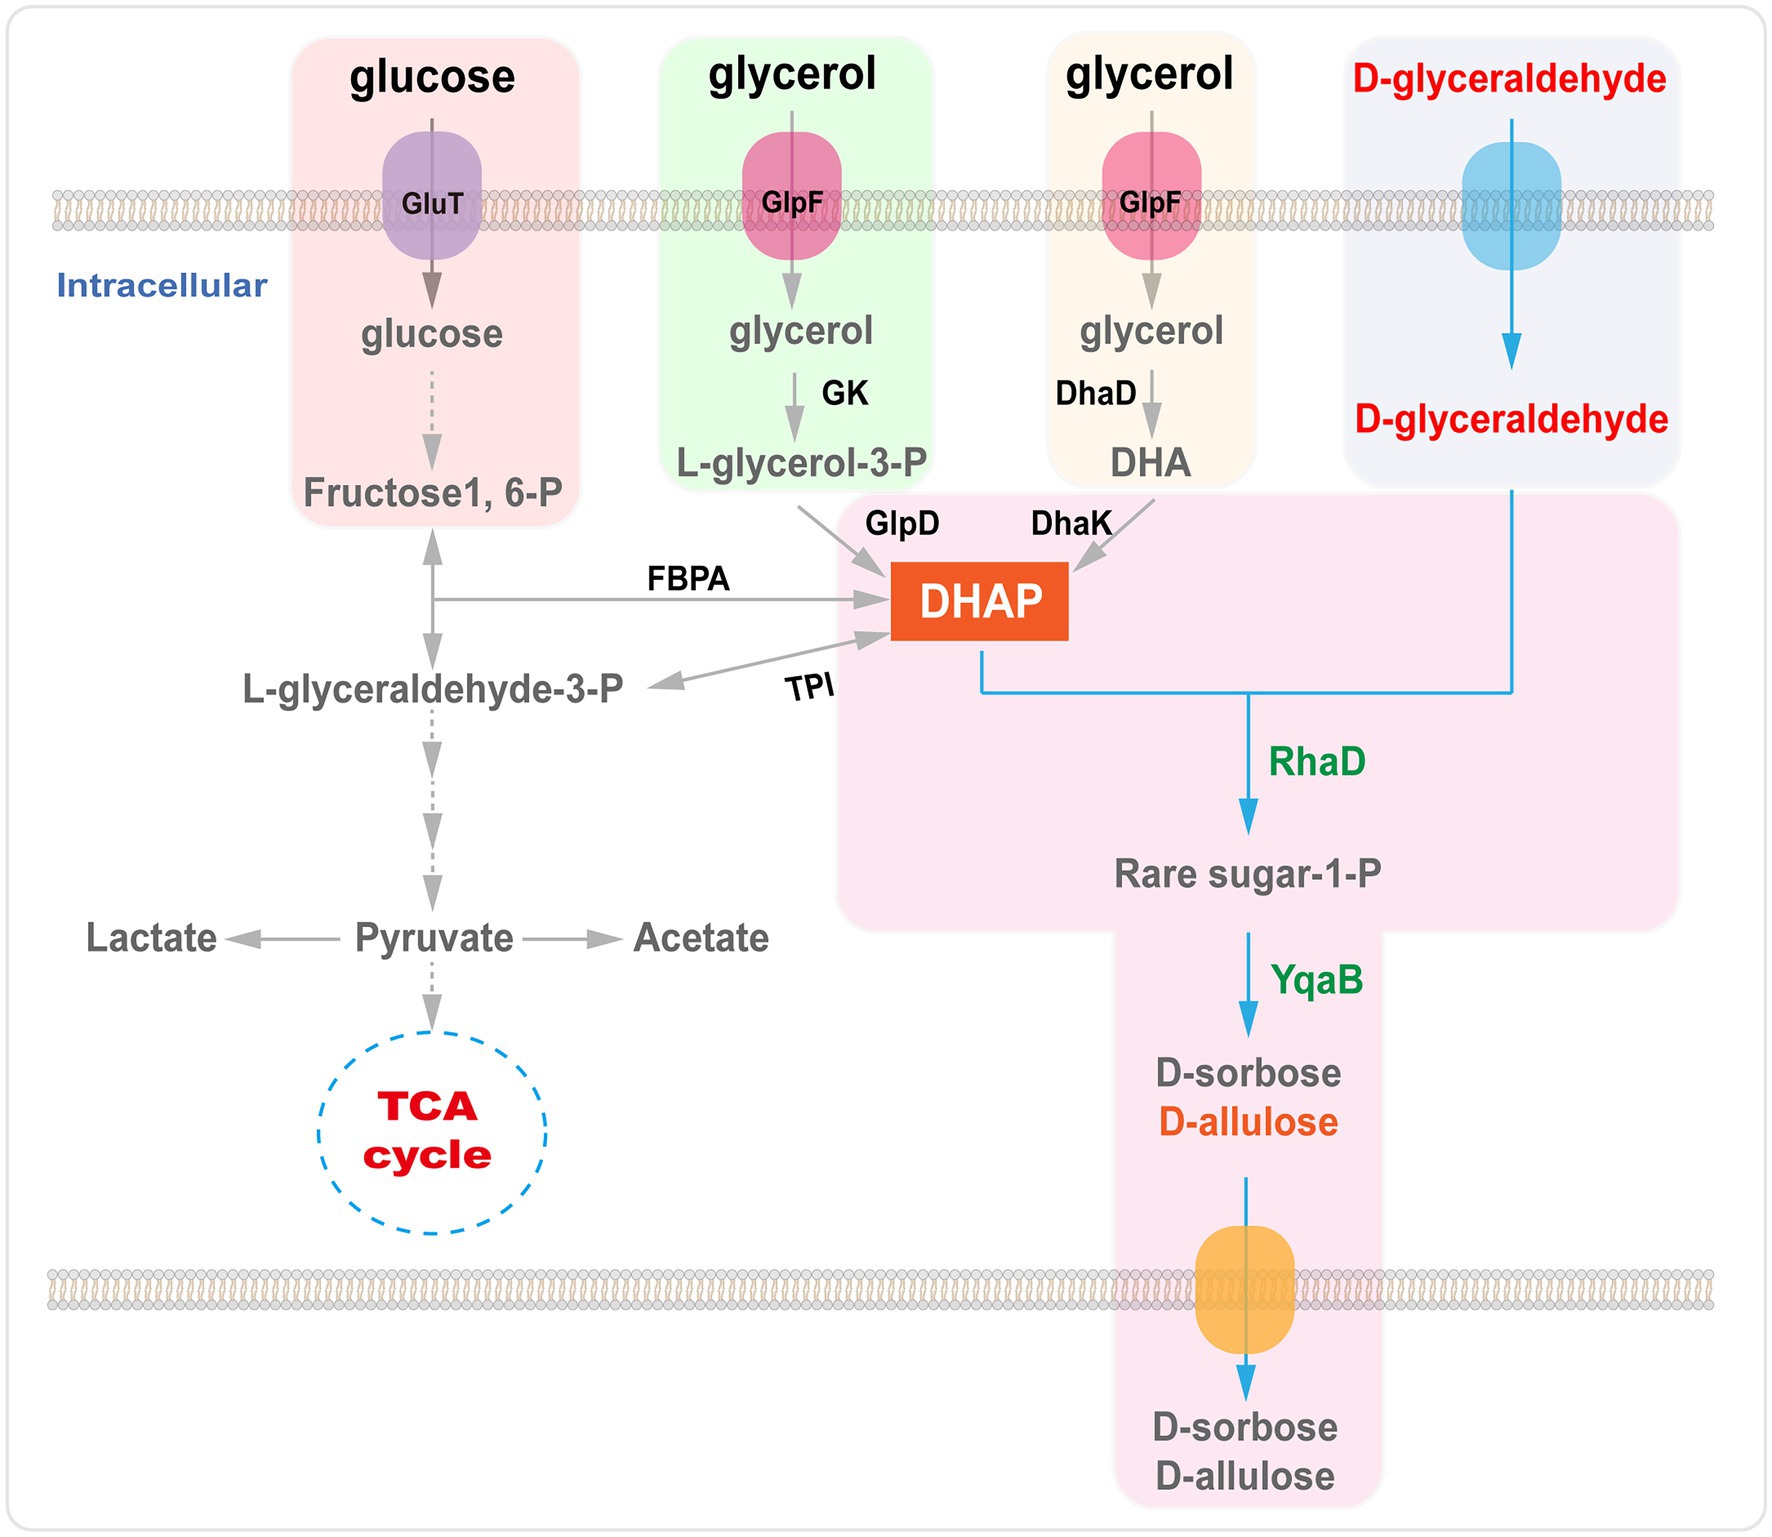
Figura 6. Biossíntese de D-alulose com aldolase RhaD a partir de glicerol ou glucose. GlpF, transportador de glicerol; GK, glicerol quinase; GlpD, glicerol-3-fosfato desidrogenase; DhaD, glicerol desidrogenase; DhaK, di-hidroxiacetona quinases; FBPA, frutose-1,6-difosfato aldolase; TPI, triose-fosfato isomerase; RhaD, L-ramnulose-1-fosfato aldolase; YqaB, frutose-1-fosfatase.
Biossíntese de D-alulose a partir de glicerol como único substrato
Uma plataforma de microrganismos baseada na aldolase RhaD para a síntese de D-alulose seria promissora para uma produção em larga escala. O principal desafio é o elevado custo do substrato dador DHAP e da molécula aceitadora D-gliceraldeído. Felizmente, o problema da acumulação de DHAP foi resolvido através da utilização de glicerol, um subproduto industrial barato, como fonte de carbono "verde". Assim, a questão seguinte é a identificação de uma nova enzima que converta o glicerol de baixo valor em D-gliceraldeído. Existe a necessidade de uma glicerol desidrogenase ou de uma glicerol oxidase que consiga catalisar eficazmente a conversão de glicerol em D-gliceraldeído.
Para resolver este problema, o nosso grupo criou uma plataforma para a síntese em cascata de células inteiras de D-sorbose e D-alulose, utilizando glicerol como único substrato. Neste sistema ( Figura 7 ), o substrato dador, DHAP, é gerado através da via de assimilação do glicerol, e o DHAP endógeno é produzido através da sobreexpressão da glicerol quinase (GK) e da glicerol-fosfato oxidase (GPO). O aceitador D-gliceraldeído é produzido diretamente a partir do glicerol pela alditol oxidase de Streptomyces coelicolor A3 (AldO S.coe ). Em seguida, a RhaD catalisa a reação de aldol entre a DHAP e o D-gliceraldeído, gerando o respetivo cetose-1-fosfato. Finalmente, a D-sorbose e a D-alulose são obtidas através da remoção do grupo fosfato com a fosfatase YqaB. Com este sistema, os rendimentos de produção de D-sorbose e D-alulose aumentaram cerca de 1,7 e 1,2 vezes, respetivamente, após a sobreexpressão de uma peroxidase (Prx02 ou KatE), a fim de eliminar os efeitos nocivos do H₂O₂ . Obteve-se um total de 7,9 g/l de D-sorbose e D-alulose a partir de glicerol, com uma taxa de conversão global de 17,7% ( Chen et al., 2020b ).
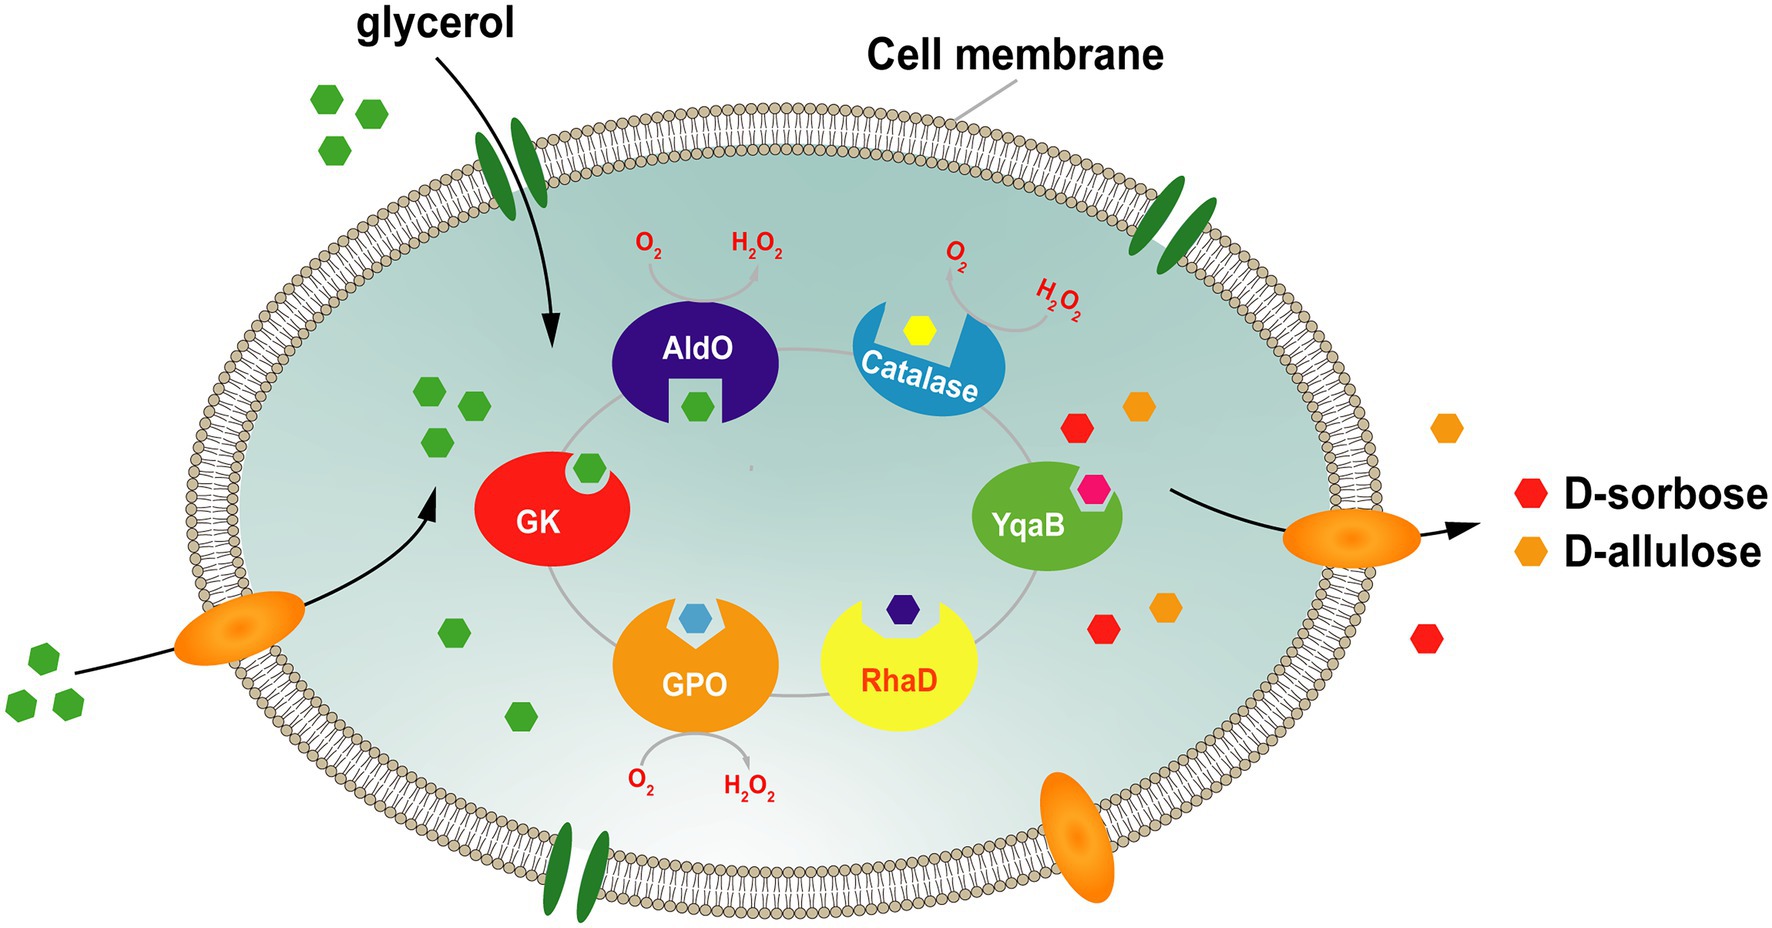
Figura 7 . Estratégia para a síntese em células inteiras de D-sorbose e D-alulose a partir de glicerol. GK, glicerol quinase; GPO, glicerol oxidase; AldO, alditol oxidase; RhaD, L-ramnulose-1-fosfato aldolase; YqaB, frutose-1-fosfatase.
O nosso grupo construiu também um sistema multienzimático de uma única etapa para a síntese de D-sorbose e D-alulose a partir de glicerol como única fonte de carbono ( Figura 8 ). Aqui, introduzimos a fosfatase ácida PhoN de Shigella flexneri (PhoN-Sf) no sistema, em substituição da GK e YqaB, que catalisou a reação de fosforilação do glicerol no primeiro passo e ajudou a reciclar o fosfato do cetose-1-fosfato no último passo, fornecendo moléculas de açúcar raro livres. Introduzimos a AldO S.coe na cascata multienzimática acima referida para sintetizar D-sorbose e D-alulose exclusivamente a partir de glicerol facilmente acessível. Finalmente, obtivemos 14,8 g/L de D-sorbose e D-alulose a partir de glicerol ( Li et al., 2020b ). A estratégia acima referida representa uma abordagem muito útil e de baixo custo para a produção de diversos outros açúcares raros. Numa palavra, a biossíntese de D-alulose através da fermentação baseada em aldolases dependentes de DHAP é muito promissora. Seria mais rentável construir uma fábrica celular baseada numa estratégia de aldolase dependente de DHAP para a síntese de D-alulose.
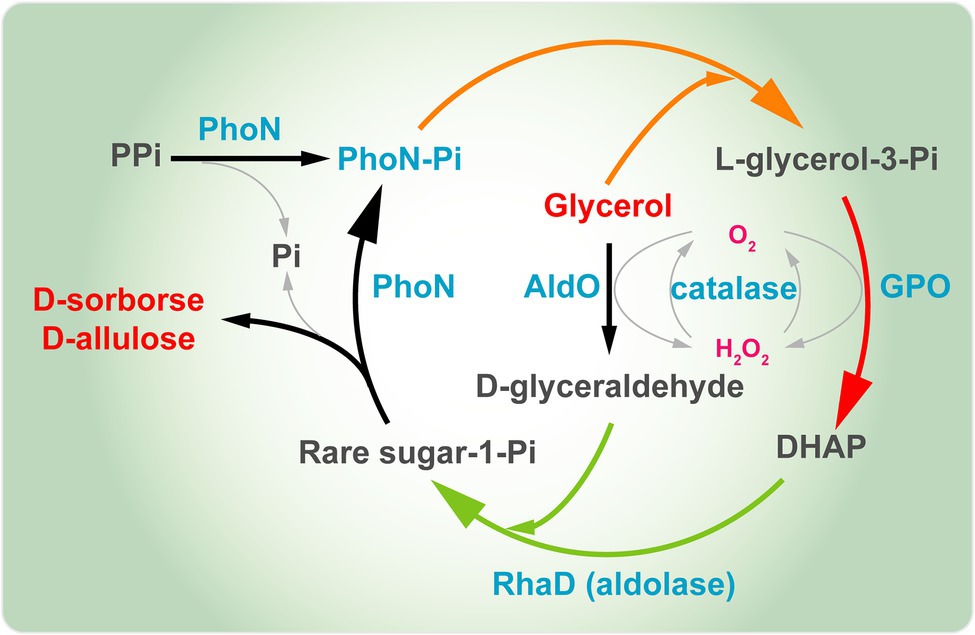
Figura 8 . Síntese multienzimática de D-sorbose e D-alulose a partir de glicerol. PhoN, fosfatase ácida; GPO, glicerol oxidase; AldO, alditol oxidase; RhaD, L-ramnulose-1-fosfato aldolase; DHAP, di-hidroxiacetona fosfato.
Produção de D-alulose orientada pela termodinâmica com base na estratégia de fosforilação-desfosforilação
Na realidade, as estratégias acima referidas continuam a não satisfazer a procura da indústria alimentar por D-alulose. Por conseguinte, é interessante desenvolver uma nova estratégia para a produção de D-alulose que envolva uma biofabricação verde, altamente eficiente e de baixo custo. Recentemente, You e os seus colaboradores criaram um biossistema enzimático sintético in vitro para produzir D-alulose a partir de amido barato, com base numa "estratégia orientada pela termodinâmica" ( Figura 9 ). Este biossistema in vitro envolveu cinco enzimas principais, sendo as reações as seguintes: (1) a maltodextrina (um derivado do amido) foi fosforilada para produzir glucose-1-fosfato (G1P) através de uma α-glucano fosforilase (αGP), com fosfato como cosubstrato. (2) A G1P foi convertida em glucose-6-fosfato (G6P), catalisada pela fosfoglucomutase (PGM). (3) A G6P foi convertida em frutose-6-fosfato (F6P), catalisada pela fosfoglucose isomerase (PGI). (4) A epimerização da F6P resultou na produção de D-alulose-6-fosfato (A6P), catalisada pela D-alulose-6-fosfato 3-epimerase (A6PE). (5) A desfosforilação da A6P resultou na produção de D-alulose e fosfato, catalisada pela D-alulose-6-fosfato fosfatase (A6PP). Além disso, as outras quatro enzimas auxiliares [isoamilase (IA), 4-α-glucanotransferase (4GT), polifosfato-glucocinase (PPGK) e glucose isomerase (GI)] foram adicionadas ao sistema de reação em diferentes momentos para atingir a utilização total da maltodextrina para a produção de D-alulose. Neste biossistema, a energia de Gibbs da desfosforilação da A6P em D-alulose é de -15,5 kJ/mol, o que é irreversível, indicando que o passo de desfosforilação necessário para a produção de D-alulose é termodinamicamente favorável e unidirecional, de modo a impulsionar a reação global para a conclusão. Após a otimização das condições de reação, os rendimentos de produção de D-alulose a partir de 10 e 50 g/l de amido atingiram 88,2% e 79,2%, respetivamente ( Li et al., 2021 ). De um modo geral, esta estratégia orientada pela termodinâmica oferece uma alternativa promissora para a produção económica de D-alulose. Como o sistema contém várias enzimas e os passos de purificação enzimática são complexos, a estratégia acima referida continua a não conseguir satisfazer as necessidades da industrialização.
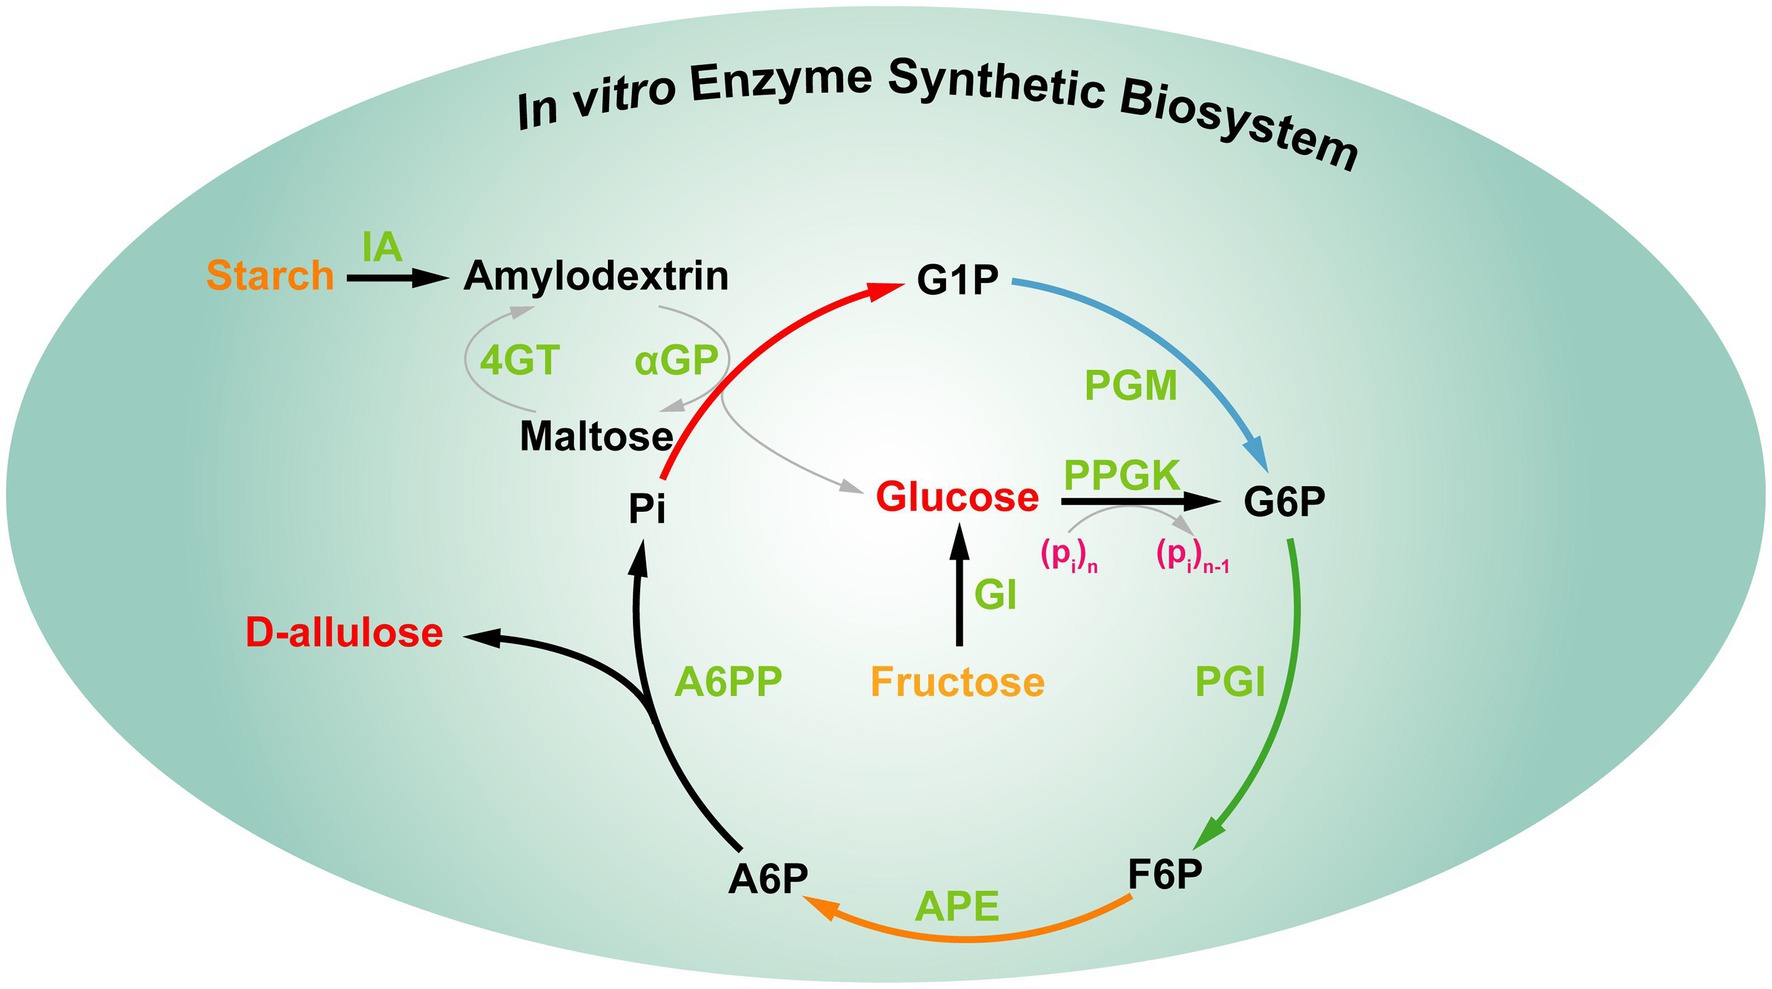
Figura 9 . Síntese multienzimática in vitro de D-alulose a partir de amido. IA, isoamilase; 4GT, 4-α-glucanotransferase; αGP, α-glucano fosforilase; PGM, fosfoglucomutase; PPGK, polifosfato-glucocinase; PGI, fosfoglucose isomerase; GI, glucose isomerase; APE, D-alulose-6-fosfato 3-epimerase; A6PP, D-alulose-6-fosfato fosfatase; G1P, glucose-1-fosfato; G6P, glucose-6-fosfato; F6P, frutose-6-fosfato; A6P, D-alulose-6-fosfato.
Resumo e perspetivas futuras
O método mais comum de produção de D-alulose baseia-se na estratégia Izumoring, que é limitada pelo equilíbrio termodinâmico, resultando numa baixa taxa de conversão e custos sintéticos relativamente elevados.
Portanto, é necessário descobrir enzimas da família DTEase novas e robustas. Além disso, a estratégia de evolução dirigida (Zhang et al., 2016a; Zhu et al., 2019a) ou a imobilização de enzimas (Ran et al., 2019; Wong et al., 2020)
A melhoria do desempenho catalítico da DTEase será muito útil. Para a estratégia de aldolase dependente de DHAP, a D-alulose e a D-sorbose são geradas simultaneamente com RhaD, utilizando o aceitador D-gliceraldeído. Para melhorar a estereosseletividade das aldolases, aplicam-se várias técnicas e métodos avançados, incluindo a evolução dirigida (d’Oelsnitz and Ellington, 2018; Shepelin et al., 2018; Currin et al., 2021), técnicas de rastreio de alto rendimento (Ung et al., 2018; Rienzo et al., 2021), e engenharia racional (Damborsky and Brezovsky, 2014; Windle et al., 2014; Kim et al., 2020).
É evidente que a estratégia orientada pela termodinâmica é um método promissor para a produção de D-alulose. Uma das direções futuras seria a construção de uma fábrica de células microbianas que aplicasse essa abordagem. Várias ferramentas metabólicas, como o CRISPR/Cas9, poderiam contribuir para a produção industrial de D-alulose (Wu et al., 2019; Nishida and Kondo, 2021), a auto-montagem (Liu et al., 2019; Lange and Polizzi, 2021), e o controlo dinâmico (Hartline et al., 2021; Zhu et al., 2021).
Espera-se que a D-alulose se torne, num futuro próximo, acessível para os consumidores comuns.
Contribuições dos autores
ZC realizou o tratamento dos dados e a redação – preparação do rascunho original. X-DG participou na visualização, investigação e supervisão. ZL realizou a redação – revisão e edição. Todos os autores contribuíram para o artigo e aprovaram a versão apresentada.
Financiamento
Este trabalho foi financiado pela Fundação Nacional de Ciências Naturais da China (números: 32171475, 31971216), pela Fundação de Ciência Pós-doutoral da China (número: 2021M691285), pelo Grande Projeto de Inovação Científica e Tecnológica da Província de Shandong (número: 2019JZZY011006), pela Fundação de Ciências Naturais da Província de Jiangsu (número: BK20210465) e pelo Programa de Introdução de Talentos Disciplinares em Universidades (número: 111-2-06).
Conflito de interesses
Os autores declaram que a investigação foi realizada na ausência de quaisquer relações comerciais ou financeiras que pudessem ser interpretadas como um potencial conflito de interesses.
Nota do editor
Todas as afirmações expressas neste artigo são exclusivamente dos autores e não refletem necessariamente as das suas organizações afiliadas, do editor, dos editores ou dos revisores. Qualquer produto que possa ser avaliado neste artigo, ou afirmação que possa ser feita pelo seu fabricante, não é garantido nem endossado pelo editor.
Agradecimentos
Agradecemos a Zhou Xiaoman (Universidade de Jiangnan) pelo desenho.
Referências
Basu, A., Basu, R., Shah, P., Vella, A., Johnson, C. M., Jensen, M., et al. (2001). A diabetes mellitus tipo 2 prejudica a captação esplâncnica de glucose, mas não altera a absorção de glucose intestinal durante a alimentação enteral de glucose: provas adicionais de um defeito na atividade da glicoquinase hepática. Diabetes 50, 1351–1362. doi: 10.2337/diabetes.50.6.1351
Bilal, M., Iqbal, H. M. N., Hu, H., Wang, W., and Zhang, X. (2018). Metabolic engineering pathways for rare sugars biosynthesis, physiological functionalities, and applications-a review. Crit. Rev. Food Sci. Nutr. 58, 2768–2778. doi: 10.1080/10408398.2017.1341385
Bosshart, A., Panke, S., and Bechtold, M. (2013). Systematic optimization of interface interactions increases the thermostability of a multimeric enzyme. Angew. Chem. Int. Ed. Engl. 52, 9673–9676. doi: 10.1002/anie.201304141
Brovetto, M., Gamenara, D., Méndez, P. S., and Seoane, G. A. (2011). C-C bond-forming lyases in organic synthesis. Chem. Rev. 111, 4346–4403. doi: 10.1021/cr100299p
Castro-Muñoz, R., Correa-Delgado, M., Córdova-Almeida, R., Lara-Nava, D., Chávez-Muñoz, M., Velásquez-Chávez, V. F., et al. (2022). Natural sweeteners: sources, extraction and current uses in foods and food industries. Food Chem. 370:130991. doi: 10.1016/j.foodchem.2021.130991
Chen, J., Huang, W., Zhang, T., Lu, M., and Jiang, B. (2019). Anti-obesity potential of rare sugar D-psicose by regulating lipid metabolism in rats. Food Funct. 10, 2417–2425. doi: 10.1039/c8fo01089g
Chen, Z., Li, Z., Li, F., Wang, N., and Gao, X.-D. (2020b). Characterization of alditol oxidase from Streptomyces coelicolor and its application in the production of rare sugars. Bioorg. Med. Chem. 28:115464. doi: 10.1016/j.bmc.2020.115464
Chen, Z., Li, Z., Li, F., Wang, M., Wang, N., and Gao, X.-D. (2020a). Cascade synthesis of rare ketoses by whole cells based on L-rhamnulose-1-phosphate aldolase. Enzym. Microb. Technol. 133:109456. doi: 10.1016/j.enzmictec.2019.109456
Chen, X., Wang, W., Xu, J., Yuan, Z., Yuan, T., Zhang, Y., et al. (2017). Production of D-psicose from D-glucose by co-expression of D-psicose 3-epimerase and xylose isomerase. Enzym. Microb. Technol. 105, 18–23. doi: 10.1016/j.enzmictec.2017.06.003
Chen, J., Zhu, Y., Fu, G., Song, Y., Jin, Z., Sun, Y., et al. (2016). High-level intra- and extra-cellular production of D-psicose 3-epimerase via a modified xylose-inducible expression system in Bacillus subtilis. J. Ind. Microbiol. Biotechnol. 43, 1577–1591. doi: 10.1007/s10295-016-1819-6
Chung, Y. M., Hyun Lee, J., Youl Kim, D., Hwang, S. H., Hong, Y. H., Kim, S. B., et al. (2012). Dietary D-psicose reduced visceral fat mass in high-fat diet-induced obese rats. J. Food Sci. 77, H53–H58. doi: 10.1111/j.1750-3841.2011.02571.x
Currin, A., Parker, S., Robinson, C. J., Takano, E., Scrutton, N. S., and Breitling, R. (2021). The evolving art of creating genetic diversity: From directed evolution to synthetic biology. Biotechnol. Adv. 50:107762. doi: 10.1016/j.biotechadv.2021.107762
Dai, Y., Zhang, J., Jiang, B., Zhang, T., and Chen, J. (2021). New strategy for rare sugars biosynthesis: Aldol reactions using dihydroxyacetone phosphate (DHAP)-dependent aldolases. Food Biosci. 44:101377. doi: 10.1016/j.fbio.2021.101377
Damborsky, J., and Brezovsky, J. (2014). Computational tools for designing and engineering enzymes. Curr. Opin. Chem. Biol. 19, 8–16. doi: 10.1016/j.cbpa.2013.12.003
d’Oelsnitz, S., and Ellington, A. (2018). Continuous directed evolution for strain and protein engineering. Curr. Opin. Biotechnol. 53, 158–163. doi: 10.1016/j.copbio.2017.12.020
Doner, L. W. (1979). Isomerization of D-fructose by base: liquid-chromatographic evaluation and the isolation of D-psicose. Carbohydr. Res. 70, 209–216. doi: 10.1016/S0008-6215(00)87101-3
Granström, T. B., Takata, G., Tokuda, M., and Izumori, K. (2004). Izumoring: A novel and complete strategy for bioproduction of rare sugars. J. Biosci. Bioeng. 97, 89–94. doi: 10.1016/S1389-1723(04)70173-5
Grassi, B., Onetto, M. T., Zapata, Y., Jofré, P., and Echeverría, G. (2021). Lower versus standard sucrose dose for treating hypoglycemia in patients with type 1 diabetes mellitus in therapy with predictive low glucose suspend (PLGS) augmented insulin pumps: a randomized crossover trial in Santiago, Chile. Diabetes Metab. Syndr. Clin. Res. Rev. 15, 695–701. doi: 10.1016/j.dsx.2021.03.017
Guerrero-Wyss, M., Durán Agüero, S., e Angarita Dávila, L. (2018). D-Tagatose is a promising sweetener to control glycaemia: A new functional food. Biomed. Res. Int. 2018:8718053. doi: 10.1155/2018/8718053
Gustavo, S. (2000). Enzymatic C-C bond-forming reactions in organic synthesis. Curr. Org. Chem. 4, 283–304. doi: 10.2174/1385272003376283
Han, Y., Han, H. J., Kim, A. H., Choi, J. Y., Cho, S. J., Park, Y. B., et al. (2016). D-Allulose supplementation normalized the body weight and fat-pad mass in diet-induced obese mice via the regulation of lipid metabolism under isocaloric fed condition. Mol. Nutr. Food Res. 60, 1695–1706. doi: 10.1002/mnfr.201500771
Hartline, C. J., Schmitz, A. C., Han, Y., e Zhang, F. (2021). Dynamic control in metabolic engineering: theories, tools, and applications. Metab. Eng. 63, 126–140. doi: 10.1016/j.ymben.2020.08.015
Hayakawa, M., Hira, T., Nakamura, M., Iida, T., Kishimoto, Y., e Hara, H. (2018). Secretion of GLP-1 but not GIP is potently stimulated by luminal D-Allulose (D-Psicose) in rats. Biochem. Biophys. Res. Commun. 496, 898–903. doi: 10.1016/j.bbrc.2018.01.128
Hayashi, N., Iida, T., Yamada, T., Okuma, K., Takehara, I., Yamamoto, T., et al. (2010). Study on the postprandial blood glucose suppression effect of D-psicose in borderline diabetes and the safety of long-term ingestion by normal human subjects. Biosci. Biotechnol. Biochem. 74, 510–519. doi: 10.1271/bbb.90707
He, W., Jiang, B., Mu, W., e Zhang, T. (2016). Production of D-Allulose with D-psicose 3-epimerase expressed and displayed on the surface of Bacillus subtilis spores. J. Agric. Food Chem. 64, 7201–7207. doi: 10.1021/acs.jafc.6b03347
Herling, A. W., Burger, H.-J., Schwab, D., Hemmerle, H., Below, P., e Schubert, G. (1998). Pharmacodynamic profile of a novel inhibitor of the hepatic glucose-6-phosphatase system. Am. J. Phys. 274, G1087–G1093. doi: 10.2337/diabetes.47.5.85
Hoshikawa, H., Kamitori, K., Indo, K., Mori, T., Kamata, M., Takahashi, T., et al. (2018). Combined treatment with D-allose, docetaxel and radiation inhibits the tumor growth in an in vivo model of head and neck cancer. Oncol. Lett. 15, 3422–3428. doi: 10.3892/ol.2018.7787
Hossain, A., Yamaguchi, F., Matsuo, T., Tsukamoto, I., Toyoda, Y., Ogawa, M., et al. (2015). Rare sugar D-allulose: potential role and therapeutic monitoring in maintaining obesity and type 2 diabetes mellitus. Pharmacol. Therapeut. 155, 49–59. doi: 10.1016/j.pharmthera.2015.08.004
Iida, T., Kishimoto, Y., Yoshikawa, Y., Hayashi, N., Okuma, K., Tohi, M., et al. (2008). Acute D-psicose administration decreases the glycemic responses to an oral maltodextrin tolerance test in normal adults. J. Nutr. Sci. Vitaminol. 54, 511–514. doi: 10.3177/jnsv.54.511
Itoh, H., Sato, T., e Izumori, K. (1995). Preparation of D-psicose from D-fructose by immobilized D-tagatose 3-epimerase. J. Ferment. Bioeng. 79, 184–185. doi: 10.1016/0922-338X(95)94091-5
Iturrate, L., Sánchez-Moreno, I., Oroz-Guinea, I., Pérez-Gil, J., e García-Junceda, E. (2010). Preparation and characterization of a bifunctional aldolase/kinase enzyme: a more efficient biocatalyst for C-C bond formation. Chemistry 16, 4018–4030. doi: 10.1002/chem.200903096
Iwasaki, Y., Sendo, M., Dezaki, K., Hira, T., Sato, T., Nakata, M., et al. (2018). GLP-1 release and vagal afferent activation mediate the beneficial metabolic and chronotherapeutic effects of D-allulose. Nat. Commun. 9:113. doi: 10.1038/s41467-017-02488-y
Izumori, K. (2006). Izumoring: a strategy for bioproduction of all hexoses. J. Biotechnol. 124, 717–722. doi: 10.1016/j.jbiotec.2006.04.016
Jia, M., Mu, W., Chu, F., Zhang, X., Jiang, B., Zhou, L. L., et al. (2014). A D-psicose 3-epimerase with neutral pH optimum from Clostridium bolteae for D-psicose production: cloning, expression, purification, and characterization. Appl. Microbiol. Biotechnol. 98, 717–725. doi: 10.1007/s00253-013-4924-8
Kanasaki, A., Jiang, Z., Mizokami, T., Shirouchi, B., Iida, T., Nagata, Y., et al. (2019). D-allulose alters serum cholesterol levels partly via reducing serum pcsk9 levels in hamsters. Atherosclerosis 287:e201. doi: 10.1016/j.atherosclerosis.2019.06.611
Khan, S. A., Verma, P., Ur Rahman, L., e Parasharami, V. A. (2021). “Chapter 13 – Exploration of biotechnological studies in low-calorie sweetener Stevia rebaudiana: present and future prospects,” in Medicinal and Aromatic Plants: Expanding Their Horizons Through Omics. eds. T. Aftab e K. R. Hakeem (Academic Press), 289–324.
Kim, H.-J., Hyun, E.-K., Kim, Y.-S., Lee, Y.-J., e Oh, D.-K. (2006). Characterization of an agrobacterium tumefaciens D-psicose 3-epimerase that converts D-fructose to D-psicose. Appl. Environ. Microbiol. 72, 981–985. doi: 10.1128/AEM.72.2.981-985.2006
Kim, S.-E., Kim, S. J., Kim, H.-J., e Sung, M.-K. (2017). D-Psicose, a sugar substitute, suppresses body fat deposition by altering networks of inflammatory response and lipid metabolism in C57BL/6J-ob/ob mice. J. Funct. Foods 28, 265–274. doi: 10.1016/j.jff.2016.11.029
Kim, T., Stogios, P. J., Khusnutdinova, A. N., Nemr, K., Skarina, T., Flick, R., et al. (2020). Rational engineering of 2-deoxyribose-5-phosphate aldolases for the biosynthesis of (R)-1,3-butanediol. J. Biol. Chem. 295, 597–609. doi: 10.1074/jbc.RA119.011363
Kimura, T., Kanasaki, A., Hayashi, N., Yamada, T., Iida, T., Nagata, Y., et al. (2017). D-Allulose enhances postprandial fat oxidation in healthy humans. Nutrition 43–44, 16–20. doi: 10.1016/j.nut.2017.06.007
Lai, W. T., Khong, N. M. H., Lim, S. S., Hee, Y. Y., Sim, B. I., Lau, K. Y., et al. (2017). A review: modified agricultural by-products for the development and fortification of food products and nutraceuticals. Trends Food Sci. Technol. 59, 148–160. doi: 10.1016/j.tifs.2016.11.014
Lange, O. J., e Polizzi, K. M. (2021). Click it or stick it: covalent and non-covalent methods for protein-self assembly. Curr. Opin. Syst. Biol. 28:100374. doi: 10.1016/j.coisb.2021.100374
Lee, D., Han, Y., Kwon, E. Y., e Choi, M. S. (2020). D-allulose ameliorates metabolic dysfunction in C57BL/KsJ-db/db mice. Molecules 25:3656. doi: 10.3390/molecules25163656
Li, A., Cai, L., Chen, Z., Wang, M., Wang, N., Nakanishi, H., et al. (2017). Recent advances in the synthesis of rare sugars using DHAP-dependent aldolases. Carbohydr. Res. 452, 108–115. doi: 10.1016/j.carres.2017.10.009
Li, Z., Cai, L., Wei, M., e Wang, P. G. (2012). One-pot four-enzyme synthesis of ketoses with fructose 1,6-bisphosphate aldolases from Staphylococcus carnosus and rabbit muscle. Carbohydr. Res. 357, 143–146. doi: 10.1016/j.carres.2012.05.007
Li, Z., He, B., Gao, Y., e Cai, L. (2015a). Synthesis of D-sorbose and D-psicose by recombinant Escherichia coli. J. Carbohydr. Chem. 34, 349–357. doi: 10.1080/07328303.2015.1068794
Li, Z., Li, F., Cai, L., Chen, Z., Qin, L., e Gao, X.-D. (2020b). One-pot multienzyme synthesis of rare ketoses from glycerol. J. Agric. Food Chem. 68, 1347–1353. doi: 10.1021/acs.jafc.9b06748
Li, Z., Li, Y., Duan, S., Liu, J., Yuan, P., Nakanishi, H., et al. (2015b). Bioconversion of D-glucose to D-psicose with immobilized D-xylose isomerase and D-psicose 3-epimerase on Saccharomyces cerevisiae spores. J. Ind. Microbiol. 42, 1117–1128. doi: 10.1007/s10295-015-1631-8
Li, C., Lin, J., Guo, Q., Zhang, C., Du, K., Lin, H., et al. (2018). D-Psicose 3-epimerase secretory overexpression, immobilization, and D-psicose biotransformation, separation and crystallization. J. Chem. Technol. Biotechnol. 93, 350–357. doi: 10.1002/jctb.5360
Li, Y., Shi, T., Han, P., e You, C. (2021). Thermodynamics-driven production of value-added D-allulose from inexpensive starch by an in vitro enzymatic synthetic biosystem. ACS Catal. 11, 5088–5099. doi: 10.1021/acscatal.0c05718
Li, W., Zhu, Y., Jiang, X., Zhang, W., Guang, C., e Mu, W. (2020a). One-pot production of D-allulose from inulin by a novel identified thermostable exoinulinase from Aspergillus piperis and Dorea sp. D-allulose 3-epimerase. Process Biochem. 99, 87–95. doi: 10.1016/j.procbio.2020.08.021
Lim, B. C., Kim, H. J., e Oh, D. K. (2009). A stable immobilized D-psicose 3-epimerase for the production of D-psicose in the presence of borate. Process Biochem. 44, 822–828. doi: 10.1016/j.procbio.2009.03.017
Liu, S., Ammirati, M. J., Song, X., Knafels, J. D., Zhang, J., Greasley, S. E., et al. (2012). Insights into mechanism of glucokinase activation: observation of multiple distinct protein conformations. J. Biol. Chem. 287, 13598–13610. doi: 10.1074/jbc.M111.274126
Liu, Z., Cao, S., Liu, M., Kang, W., e Xia, J. (2019). Self-assembled multienzyme nanostructures on synthetic protein scaffolds. ACS Nano 13, 11343–11352. doi: 10.1021/acsnano.9b04554
Lloyd, D. J., St Jean, D. J., Kurzeja, R. J., Wahl, R. C., Michelsen, K., Cupples, R., et al. (2013). Antidiabetic effects of glucokinase regulatory protein small-molecule disruptors. Nature 504, 437–440. doi: 10.1038/nature12724
Matsuo, T., e Izumori, K. (2009). D-Psicose inhibits intestinal alpha-glucosidase and suppresses the glycemic response after ingestion of carbohydrates in rats. J. Clin. Biochem. Nutr. 45, 202–206. doi: 10.3164/jcbn.09-36
Matsuo, T., Suzuki, H., Hashiguchi, M., e Izumori, K. (2002). D-psicose is a rare sugar that provides no energy to growing rats. J. Nutr. Sci. Vitaminol. 48, 77–80. doi: 10.3177/jnsv.48.77
McDonald, E. J. (1967). A new synthesis of D-psicose (D-ribo-hexulose). Carbohydr. Res. 5, 106–108. doi: 10.1016/0008-6215(67)85014-6
Moller, D., e Berger, J. (2003). Role of PPARs in the regulation of obesity-related insulin sensitivity and inflammation. Int. J. Obes. 27, S17–S21. doi: 10.1038/sj.ijo.0802494
Nagata, Y., Kanasaki, A., Tamaru, S., e Tanaka, K. (2015). D-psicose, an epimer of D-fructose, favorably alters lipid metabolism in Sprague–Dawley rats. J. Agric. Food Chem. 63, 3168–3176. doi: 10.1021/jf502535p
Narayan Patel, S., Singh, V., Sharma, M., Sangwan, R. S., Singhal, N. K., e Singh, S. P. (2018). Development of a thermo-stable and recyclable magnetic nanobiocatalyst for bioprocessing of fruit processing residues and D-allulose synthesis. Bioresour. Technol. 247, 633–639. doi: 10.1016/j.biortech.2017.09.112
Natsume, Y., Yamada, T., Iida, T., Ozaki, N., Gou, Y., Oshida, Y., et al. (2021). Investigation of D-allulose effects on high-sucrose diet-induced insulin resistance via hyperinsulinemic-euglycemic clamps in rats. Heliyon 7:e08013. doi: 10.1016/j.heliyon.2021.e08013
Nishida, K., e Kondo, A. (2021). CRISPR-derived genome editing technologies for metabolic engineering. Metab. Eng. 63, 141–147. doi: 10.1016/j.ymben.2020.12.002
Ochiai, M., Onishi, K., Yamada, T., Iida, T., e Matsuo, T. (2014). D-psicose increases energy expenditure and decreases body fat accumulation in rats fed a high-sucrose diet. Int. J. Food Sci. Nutr. 65, 245–250. doi: 10.3109/09637486.2013.845653
Park, S. Y., e Yoon, K. Y. (2015). Enzymatic production of soluble dietary fiber from the cellulose fraction of Chinese cabbage waste and potential use as a functional food source. Food Sci. Biotechnol. 24, 529–535. doi: 10.1007/s10068-015-0069-0
Pfefferkorn, J. A. (2013). Strategies for the design of hepatoselective glucokinase activators to treat type 2 diabetes. Expert. Opin. Drug. Discov. 8, 319–330. doi: 10.1517/17460441.2013.748744
Qi, Z., Zhu, Z., Wang, J.-W., Li, S., Guo, Q., Xu, P., et al. (2017). Biochemical analysis and the preliminary crystallographic characterization of D-tagatose 3-epimerase from Rhodobacter sphaeroides. Microb. Cell Factories 16:193. doi: 10.1186/s12934-017-0808-4
Ran, G., Tan, D., Zhao, J., Fan, F., Zhang, Q., Wu, X., et al. (2019). Functionalized polyhydroxyalkanoate nano-beads as a stable biocatalyst for cost-effective production of the rare sugar D-allulose. Bioresour. Technol. 289:121673. doi: 10.1016/j.biortech.2019.121673
Rienzo, M., Jackson, S. J., Chao, L. K., Leaf, T., Schmidt, T. J., Navidi, A. H., et al. (2021). High-throughput screening for high-efficiency small-molecule biosynthesis. Metab. Eng. 63, 102–125. doi: 10.1016/j.ymben.2020.09.004
Sánchez-Moreno, I., Francisco García-García, J., Bastida, A., e García-Junceda, E. (2004). Multienzyme system for dihydroxyacetone phosphate-dependent aldolase catalyzed C–C bond formation from dihydroxyacetone. Chem. Commun. 35, 1634–1635. doi: 10.1002/chin.200447149
Schümperli, M., Pellaux, R., e Panke, S. (2007). Chemical and enzymatic routes to dihydroxyacetone phosphate. Appl. Microbiol. Biotechnol. 75, 33–45. doi: 10.1007/s00253-007-0882-3
Shepelin, D., Hansen, A. S. L., Lennen, R., Luo, H., e Herrgård, M. J. (2018). Selecting the best: evolutionary engineering of chemical production in microbes. Genes 9:249. doi: 10.3390/genes9050249
Shintani, T., Sakoguchi, H., Yoshihara, A., Izumori, K., e Sato, M. (2017a). D-Allulose, a stereoisomer of D-fructose, extends Caenorhabditis elegans lifespan through a dietary restriction mechanism: a new candidate dietary restriction mimetic. Biochem. Biophys. Res. Commun. 493, 1528–1533. doi: 10.1016/j.bbrc.2017.09.147
Shintani, T., Yamada, T., Hayashi, N., Iida, T., Nagata, Y., Ozaki, N., et al. (2017b). Rare sugar syrup containing D-allulose but not high-fructose corn syrup maintains glucose tolerance and insulin sensitivity partly via hepatic glucokinase translocation in Wistar rats. J. Agric. Food Chem. 65, 2888–2894. doi: 10.1021/acs.jafc.6b05627
Song, Y., Nguyen, Q. A., Wi, S. G., Yang, J., e Bae, H. J. (2016). Strategy for dual production of bioethanol and D-psicose as value-added products from cruciferous vegetable residue. Bioresour. Technol. 223, 34–39. doi: 10.1016/j.biortech.2016.10.021
Song, Y., Oh, C., e Bae, H.-J. (2017). Simultaneous production of bioethanol and value-added D-psicose from Jerusalem artichoke (Helianthus tuberosus L.) tubers. Bioresour. Technol. 244, 1068–1072. doi: 10.1016/j.biortech.2017.08.079
Su, L., Sun, F., Liu, Z., Zhang, K., e Wu, J. (2018). Produção altamente eficiente de D-psicose 3-epimerase de Clostridium cellulolyticum H10 em Bacillus subtilis e utilização destas células para produzir D-psicose. Microb. Cell Factories 17:188. doi: 10.1186/s12934-018-1037-1
Suna, S., Yamaguchi, F., Kimura, S., Tokuda, M., e Jitsunari, F. (2007). Efeito preventivo da D-psicose, um dos ceto-hexoses raras, na lesão testicular induzida por ftalato de di-(2-etilexilo) (DEHP) em ratos. Toxicol. Lett. 173, 107–117. doi: 10.1016/j.toxlet.2007.06.015
Takata, M. K., Yamaguchi, F., Nakanose, K., Watanabe, Y., Hatano, N., Tsukamoto, I., et al. (2005). Efeito neuroprotetor da D-psicose na apoptose induzida por 6-hidroxidopamina em células de feocromocitoma (PC12) de rato. J. Biosci. Bioeng. 100, 511–516. doi: 10.1263/jbb.100.511
Toyoda, Y., Mori, S., Umemura, N., Futamura, N., Inoue, H., Hata, T., et al. (2010). Supressão dos níveis de glicose no sangue pela D-psicose no teste de tolerância à glicose em ratos diabéticos. Jpn. Pharmacol. Ther. 65, 2888–2894. doi: 10.1021/acs.jafc.6b05627
Tseng, C.-W., Liao, C.-Y., Sun, Y., Peng, C.-C., Tzen, J. T. C., Guo, R.-T., et al. (2014). Imobilização da D-psicose 3-epimerase de Clostridium cellulolyticum em corpos oleosos artificiais. J. Agric. Food Chem. 62, 6771–6776. doi: 10.1021/jf502022w
Ung, Y. T., Ong, C. E., e Pan, Y. (2018). Abordagens atuais de alto rendimento para rastrear efeitos modulatórios de xenobióticos nas enzimas do citocromo P450 (CYP). High Throughput. 7:29. doi: 10.3390/ht7040029
Wagner, N., Bosshart, A., Failmezger, J., Bechtold, M., e Panke, S. (2015). Uma reação em cascata integrada de separação para superar limitações termodinâmicas na síntese de açúcares raros. Angew. Chem. Int. Ed. Engl. 54, 4182–4186. doi: 10.1002/anie.201411279
Wei, M., Li, Z., Li, T., Wu, B., Liu, Y., Qu, J., et al. (2015). Transformando a reação em balão em síntese baseada em células: produção de moléculas polihidroxiladas via Escherichia coli modificada. ACS Catal. 5, 4060–4065. doi: 10.1021/acscatal.5b00953
Windle, C. L., Müller, M., Nelson, A., e Berry, A. (2014). Engenharia de aldolases como biocatalisadores. Curr. Opin. Chem. Biol. 19, 25–33. doi: 10.1016/j.cbpa.2013.12.010
Wong, J. X., Ogura, K., Chen, S., e Rehm, B. H. A. (2020). Polihidroxialcanoatos bioengenheirados como suportes de enzimas imobilizadas para aplicações industriais. Front. Bioeng. Biotechnol. 8:156. doi: 10.3389/fbioe.2020.00156
Wu, Y., Chen, T., Liu, Y., Tian, R., Lv, X., Li, J., et al. (2019). Design de circuitos genéticos programáveis de biossensor-CRISPRi para controlo duplo, dinâmico e autónomo, do fluxo metabólico em Bacillus subtilis. Nucleic Acids Res. 48, 996–1009. doi: 10.1093/nar/gkz1123
Wu, S., e Li, Z. (2018). Biotransformações em cascata de células inteiras para síntese orgânica multipasso num único reator. ChemCatChem 10, 2164–2178. doi: 10.1002/cctc.201701669
Xia, Y., Cheng, Q., Mu, W., Hu, X., Sun, Z., Qiu, Y., et al. (2021). Avanços na investigação da D-alulose: Uma visão geral das funções fisiológicas, tecnologias de biotransformação enzimática e processos de produção. Foods 10:2186. doi: 10.3390/foods10092186
Yang, J., Tian, C., Zhang, T., Ren, C., Zhu, Y., Zeng, Y., et al. (2019). Desenvolvimento de um sistema de expressão de grau alimentar para a preparação de D-alulose 3-epimerase com genes de isoenzimas em tandem em Corynebacterium glutamicum e a sua aplicação na conversão de melaço de cana em D-alulose. Biotechnol. Bioeng. 116, 745–756. doi: 10.1002/bit.26909
Yang, J., Zhu, Y., Li, J., Men, Y., Sun, Y., e Ma, Y. (2015). Biossíntese de cetoses raras através da construção de uma via de recombinação numa Corynebacterium glutamicum modificada. Biotechnol. Bioeng. 112, 168–180. doi: 10.1002/bit.25345
Yang, J., Zhu, Y., Men, Y., Sun, S., Zeng, Y., Zhang, Y., et al. (2016). Construção de via metabólica em Corynebacterium glutamicum e engenharia de estirpes para produzir açúcares raros a partir de glicerol. J. Agric. Food Chem. 64, 9497–9505. doi: 10.1021/acs.jafc.6b03423
Yoshihara, A., Kozakai, T., Shintani, T., Matsutani, R., Ohtani, K., Iida, T., et al. (2017). Purificação e caracterização da D-alulose 3-epimerase derivada de Arthrobacter globiformis M30, um microrganismo GRAS. J. Biosci. Bioeng. 123, 170–176. doi: 10.1016/j.jbiosc.2016.09.004
Zhang, W., Chen, D., Chen, J., Xu, W., Chen, Q., Wu, H., et al. (2021). D-allulose, a versatile rare sugar: recent biotechnological advances and challenges. Crit. Rev. Food Sci. Nutr. doi: 10.1080/10408398.2021.2023091
Zhang, W., Jia, M., Yu, S., Zhang, T., Zhou, L., Jiang, B., et al. (2016a). Improving the thermostability and catalytic efficiency of the D-psicose 3-epimerase from Clostridium bolteae ATCC BAA-613 using site-directed mutagenesis. J. Agric. Food Chem. 64, 3386–3393. doi: 10.1021/acs.jafc.6b01058
Zhang, W., Li, H., Jiang, B., Zhang, T., and Mu, W. (2017). Production of D-allulose from D-glucose by Escherichia coli transformant cells co-expressing D-glucose isomerase and D-psicose 3-epimerase genes. J. Sci. Food Agric. 97, 3420–3426. doi: 10.1002/jsfa.8193
Zhang, W., Li, H., Zhang, T., Jiang, B., Zhou, L., and Mu, W. (2015). Characterization of a D-psicose 3-epimerase from Dorea sp. CAG317 with an acidic pH optimum and a high specific activity. J. Mol. Catal. B Enzym. 120, 68–74. doi: 10.1016/j.molcatb.2015.05.018
Zhang, J., Xu, C., Chen, X., Ruan, X., Zhang, Y., Xu, H., et al. (2020). Engineered Bacillus subtilis harbouring gene of D-tagatose 3-epimerase for the bioconversion of D-fructose into D-psicose through fermentation. Enzym. Microb. Technol. 136:109531. doi: 10.1016/j.enzmictec.2020.109531
Zhang, W., Yu, S., Zhang, T., Jiang, B., and Mu, W. (2016b). Recent advances in D-allulose: physiological functionalities, applications, and biological production. Trends Food Sci. Technol. 54, 127–137. doi: 10.1016/j.tifs.2016.06.004
Zhang, W., Zhang, T., Jiang, B., and Mu, W. (2016c). Biochemical characterization of a D-psicose 3-epimerase from Treponema primitia ZAS-1 and its application on enzymatic production of D-psicose. J. Sci. Food Agric. 96, 49–56. doi: 10.1002/jsfa.7187
Zhu, Z., Gao, D., Li, C., Chen, Y., Zhu, M., Liu, X., et al. (2019a). Redesign of a novel D-allulose 3-epimerase from Staphylococcus aureus for thermostability and efficient biocatalytic production of D-allulose. Microb. Cell Factories 18:59. doi: 10.1186/s12934-019-1107-z
Zhu, Z., Li, C., Liu, X., Gao, D., Wang, X., Tanokura, M., et al. (2019b). Biochemical characterization and biocatalytic application of a novel D-tagatose 3-epimerase from Sinorhizobium sp. RSC Adv. 9, 2919–2927. doi: 10.1039/C8RA10029B
Zhu, Y., Li, Y., Xu, Y., Zhang, J., Ma, L., Qi, Q., et al. (2021). Development of bifunctional biosensors for sensing and dynamic control of glycolysis flux in metabolic engineering. Metab. Eng. 68, 142–151. doi: 10.1016/j.ymben.2021.09.011
Palavras-chave: açúcares raros, D-alulose, D-alulose 3-epimerase, biossíntese, aldolases, aplicações
Referência: Chen Z, Gao XD e Li Z (2022) Avanços recentes nas funções fisiológicas e na biossíntese da D-alulose. Front. Microbiol . 13:881037. doi: 10.3389/fmicb.2022.881037
Revisado por:
Youqiang Xu , Universidade de Tecnologia e Negócios de Pequim, China;Xinqiang Xie , Academia de Ciências de Guangdong, China.
Direitos de autor © 2022 Chen, Gao e Li. Este é um artigo de acesso aberto distribuído sob os termos da licença Creative Commons Atribuição (CC BY). A sua utilização, distribuição ou reprodução em outros fóruns é permitida, desde que o(s) autor(es) original(is) e o(s) detentor(es) dos direitos de autor sejam creditados e que a publicação original nesta revista seja citada, de acordo com a prática académica aceite. Não é permitida qualquer utilização, distribuição ou reprodução que não esteja em conformidade com estes termos.
*Correspondência: Zijie Li, lizijie@jiangnan.edu.cn
Isenção de responsabilidade: Todas as afirmações feitas neste artigo são apenas da responsabilidade dos autores e não refletem necessariamente as das suas organizações afiliadas, da editora, dos editores ou dos revisores. A editora não garante nem endossa qualquer produto avaliado neste artigo ou qualquer afirmação feita pelo seu fabricante.
