

Τα πιο πρόσφατα αποτελέσματα σχετικά με τις φυσιολογικές λειτουργίες και τη βιοσύνθεση της D-αλλουλόζης
Allulose StoreΑκρόαση σελίδας
Πηγή: frontiers
Τμήμα Μικροβιολογίας Τροφίμων
Τόμος 13 - 2022 |https://doi.org/10.3389/fmicb.2022.881037
Αυτό το άρθρο αποτελεί μέρος του ερευνητικού θέματοςΚαινοτόμες μικροβιακές τεχνολογίες για μια μελλοντική και βιώσιμη επιστήμη τροφίμων
Πρόσφατα ευρήματα σχετικά με τις φυσιολογικές λειτουργίες και τη βιοσύνθεση της D-αλλουλόζης
- Βασικό Εργαστήριο Χημείας και Βιοτεχνολογίας Υδατανθράκων, Υπουργείο Παιδείας, Σχολή Βιοτεχνολογίας, Πανεπιστήμιο Jiangnan, Wuxi, Κίνα
Η D-αλλουλόζη, ένα σάκχαρο που θεωρείται γενικά ασφαλές (GRAS), είναι σπάνιο στη φύση.
Λόγω της χαμηλής θερμιδικής της αξίας, της γεύσης που μοιάζει με σακχαρόζη και των μοναδικών λειτουργιών της, αποτελεί ένα από τα πιο υποσχόμενα γλυκαντικά για μελλοντική χρήση.
Η D-αλλουλόζη έχει πολλές φυσιολογικές επιδράσεις, όπως αντιαπαχυσαρκική, αντιυπεργλυκαιμική, αντιδιαβητική, αντιφλεγμονώδη, αντιοξειδωτική και νευροπροστατευτική δράση.
Ως εκ τούτου, η D-αλλουλόζη έχει σημαντική αξία εφαρμογής στη βιομηχανία τροφίμων, τη φαρμακοβιομηχανία και την υγειονομική περίθαλψη.
Ωστόσο, το υψηλό κόστος παραγωγής της D-αλλουλόζης περιορίζει την ευρεία εφαρμογή της. Επί του παρόντος, η βιομετατροπή είναι πολύ ελκυστική για τη σύνθεση της D-αλλουλόζης, με δύο κύριες μεθόδους βιοσύνθεσης: τη στρατηγική Izumoring και τη στρατηγική αλδολάσης εξαρτώμενης από DHAP.
Αυτό το άρθρο παρέχει μια επισκόπηση των τελευταίων ευρημάτων σχετικά με τις φυσιολογικές λειτουργίες και τη βιοσύνθεση της D-αλλουλόζης. Επιπλέον, παρουσιάζει τις μελλοντικές προοπτικές παραγωγής της D-αλλουλόζης.
Εισαγωγή
Τελευταία, ο κίνδυνος παχυσαρκίας, υπερλιπιδαιμίας, υπέρτασης και διαβήτη έχει αυξηθεί ραγδαία παγκοσμίως λόγω της υπερβολικής πρόσληψης διατροφών με υψηλή περιεκτικότητα σε λίπος και ζάχαρη.
Η σακχαρόζη, ένα παραδοσιακό γλυκαντικό τροφίμων, παίζει σημαντικό ρόλο στη βιομηχανία τροφίμων λόγω της γλυκύτητας και της γευστικότητάς της ( Castro-Muñoz et al., 2022 ).
Ωστόσο, η σακχαρόζη έχει ορισμένα μειονεκτήματα, όπως υψηλή θερμιδική αξία, ικανότητα πρόκλησης υπεργλυκαιμικών αντιδράσεων και σύνδεση με τον διαβήτη ( Grassi et al., 2021 ).
Επομένως, τα υποκατάστατα γλυκαντικών χαμηλών θερμίδων έχουν κεντρίσει το ενδιαφέρον των ερευνητών ( Khan et al., 2021 ).
Έχουν αναφερθεί περισσότερα από 30 είδη σπάνιων σακχάρων ( Granström et al., 2004 ). Διαθέτουν μοναδικές βιολογικές λειτουργίες και χρησιμοποιούνται ως πρόσθετα τροφίμων, καταστολείς καρκινικών κυττάρων, καθώς και ως δομικά στοιχεία για αντικαρκινικά και αντιιικά φάρμακα ( Zhang et al., 2016b ; Li et al., 2017 ; Guerrero-Wyss et al., 2018 ; Hoshikawa et al., 2018 ; Xia et al., 2021 ).
Η D-αλλουλόζη (γνωστή και ως D-ψικόζη) είναι η πιο αξιοσημείωτη από τα σπάνια σάκχαρα.
Έχουν περάσει περισσότερα από 20 χρόνια από τότε που ο Ken Izumori ανέφερε για πρώτη φορά την D-αλλουλόζη ( Itoh et al., 1995 ).
Εμφανίζει το 70% της γλυκύτητας της σακχαρόζης, αλλά μόνο το 0,3% της ενεργειακής της αξίας.
Επιπλέον, δεν περιέχει σχεδόν καθόλου θερμίδες ( Matsuo et al., 2002 ).
Ως σημαντικό βιοπροϊόν για τη βιομηχανία, η D-αλλουλόζη ταξινομήθηκε από τον Αμερικανικό Οργανισμό Τροφίμων και Φαρμάκων (FDA) το 2002 ως ουσία «Γενικά Αναγνωρισμένη ως Ασφαλής» (GRAS) και εγκρίθηκε η χρήση της σε γλυκά, χυμούς, συμπληρώματα διατροφής και άλλα διαιτητικά προϊόντα.
Ως εκ τούτου, η D-αλλουλόζη έχει σημαντική αξία εφαρμογής στη βιομηχανία τροφίμων, τη φαρμακοβιομηχανία και την υγειονομική περίθαλψη.
Η D-αλλουλόζη αναμένεται να αλλάξει την αγορά γλυκαντικών λόγω της χαμηλής θερμιδικής της αξίας και της γευστικότητάς της, καθώς θα είναι σε θέση να ανταγωνιστεί άλλα υποκατάστατα ζάχαρης (πολυόλες, όπως ξυλιτόλη, μαννιτόλη και σορβιτόλη).
Η εμπορική τιμή της D-αλλουλόζης αναμένεται να προσεγγίσει τις τιμές των ανταγωνιστικών γλυκαντικών υποκατάστατων ζάχαρης, όπως η ξυλιτόλη (2–5 USD/kg), η μαννιτόλη (1–5 USD/kg) και η σορβιτόλη (1–10 USD/kg).
Στο άμεσο μέλλον, η D-αλλουλόζη θα γίνει ανταγωνιστική στη μαζική παραγωγή, παρόμοια με άλλα γλυκαντικά με κατανάλωση εκατομμυρίων τόνων ετησίως.
Επί του παρόντος, οι παράγοντες που περιορίζουν την προσφορά και την τιμή της D-αλλουλόζης περιλαμβάνουν το υψηλό κόστος των πρώτων υλών, τις χαμηλές αποδόσεις και τη δυσκολία απομόνωσης.
Σε αυτό το άρθρο, συνοψίζουμε και συζητάμε τα πρόσφατα ευρήματα σχετικά με τις φυσιολογικές λειτουργίες και τη βιοσύνθεση της D-αλλουλόζης.
Φυσιολογικές λειτουργίες της D-αλλουλόζης
Επίδραση της D-αλλουλόζης στον μεταβολισμό των λιπιδίων
Η D-αλλουλόζη έχει αποδειχθεί ότι διαθέτει αντιαπαχυσαρκική δράση σε ζώα και ανθρώπους μέσω της μείωσης της πρόσληψης τροφής, της μάζας λίπους και του βάρους του λιπώδους ιστού ( Kimura et al., 2017 ; Bilal et al., 2018 ).
Επιπλέον, πολλά στοιχεία υποδηλώνουν ότι η D-αλλουλόζη μπορεί να αυξήσει την κατανάλωση ενέργειας και να μειώσει την εναπόθεση λίπους σε φυσιολογικούς αρουραίους ( Chung et al., 2012 ; Ochiai et al., 2014 ).
Αν και η D-αλλουλόζη μπορεί να μειώσει το βάρος του λιπώδους ιστού, ο μηχανισμός παραμένει άγνωστος.
Μπορεί να μειώσει τη δραστηριότητα της συνθάσης λιπαρών οξέων (FSA) και να αυξήσει τη β-οξείδωση και τη δραστηριότητα της παλμιτοϋλτρανσφεράσης της καρνιτίνης (CPT) στον λευκό λιπώδη ιστό της επιδιδυμίδας (WAT; Han et al., 2016 ).
Επιπλέον, η διαιτητική D-αλλουλόζη μπορεί να αναστείλει την έκφραση της καρβοξυλάσης του ακετυλο-CoA άλφα (ACCα), η οποία σχετίζεται με τη λιπογένεση, στον λευκό λιπώδη ιστό της επιδιδυμίδας.
Επιπλέον, η διαιτητική D-αλλουλόζη μπορεί να διεγείρει την έκφραση της κινάσης πρωτεΐνης άλφα 2 (AMPKα2) που ενεργοποιείται από AMP, η οποία σχετίζεται με την οξείδωση των λιπαρών οξέων, της ορμονοευαίσθητης λιπάσης (HSL) και του υποδοχέα άλφα που ενεργοποιείται από τον πολλαπλασιαστή υπεροξεισωμάτων (PPARα; Chen et al., 2019 ). Ως εκ τούτου, η D-αλλουλόζη διαθέτει πιθανές αντιαπαχυσαρκικές ιδιότητες.
Αντιυπεργλυκαιμική δράση της D-αλλουλόζης
Η ανθυγιεινή διατροφή έχει οδηγήσει στην ταχεία αύξηση της παχυσαρκίας και του διαβήτη τύπου 2 (T2DM) που προκαλείται από την παχυσαρκία παγκοσμίως, γεγονός που αυξάνει σημαντικά το κόστος διαχείρισης αυτών των χρόνιων παθήσεων.
Επομένως, είναι πολύ σημαντικό να εντοπιστούν αποτελεσματικές θεραπευτικές παρεμβάσεις για τον διαβήτη και τις επιπλοκές του. Η D-αλλουλόζη έχει λάβει μεγάλη προσοχή λόγω των υποσχόμενων αντιυπεργλυκαιμικών ιδιοτήτων της, καθώς μπορεί να ρυθμίσει τα επίπεδα γλυκόζης στο πλάσμα, το σωματικό βάρος και τη μάζα λίπους ( Matsuo και Izumori, 2009 ; Hossain et al., 2015 ; Lee et al., 2020 ).
Ωστόσο, ο μηχανισμός της αντιδιαβητικής της δράσης παραμένει ασαφής. Υποτίθεται ότι η D-αλλουλόζη επηρεάζει τα επίπεδα σακχάρου στο αίμα και την έκκριση ινσουλίνης, ή τη δραστηριότητα της γλυκοσιδάσης και των λιπολυτικών ενζύμων.
Έχει αποδειχθεί ότι η D-αλλουλόζη αναστέλλει σημαντικά την αύξηση της συγκέντρωσης γλυκόζης στο πλάσμα που προκαλείται από σακχαρόζη ή μαλτόζη ( Matsuo και Izumori, 2009 ).
Επιπλέον, η D-αλλουλόζη έχει αποδειχθεί ότι αναστέλλει αποτελεσματικά τη δραστηριότητα της εντερικής σακχαράσης και μαλτάσης.
Η προσθήκη D-αλλουλόζης (5 g) μπορεί να καταστείλει σημαντικά την αύξηση του σακχάρου στο αίμα που προκαλείται από από του στόματος μαλτοδεξτρίνη (75 g) σε υγιείς ενήλικες.
Επιπλέον, η από του στόματος χορήγηση D-αλλουλόζης από μόνη της δεν επηρεάζει τα επίπεδα γλυκόζης και ινσουλίνης στο αίμα ( Iida et al., 2008 ).
Η D-αλλουλόζη έχει επίσης αποδειχθεί ότι αναστέλλει την αύξηση του σακχάρου στο αίμα μετά το γεύμα, κυρίως σε ασθενείς με οριακό διαβήτη, και δεν παρατηρήθηκαν ανεπιθύμητες ενέργειες ή κλινικά προβλήματα μετά από 12 εβδομάδες συνεχούς πρόσληψης D-αλλουλόζης ( Hayashi et al., 2010 ).
Αν και πολλές μελέτες έχουν δείξει ότι η D-αλλουλόζη διαθέτει αντιδιαβητική δράση, ο μηχανισμός δεν είναι πλήρως κατανοητός.
Στο ήπαρ, ο μεταβολισμός της D-γλυκόζης ρυθμίζεται από τη μετατόπιση της γλυκοκινάσης μεταξύ πυρήνα και κυτταροπλάσματος ( Hossain et al., 2015 ).
Σε χαμηλά επίπεδα γλυκόζης, η γλυκοκινάση παραμένει σε ανενεργή μορφή συνδεδεμένη με την πρωτεΐνη ρύθμισης της γλυκοκινάσης (GKRP), η οποία στρατολογείται στον πυρήνα του ηπατοκυττάρου. Όταν τα επίπεδα γλυκόζης φτάσουν σε υψηλά επίπεδα, η γλυκοκινάση ενεργοποιείται με αποκόλληση από το σύμπλεγμα γλυκοκινάσης-GKRP και μετατοπίζεται από τον πυρήνα στο κυτταρόπλασμα, όπου συμμετέχει στον μεταβολισμό του γλυκογόνου και την ομοιόσταση του σακχάρου στο αίμα ( Liu et al., 2012 ).
Για παράδειγμα, η ενεργοποίηση της γλυκοκινάσης μπορεί να βελτιώσει την ανοχή στη γλυκόζη και την ευαισθησία στην ινσουλίνη ( Shintani et al., 2017b ).
Η μειωμένη λειτουργία της γλυκοκινάσης στο ήπαρ στον διαβήτη οδηγεί στην παθογένεια της υπεργλυκαιμίας ( Basu et al., 2001 ).
Ως εκ τούτου, η γλυκοκινάση θεωρείται πιθανός στόχος για αντιδιαβητικά φάρμακα ( Lloyd et al., 2013 ).
Επιπλέον, η γλυκοκινάση ενεργοποιείται από διάφορα φωσφορικά σάκχαρα, όπως η φρουκτόζη-6-φωσφορική (F6P) και η φρουκτόζη-1-φωσφορική (F1P; Pfefferkorn, 2013 ).
Η D-αλλουλόζη-1-φωσφορική, παρόμοια με τη φρουκτόζη-1-φωσφορική, ενεργοποιεί επίσης τη γλυκοκινάση. Ως εκ τούτου, η D-αλλουλόζη μπορεί να αυξήσει την ηπατική πρόσληψη γλυκόζης ( Toyoda et al., 2010 ).
Η γλυκόζη-6-φωσφατάση (G6Páz) συμβάλλει στην υπεργλυκαιμία στον διαβήτη και ρυθμίζει τα στάδια καθορισμού του ρυθμού της γλυκονεογενετικής ροής στο ήπαρ ( Herling et al., 1998 ).
Η D-αλλουλόζη μπορεί να ρυθμίσει τα επίπεδα σακχάρου στο αίμα και να ασκήσει υπολιπιδαιμική δράση μειώνοντας τη δραστηριότητα της G6Páz ( Nagata et al., 2015 ).
Σύμφωνα με αναφορές, η από του στόματος χορήγηση D-αλλουλόζης μπορεί να διεγείρει την έκκριση GLP-1 και, επομένως, να εφαρμοστεί στην πρόληψη και τη θεραπεία της δυσανεξίας στη γλυκόζη ( Hayakawa et al., 2018 ).
Πρόσφατα επιβεβαιώθηκε ότι η D-αλλουλόζη επάγει την απελευθέρωση GLP-1, ενεργοποιεί τη σηματοδότηση των προσαγωγών του πνευμονογαστρικού νεύρου, μειώνει την πρόσληψη τροφής και περιορίζει την υπεργλυκαιμία σε υγιείς και παχύσαρκους διαβητικούς αρουραίους.
Επιπλέον, η από του στόματος χορήγηση D-αλλουλόζης μπορεί να διορθώσει τη διαταραγμένη υπερφαγία, την παχυσαρκία και τον διαβήτη ( Iwasaki et al., 2018 ).
Άλλες φυσιολογικές λειτουργίες της D-αλλουλόζης
Η D-αλλουλόζη ασκεί αντιφλεγμονώδη δράση καταστέλλοντας τα επίπεδα ορού προφλεγμονωδών κυτοκινών, όπως ο παράγοντας νέκρωσης όγκων-άλφα (TNF-α), η ιντερλευκίνη-6 (IL-6) και η μονοκυτταρική χημειοελκυστική πρωτεΐνη 1 (MCP-1). Αυτές οι κυτοκίνες προέρχονται κυρίως από τον σπλαχνικό λιπώδη ιστό ( Moller και Berger, 2003 ; Kim et al., 2017 ).
Η D-αλλουλόζη διαθέτει επίσης αντιοξειδωτική δράση, προστατεύοντας από την απόπτωση που προκαλείται από την 6-υδροξυδοπαμίνη ή προλαμβάνοντας την ορχική βλάβη μέσω της δέσμευσης των δραστικών μορφών οξυγόνου (ROS) ( Takata et al., 2005 ; Suna et al., 2007 ).
Η D-αλλουλόζη μπορεί επίσης να παρατείνει τη διάρκεια ζωής αυξάνοντας τη δραστηριότητα της δισμουτάσης του υπεροξειδίου (SOD) και της καταλάσης (CAT) ( Shintani et al., 2017a ).
Επιπλέον, έχει αποδειχθεί ότι η D-αλλουλόζη μεταβάλλει τα επίπεδα χοληστερόλης στον ορό των χάμστερ, εν μέρει μέσω της μείωσης των επιπέδων της προπρωτεϊνικής κονβερτάσης υποτιλισίνης/κεξίνης τύπου 9 (Pcsk9) ( Kanasaki et al., 2019 ).
Επιπλέον, η D-αλλουλόζη μπορεί να βελτιώσει τη συστηματική και μυϊκή ευαισθησία στην ινσουλίνη σε άγρυπνους αρουραίους ( Natsume et al., 2021 ). Οι διάφορες φυσιολογικές λειτουργίες της D-αλλουλόζης απεικονίζονται στο Σχήμα 1.
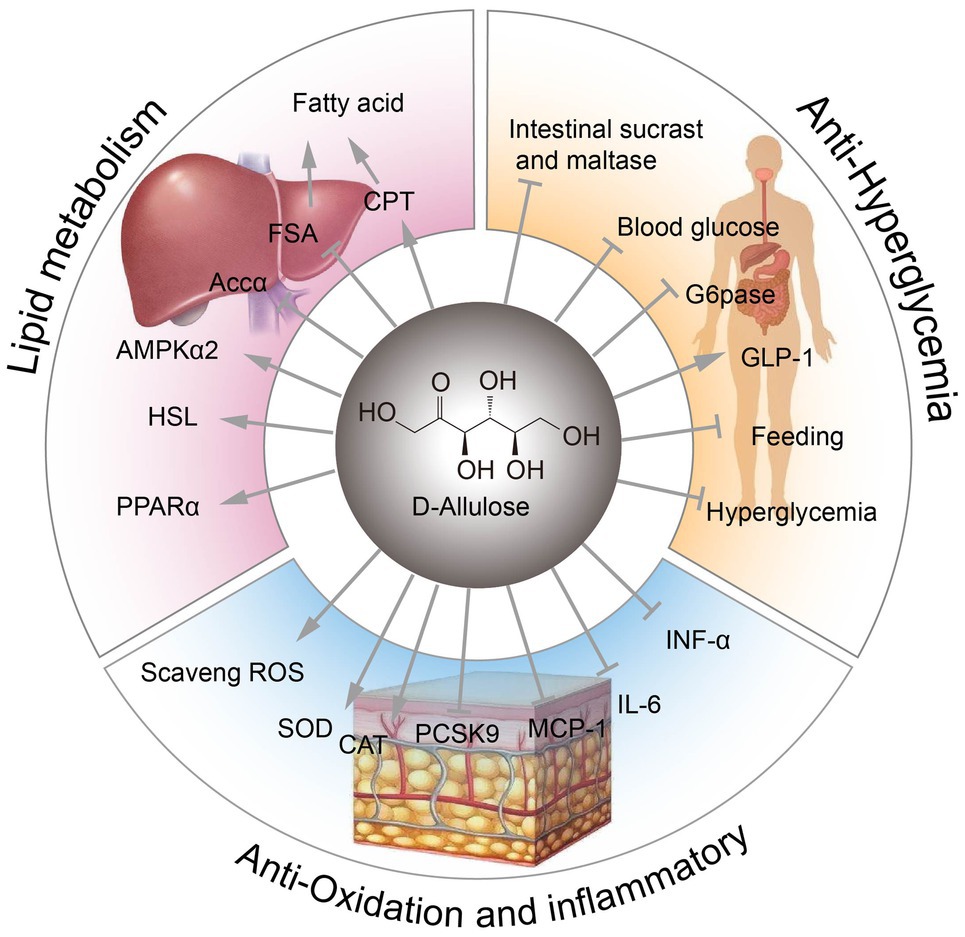
Σχήμα 1 . Φυσιολογικές λειτουργίες της D-αλλουλόζης. FSA, συνθάση λιπαρών οξέων· CPT, παλμιτοϋλοτρανσφεράση της καρνιτίνης· ACCα, καρβοξυλάση του ακετυλο-CoA άλφα· AMPKα, πρωτεϊνική κινάση ενεργοποιούμενη από AMP άλφα· HSL, ορμονοευαίσθητη λιπάση· PPARα, υποδοχέας ενεργοποιούμενος από τον πολλαπλασιαστή υπεροξεισωμάτων άλφα· ROS, δραστικές μορφές οξυγόνου· SOD, δισμουτάση του υπεροξειδίου· CAT, δραστηριότητα καταλάσης· Pcsk9, προπρωτεϊνική κονβερτάση υποτιλισίνης/κεξίνης τύπου 9· MCP-1, μονοκυτταρική χημειοελκυστική πρωτεΐνη 1· G6Páz, γλυκόζη-6-φωσφατάση.
Βιολογική παραγωγή D-αλλουλόζης
Όπως περιγράφηκε παραπάνω, η D-αλλουλόζη διαθέτει πολυάριθμες ευεργετικές φυσιολογικές λειτουργίες. Ωστόσο, η D-αλλουλόζη είναι σπάνια στη φύση, γεγονός που περιορίζει σε μεγάλο βαθμό την ευρεία εφαρμογή της. Η παραδοσιακή χημική σύνθεση της D-αλλουλόζης περιλαμβάνει συνήθως δύσκολες αντιδράσεις και πολυάριθμες δευτερεύουσες αντιδράσεις ( McDonald, 1967 ; Doner, 1979 ).
Με χημικές μεθόδους είναι δύσκολο να παραχθεί μια διαμόρφωση ενός μόνο προϊόντος.
Αντιθέτως, οι προσεγγίσεις βιομετατροπής έχουν πολλά πλεονεκτήματα, όπως ήπιες συνθήκες αντίδρασης, λίγα παραπροϊόντα, απλά στάδια καθαρισμού και φιλικές προς το περιβάλλον ιδιότητες ( Zhang et al., 2021 ).
Επομένως, ο βιομετασχηματισμός έχει γίνει σταδιακά η κύρια μέθοδος σύνθεσης της D-αλλουλόζης.
Επί του παρόντος, η βιολογική παραγωγή της D-αλλουλόζης επιτυγχάνεται κυρίως με δύο στρατηγικές: (1) τη στρατηγική Izumoring και (2) τη στρατηγική αλδόλασης που εξαρτάται από DHAP.
Παραγωγή D-αλλουλόζης με τη στρατηγική Izumoring
Παραγωγή D-αλλουλόζης από D-φρουκτόζη με τη χρήση ενζύμων της οικογένειας της D-ταγατόζης 3-επιμεράσης
Η στρατηγική Izumoring είναι μια πολλά υποσχόμενη προσέγγιση για τη βιοπαραγωγή οποιουδήποτε σακχάρου εξόζης και περιλαμβάνει D-ταγατόζη-3-επιμεράσες (DTEases), πολυολικές αφυδρογονάσες και αλδόζες-ισομεράσες ( Izumori, 2006 ).
Τις τελευταίες δεκαετίες, η στρατηγική Izumoring έχει αποδειχθεί αποτελεσματική στη βιοσύνθεση σπάνιων σακχάρων.
Τα ένζυμα που ανήκουν στην οικογένεια των DTEases είναι βασικά ένζυμα για τη βιοσύνθεση της D-αλλουλόζης από D-φρουκτόζη ( Σχήμα 2 ), και περιλαμβάνουν την DTEase και την D-αλλουλόζη-3-επιμεράση (DAEase).
Η DAEase παρουσιάζει μεγαλύτερη ειδικότητα για την D-αλλουλόζη παρά για την D-ταγατόζη ( Kim et al., 2006 ).
Από τον εντοπισμό της πρώτης DTEase από το Pseudomonas cichorii ST-24 το 1993, έχουν απομονωθεί άλλα ένζυμα DTEase από διάφορα είδη, όπως το Agrobacterium tumefaciens ( Kim et al., 2006 ), το Clostridium bolteae ( Jia et al., 2014 ), το Dorea sp. CAG317 ( Zhang et al., 2015 ), το Ruminococcus sp. 5_1_39BFAA ( Chen et al., 2016 ), το Treponema primitia ZAS-1 ( Zhang et al., 2016c ), το Rhodobacter sphaeroides ( Qi et al., 2017 ), το Ruminococcus sp. ( Li et al., 2018 ), το Arthrobacter globiformis M30 ( Yoshihara et al., 2017 ), το Clostridium cellulolyticum H10 ( Su et al., 2018 ), το Sinorhizobium sp. ( Zhu et al., 2019b ), καθώς και το Rhodopirellula baltica SH 1 ( Zhang et al., 2020 ). Λεπτομέρειες σχετικά με τις καταλυτικές ιδιότητες των ενζύμων της οικογένειας DTEase από διαφορετικά είδη παρουσιάζονται στον Πίνακα 1. Ο Itoh et al. (1995) ανέφεραν πρώτοι την ακινητοποίηση της DTEase από P. cichorii σε σφαιρίδια chitopearl, και παρήγαγαν 90 g D-αλλουλόζης από 500 g D-φρουκτόζης.
Έκτοτε, οι μέθοδοι ακινητοποίησης της DTEase συγκεντρώνουν ευρύ ενδιαφέρον ( Lim et al., 2009 ; Tseng et al., 2014 ; Narayan Patel et al., 2018 ), και τα ακινητοποιημένα ένζυμα έδειξαν βελτιωμένη θερμοσταθερότητα και σταθερότητα αποθήκευσης
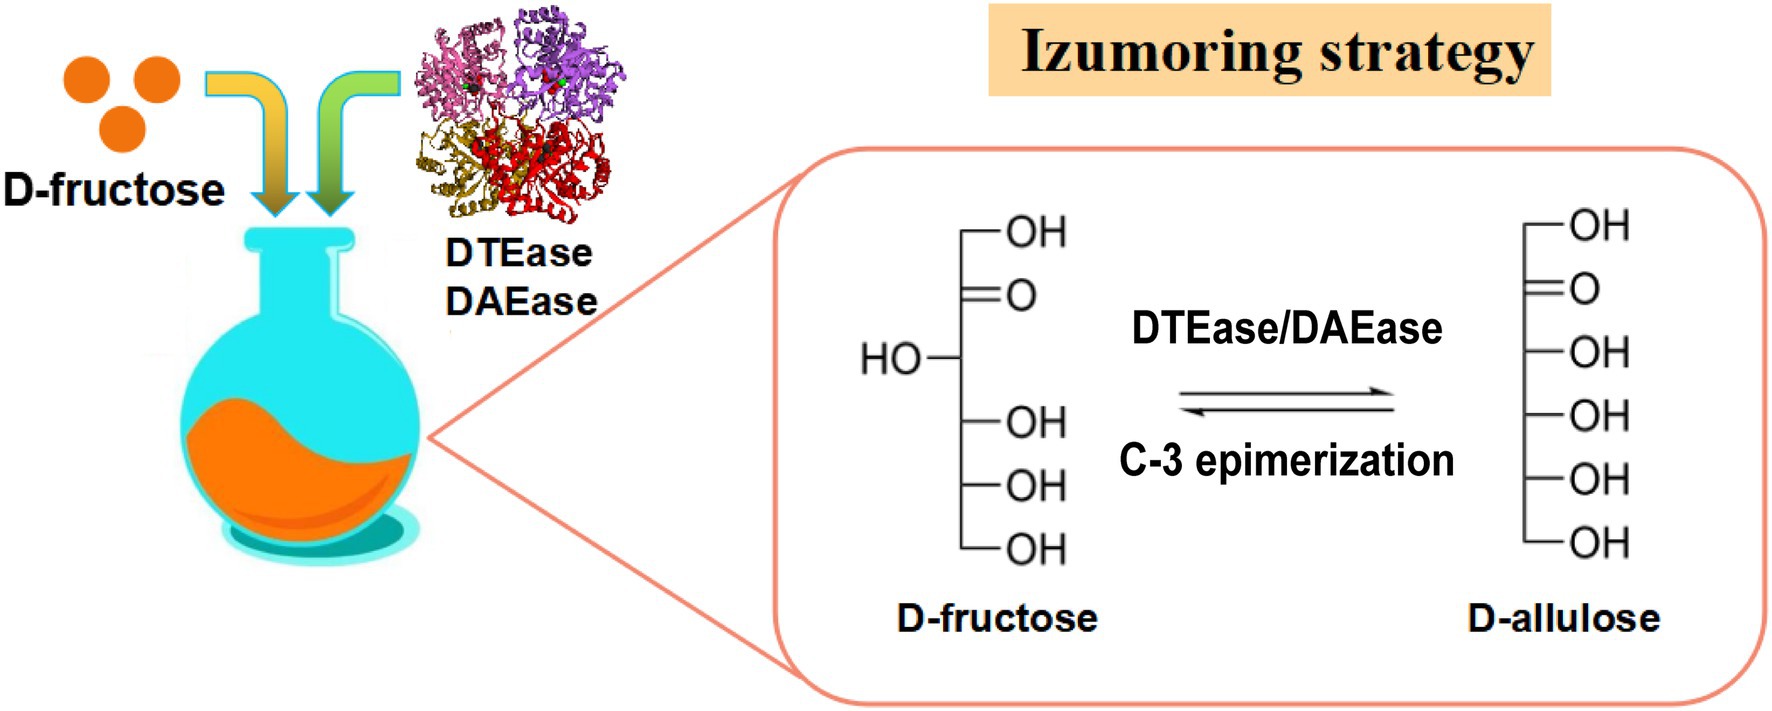
Σχήμα 2 . Στρατηγική Izumoring για την παραγωγή D-αλλουλόζης. DTEase, D-ταγατόζη-3-επιμεράση· DAEase, D-αλλουλόζη-3-επιμεράση
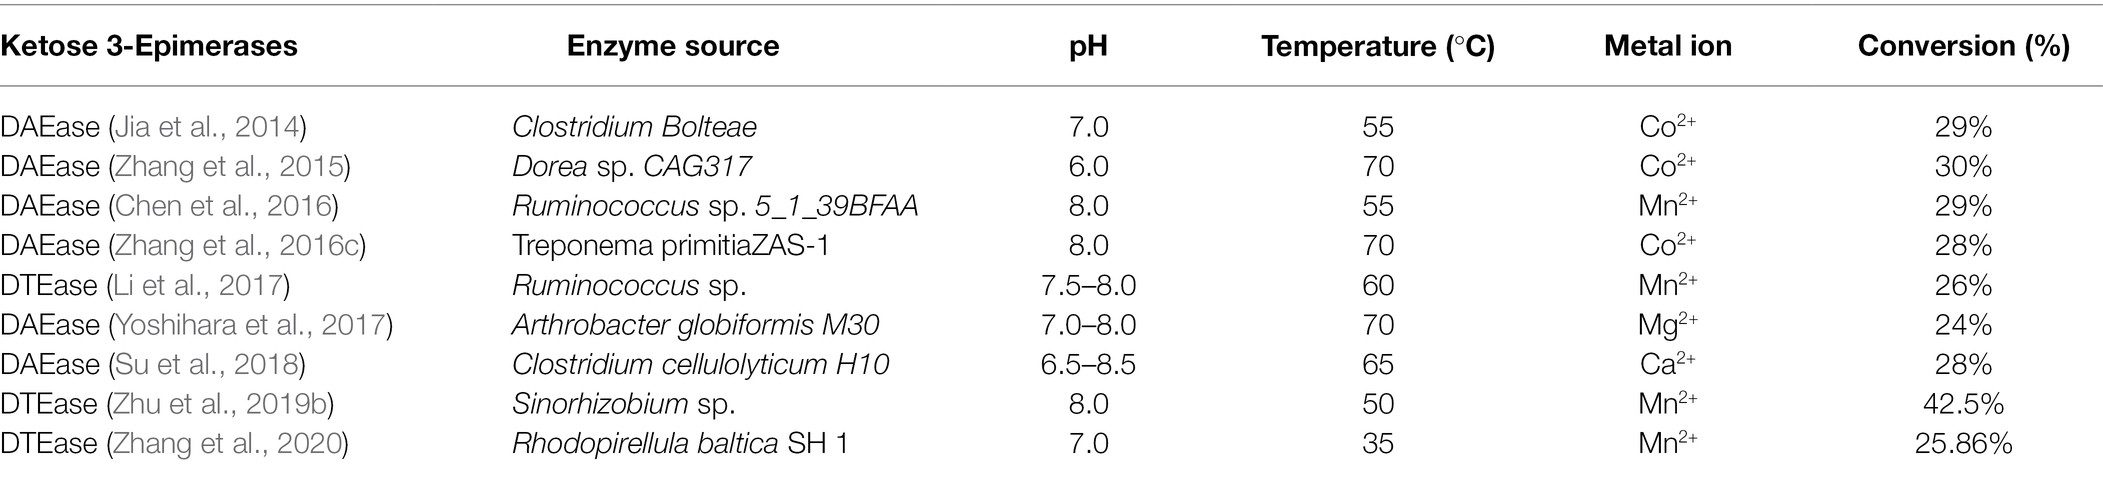
Πίνακας 1 . Ιδιότητες των ενζύμων που ανήκουν στην οικογένεια DTEase.
Βιοσύνθεση D-αλλουλόζης από φθηνά υλικά βασισμένη σε ένζυμα DTEase
Επί του παρόντος, τα γεωργικά παραπροϊόντα, όπως τα υπολείμματα φρούτων και λαχανικών, προκαλούν σημαντικά γεωργικά προβλήματα ( Lai et al., 2017 ).
Τα γεωργικά υπολείμματα συνήθως θάβονται σε χώρους υγειονομικής ταφής ή καίγονται ( Park και Yoon, 2015 ). Ωστόσο, αυτά τα υπολείμματα περιέχουν μεγάλες ποσότητες φυτικών ινών και σακχάρων, συμπεριλαμβανομένης της σακχαρόζης, της D-γλυκόζης και της D-φρουκτόζης.
Η μετατροπή των φυτικών ινών και των σακχάρων σε προϊόντα υψηλής προστιθέμενης αξίας αποτελεί ένα σημαντικό βήμα προς την κατεύθυνση της αντιμετώπισης των γεωργικών προβλημάτων.
Η καταλύση καταρράκτη θεωρείται μια πολύ ελκυστική προσέγγιση σε σύγκριση με την παραδοσιακή σύνθεση βήμα προς βήμα.
Αυτή η στρατηγική χρησιμοποιείται συχνά για την παραγωγή σπάνιων σακχάρων από φθηνά υλικά, όπως η σακχαρόζη, το τοπιναμπούρ, η ινουλίνη και τα υπολείμματα φρούτων/λαχανικών ( Σχήμα 3 ; Wagner et al., 2015 ; Song et al., 2016 , 2017 ; Zhang et al., 2017 ; Yang et al., 2019 ; Li et al., 2020a ).
Η D-αλλουλόζη συντέθηκε αποτελεσματικά από σακχαρόζη χρησιμοποιώντας καθαρισμένη ανασυνδυασμένη ινβερτάση, D-ξυλόζη ισομεράση και DTEase.
Επιπλέον, η πρακτική ενσωμάτωση του διαλύματος καταρράκτη και της χρωματογραφίας προσομοιωμένης κινούμενης κλίνης (SMB) χρησιμοποιήθηκε για την παραγωγή καθαρής D-αλλουλόζης (99,9%) με πολύ υψηλή απόδοση (89%· Wagner et al., 2015 ).
Η D-αλλουλόζη μπορεί επίσης να συντεθεί μέσω μιας αντίδρασης καταρράκτη δύο σταδίων, η οποία περιλαμβάνει την υδρόλυση του τοπιναμπούρ ( Song et al., 2017 ), τα υπολείμματα σταυρανθών φυτών ( Song et al., 2016 ) και την ινουλίνη ( Li et al., 2020a ).
Προκειμένου να μειώσουν το κόστος παραγωγής και να αποφύγουν τον καθαρισμό των ενζύμων, ο Zhu και οι συνεργάτες του ανέπτυξαν ένα σύστημα αντίδρασης ενός σταδίου και δύο ενζύμων με μια νέα εξω-ινουλινάση από το Bacillus velezensis (BvInu) και μια DAEάση από το Ruminococcus sp. για την παραγωγή D-αλλουλόζης από αγκινάρα Ιερουσαλήμ.
Η BvInu και η DAEάση εκφράστηκαν στο Bacillus subtilis και εκκρίθηκαν στο υπερκείμενο χωρίς καθαρισμό. Με τη βέλτιστη αναλογία BvInu/RDAE (80:40 U/g ινουλίνης), στους 50°C για 2 ώρες, ελήφθησαν 10,3 g/l D-αλλουλόζης από 50 g/l ινουλίνης ( Zhu et al., 2020 ).
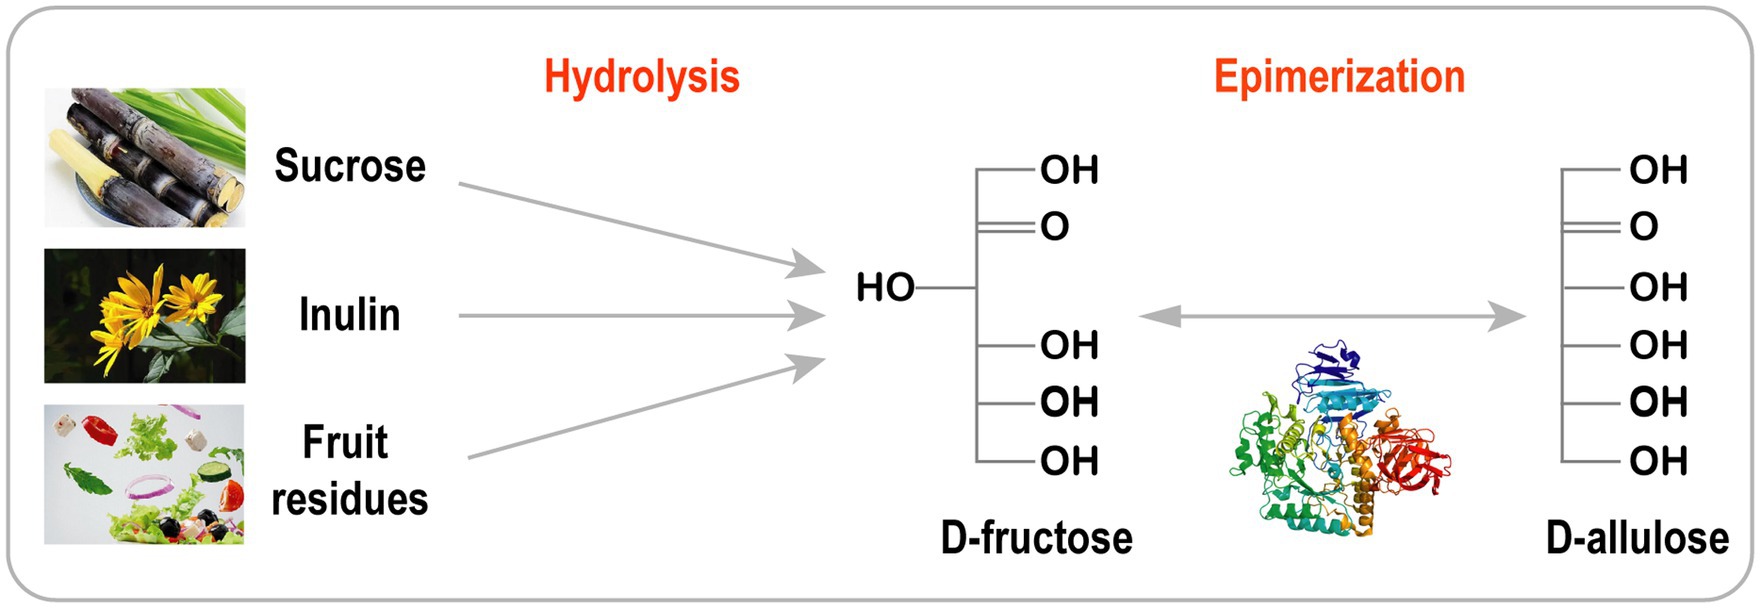
Σχήμα 3. Βιοσύνθεση D-αλλουλόζης από φθηνή πρώτη ύλη.
Βιοσύνθεση D-αλλουλόζης με τη βοήθεια μικροοργανισμών
Σε σύγκριση με τις διαδοχικές αντιδράσεις ενός σταδίου, οι αντιδράσεις με βιοκαταλύτες ολόκληρων κυττάρων έχουν πολλά πλεονεκτήματα ( Σχήμα 4 ): (1) Τα κύτταρα που περιέχουν τα ένζυμα μπορούν να παραχθούν εύκολα χωρίς τον επίπονο καθαρισμό των ενζύμων· (2) το κυτταρικό πλαίσιο παρέχει ένα κατάλληλο μικροπεριβάλλον και αναγέννηση συμπαραγόντων (ATP, NAD+/NADH)· (3) τα κυτταρικά τοιχώματα και οι μεμβράνες προστατεύουν τα ένζυμα από σκληρές συνθήκες αντίδρασης· και (4) η ενδοκυτταρική συνεντόπιση πολλαπλών ενζύμων αυξάνει την τοπική τους συγκέντρωση και μειώνει τη διάχυση των ενδιάμεσων προϊόντων στις διαδοχικές αντιδράσεις ( Wu και Li, 2018 ).
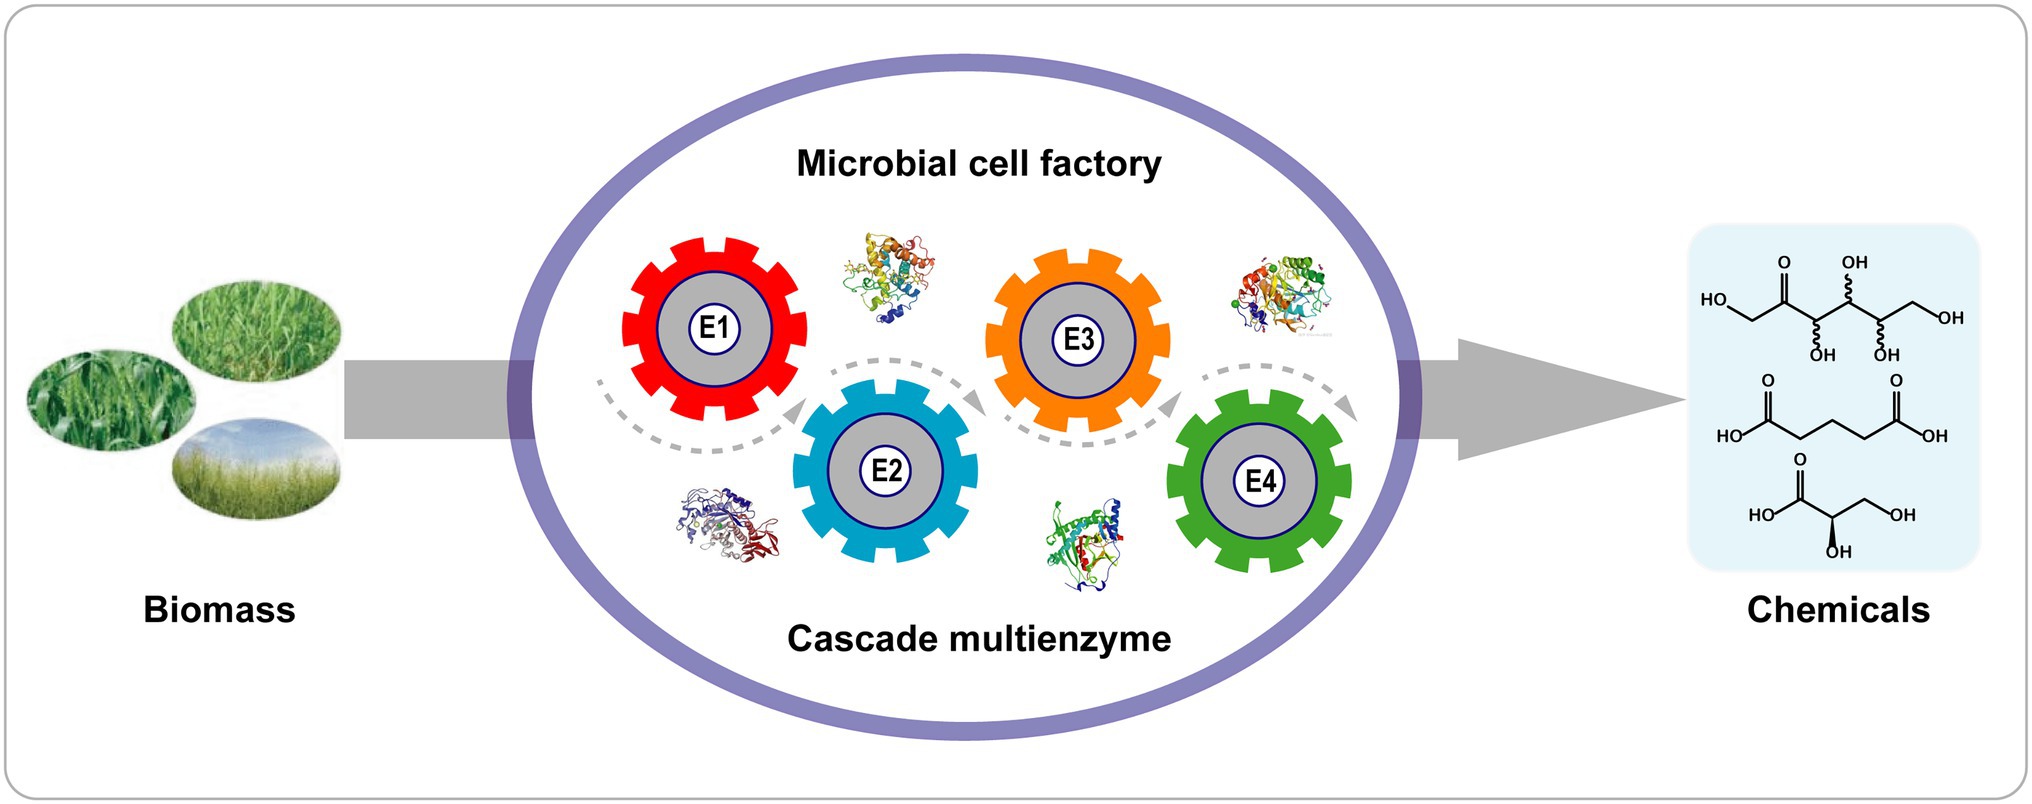
Σχήμα 4. Διαδοχικός βιομετασχηματισμός με ένα μόνο ανασυνδυασμένο κύτταρο. Τα E1–E4 δηλώνουν τα ένζυμα 1–4.
Το τροποποιημένο Escherichia coli είναι ένας από τους πιο ευρέως χρησιμοποιούμενους οργανισμούς για την παραγωγή D-αλλουλόζης, λόγω του καθαρού υποβάθρου του, του γρήγορου ρυθμού ανάπτυξης, της απλής καλλιέργειας και της σταθερής γενετικής του.
Η DAEάση και η ισομεράση D-γλυκόζης (GIáz) του Acidothermus cellulolyticus εκφράστηκαν μαζί για την παραγωγή D-αλλουλόζης από D-γλυκόζη ( Zhang et al., 2017 ).
Ομοίως, η DAEάση και η ισομεράση ξυλόζης (XI) εκφράστηκαν μαζί για την παραγωγή D-αλλουλόζης χρησιμοποιώντας D-γλυκόζη ως υπόστρωμα ( Chen et al., 2017 ).
Στις δύο παραπάνω προσεγγίσεις, η D-γλυκόζη μετατρεπόταν πρώτα σε D-φρουκτόζη μέσω της GIáz ή της XI, και στη συνέχεια η D-φρουκτόζη ισομεριζόταν αμέσως σε D-αλλουλόζη μέσω της DAEάσης.
Παρόλο που επιτεύχθηκε καλή παραγωγικότητα μέσω της τροποποίησης του E. coli, η οποία δεν ήταν εφαρμόσιμη στη βιομηχανία τροφίμων λόγω ενδοτοξινών και της κατάταξής τους ως μη τροφίμων ποιότητας, η DAEάση έχει εκφραστεί επιτυχώς μέχρι σήμερα σε πολλά στελέχη ασφαλή για τρόφιμα, όπως το B. subtilis, το Saccharomyces cerevisiae και το Corynebacterium glutamicum ( Li et al., 2015b ; He et al., 2016 ). Ο He και οι συνεργάτες του (2016) εμφάνισαν τη DTEάση του Clostridium scindens ATCC 35704 στην επιφάνεια σπορίων B. subtilis, για την παραγωγή D-αλλουλόζης από D-φρουκτόζη. Η DAEάση συνδέθηκε στο C-άκρο της CotZ και παρουσίασε υψηλή θερμοσταθερότητα. Μετά από πέντε κύκλους χρήσης, διατηρήθηκε το 60% της δραστηριότητας ( He et al., 2016 ).
Σε προηγούμενη μελέτη μας, αναπτύξαμε μια τεχνική εμφάνισης επιφανείας σπορίων για την παραγωγή D-αλλουλόζης από D-γλυκόζη. Σε αυτή την προσέγγιση, το ένζυμο-κλειδί XI από το Thermus thermophilus και η DAEάση από το A. tumefaciens ακινητοποιήθηκαν με βιολογικές και χημικές μεθόδους αντίστοιχα σε σπόρια S. cerevisiae ( Li et al., 2015b ).
Επιπλέον, πολλαπλές DAEάσεις και ινβερτάσες (INV) υπερεκφράστηκαν στο C. glutamicum, και τα τροποποιημένα κύτταρα ακινητοποιημένα με αλγινικό υποβλήθηκαν σε διαδοχική αντίδραση σε ένα σύστημα ενός σταδίου και δύο βημάτων για την παραγωγή D-αλλουλόζης από μελάσα ζαχαροκάλαμου. Μετά από 8 ώρες αντίδρασης, ελήφθησαν 61,2 g/L D-αλλουλόζης, που αποτελούσε το 17,4% του συνολικού μονοσακχαρίτη ( Yang et al., 2019 ).
Προς το παρόν, η στρατηγική Izumoring είναι η κύρια μέθοδος βιομηχανικής παραγωγής D-αλλουλόζης, η οποία επιτυγχάνεται με χρήση SMB. Επιπλέον, η διαχωρισμένη D-φρουκτόζη μπορεί να επαναχρησιμοποιηθεί για την παραγωγή D-αλλουλόζης. Εν συντομία, η στρατηγική Izumoring είναι ο απλούστερος και πιο κοινός τρόπος βιοσύνθεσης της D-αλλουλόζης. Ωστόσο, οι περιορισμοί της θερμοδυναμικής ισορροπίας αποτελούν ένα εμπόδιο που περιορίζει την ευρεία εφαρμογή της D-αλλουλόζης στη βιομηχανία τροφίμων.
Παραγωγή D-αλλουλόζης με τη βοήθεια αλδολασών εξαρτώμενων από DHAP
Όπως αναφέρθηκε παραπάνω, έχουν αναπτυχθεί διάφορες προσεγγίσεις βασισμένες στη στρατηγική Izumoring για την παραγωγή D-αλλουλόζης από φθηνές πρώτες ύλες, όπως η αγκινάρα Ιερουσαλήμ, η ινουλίνη και γεωργικά υπολείμματα.
Ωστόσο, η αντίδραση που καταλύεται από το ένζυμο-κλειδί DAEάση είναι αναστρέψιμη και το ποσοστό μετατροπής είναι χαμηλό, γεγονός που οδηγεί στο υψηλό κόστος της παραγόμενης D-αλλουλόζης. Επιπλέον, τα περισσότερα από τα στελέχη που χρησιμοποιούνται στη σύνθεση της D-αλλουλόζης δεν είναι μικροοργανισμοί GRAS.
Επομένως, είναι εξαιρετικά σημαντική η δημιουργία μιας οικονομικά αποδοτικής και ασφαλούς πλατφόρμας για τη μαζική παραγωγή D-αλλουλόζης.
Οι στερεοεκλεκτικές προσθήκες αλδόλης που καταλύονται από αλδολάσες έχουν καταστεί βασικό εργαλείο στην ασύμμετρη σύνθεση CC ( Iturrate et al., 2010 ).
Από τα μέλη της οικογένειας των αλδολασών, οι αλδολάσες που εξαρτώνται από DHAP είναι οι πιο διαδεδομένες στη σύνθεση πολλών υδατανθρακικών ενώσεων που είναι δύσκολο να συντεθούν με παραδοσιακές χημικές μεθόδους ( Bosshart et al., 2013 ).
Υπάρχουν τέσσερις τύποι αλδολασών που εξαρτώνται από DHAP: η αλδολάση 1-φωσφορικής L-ραμνουλόζης (RhaD), η αλδολάση 1-φωσφορικής L-φουκουλόζης (FucA), η αλδολάση 1,6-διφωσφορικής D-φρουκτόζης (FruA) και η αλδολάση 1,6-διφωσφορικής D-ταγκατόζης (TagA).
Οι στερεοεκλεκτικές αντιδράσεις αλδόλης αυτών των τεσσάρων αλδολασών αλληλοσυμπληρώνονται. Θεωρητικά, μπορεί να παραχθεί ένα σύνολο τεσσάρων κετοζών εάν χρησιμοποιηθεί DHAP ως δότης και η ίδια αλδεΰδη ως δέκτης ( Gustavo, 2000 ).
Επομένως, οι αλδολάσες που εξαρτώνται από DHAP είναι εξαιρετικά κατάλληλες για τη σύνθεση διαφόρων σπάνιων σακχάρων (συμπεριλαμβανομένης της D-αλλουλόζης, της D-σορβόζης, της D-ταγκατόζης και της L-φρουκτόζης) λόγω της μοναδικής στερεοεκλεκτικότητάς τους ( Σχήμα 5 ; Brovetto et al., 2011 ; Dai et al., 2021
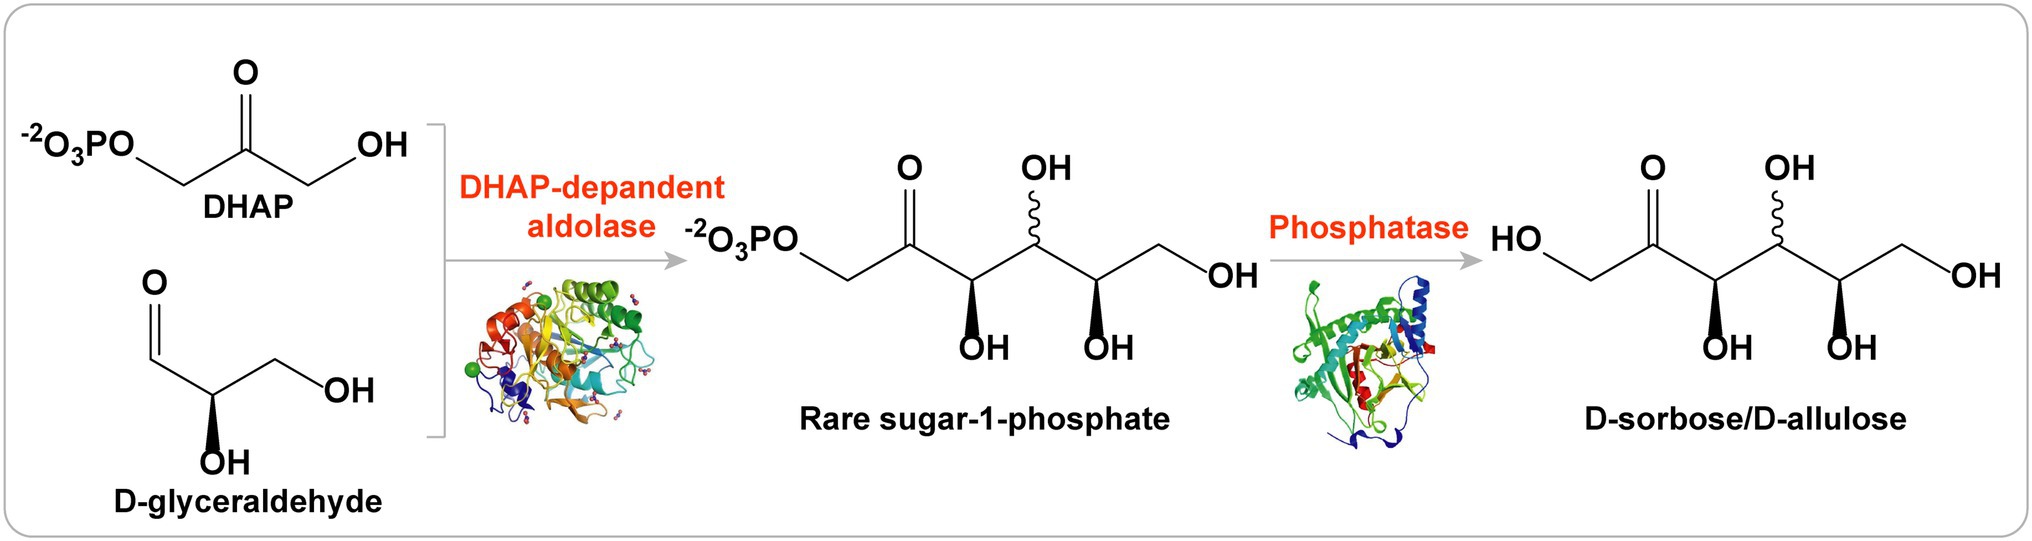
Σχήμα 5. Στρατηγική αλδολασών εξαρτώμενων από DHAP για την παραγωγή D-αλλουλόζης.
Βιοσύνθεση D-αλλουλόζης με RhaD αλδολάση, με δέκτη D-γλυκεραλδεΰδη
Ένα από τα κύρια μειονεκτήματα των στρατηγικών αλδολασών που εξαρτώνται από DHAP είναι ότι το υπόστρωμα δότη, DHAP, είναι πολύ ακριβό και ασταθές για σύνθεση μεγάλης κλίμακας ( Schümperli et al., 2007 ).
Ωστόσο, υπάρχουν πολλοί τρόποι σύνθεσης DHAP μέσω ενζυματικών στρατηγικών. Για παράδειγμα, το DHAP μπορεί να παραχθεί μέσω διυδροξυακετόνης (DHA), γλυκερίνης ή 3-φωσφορικής γλυκερίνης, ή μέσω μεταβολικών μονοπατιών από μια φθηνή πρώτη ύλη, όπως η γλυκόζη ή η γλυκερίνη ( Σχήμα 6 ; Sánchez-Moreno et al., 2004 ; Li et al., 2012 , 2015a ; Wei et al., 2015 ; Yang et al., 2015 , 2016 ).
Στο τεχνητά τροποποιημένο E. coli, η αντίδραση αλδόλης που καταλύεται από τη RhaD για τη σύνθεση σπάνιων σακχάρων (D-αλλουλόζης και D-σορβόζης) χρησιμοποίησε γλυκόζη ως πηγή άνθρακα, ενώ προστίθετο συνεχώς D-γλυκεραλδεΰδη στο θρεπτικό μέσο. Μετά τη βελτιστοποίηση των συνθηκών ζύμωσης, η απόδοση απομονωμένης D-αλλουλόζης και D-σορβόζης ήταν 0,21 mol/mol D-γλυκεραλδεΰδης ( Wei et al., 2015 ). Η D-αλλουλόζη και η D-σορβόζη παρήχθησαν σε ένα στέλεχος C. glutamicum GRAS με πρώτες ύλες γλυκόζη και D-γλυκεραλδεΰδη. Στελέχη ανασυνδυασμένου C. glutamicum που φέρουν RhaD και φωσφατάση φρουκτόζης (YqaB) διαπιστώθηκε ότι συσσωρεύουν 19,5 g/l D-σορβόζης και 13,4 g/l D-αλλουλόζης σε τροφοδοτούμενη ζύμωση ( Yang et al., 2015 ). Επιπλέον, παρήχθησαν D-αλλουλόζη και D-σορβόζη σε ένα ανασυνδυασμένο στέλεχος E. coli, το οποίο υπερεκφράζει την αλδολάση RhaD και YqaB μέσω ζύμωσης από γλυκερίνη. Μετά από 15 ώρες ζύμωσης, προσδιορίστηκε η συγκέντρωση D-σορβόζης (1,6 g/l) και D-αλλουλόζης (1,23 g/l) στο υπερκείμενο ( Li et al., 2015a ). Πρόσφατα, η ομάδα μας κατασκεύασε ένα αποτελεσματικό σύστημα για τη διαδοχική σύνθεση D-σορβόζης και D-αλλουλόζης ολόκληρων κυττάρων από γλυκερίνη και D-γλυκεραλδεΰδη, το οποίο κατά τη διάρκεια διαλείποντος βιομετασχηματισμού απέδωσε 15,3 g/l D-σορβόζης και 6,4 g/l D-αλλουλόζης ( Chen et al., 2020a ).
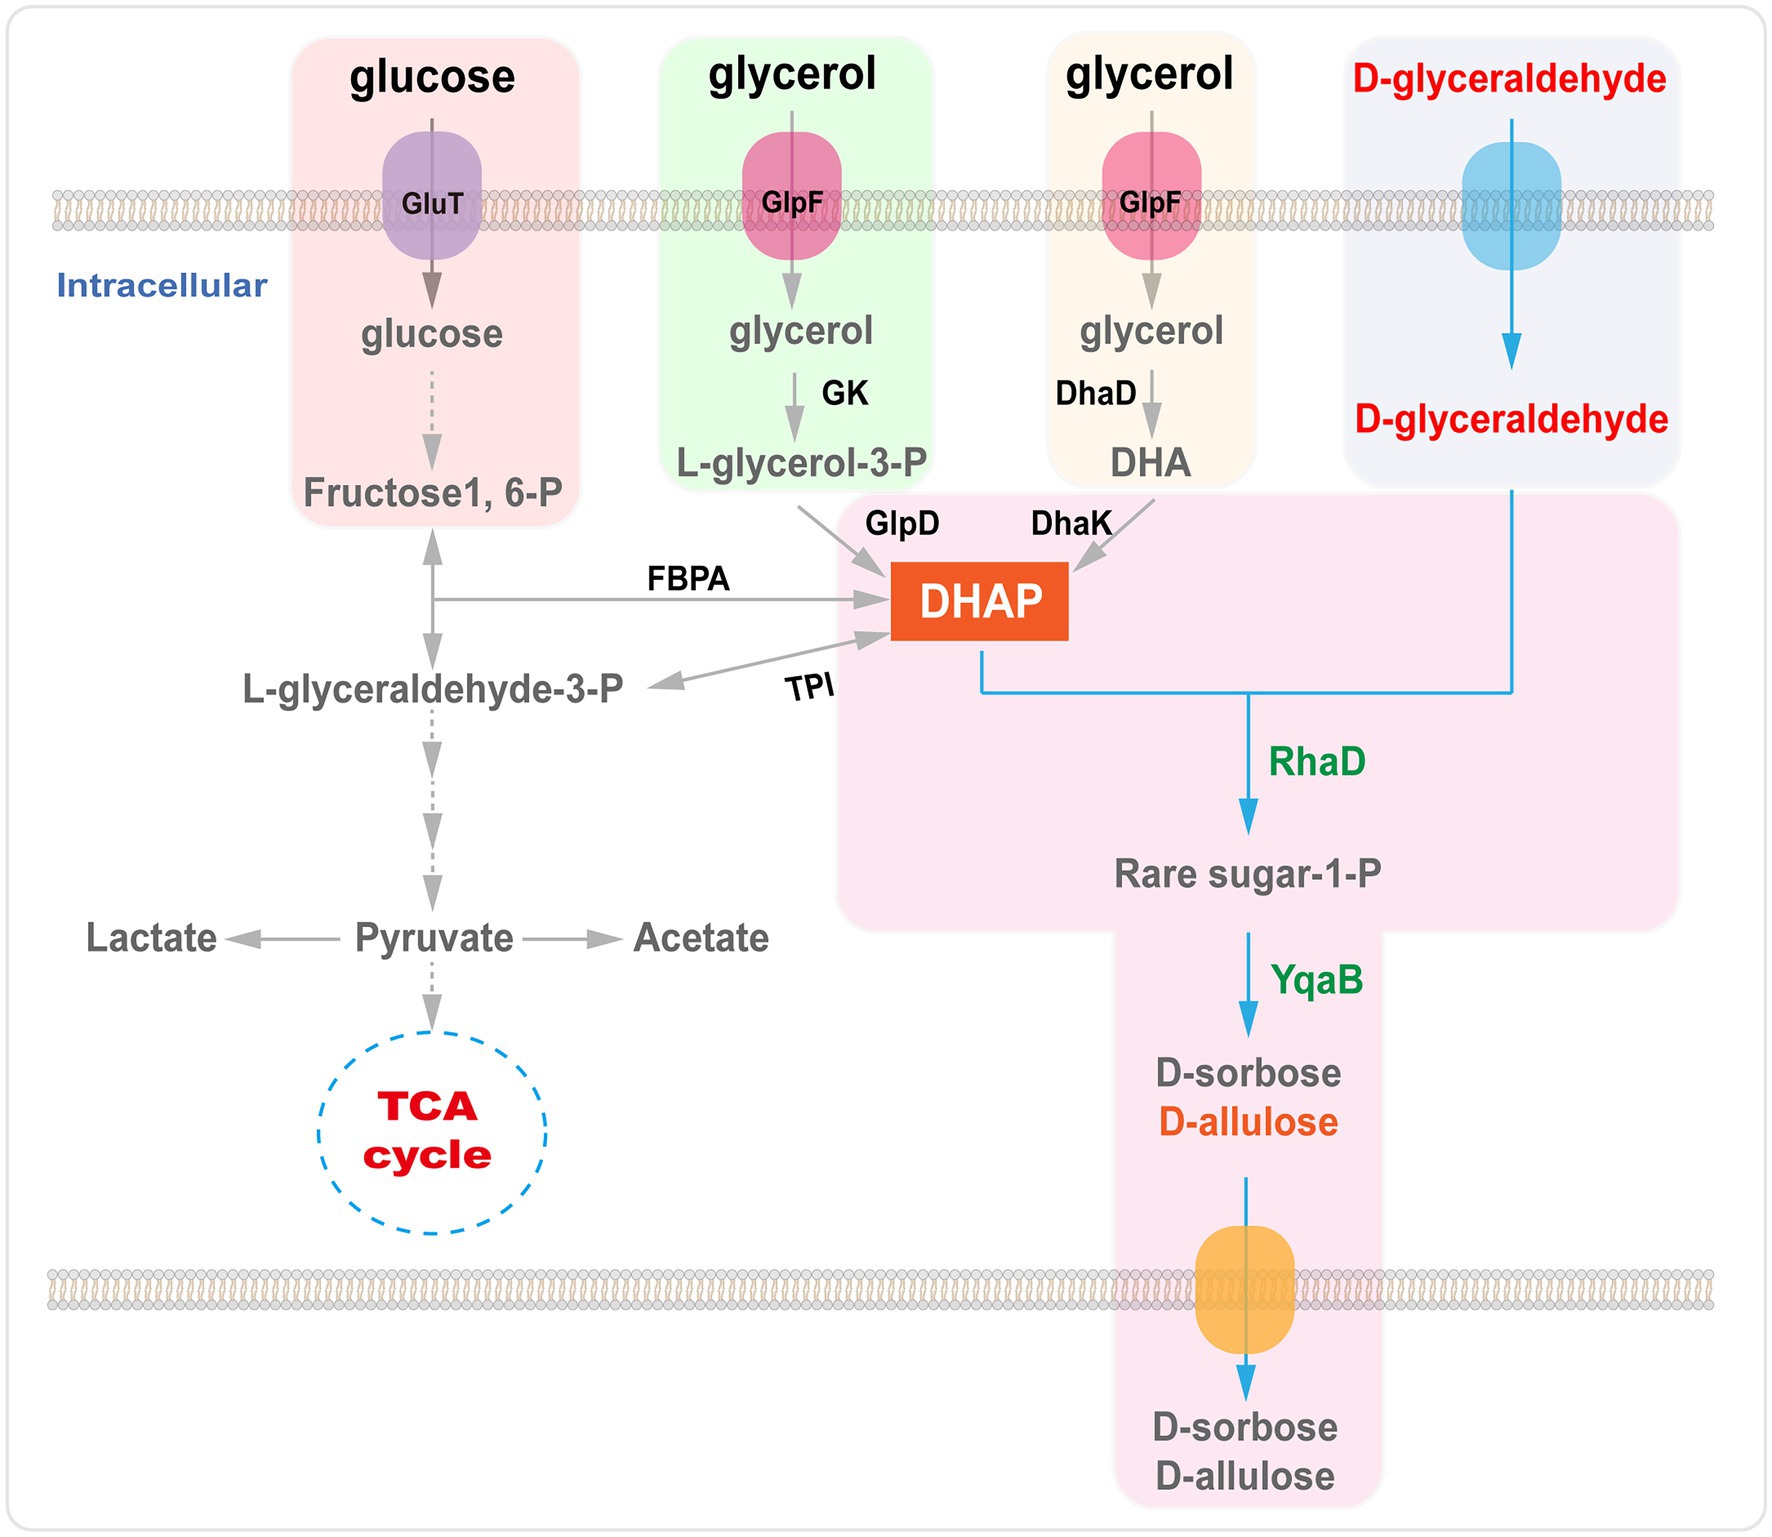
Εικόνα 6. Βιοσύνθεση της D-αλλουλόζης με τη χρήση της αλδολάσης RhaD από γλυκερόλη ή γλυκόζη. GlpF, μεταφορέας γλυκερόλης· GK, γλυκερολοκινάση· GlpD, αφυδρογονάση της γλυκερολο-3-φωσφορικής· DhaD, αφυδρογονάση της γλυκερόλης· DhaK, κινάσες της διυδροξυακετόνης· FBPA, αλδολάση της φρουκτοζο-1,6-διφωσφορικής· TPI, ισομεράση της τριοζοφωσφορικής· RhaD, αλδολάση της L-ραμνουλοζο-1-φωσφορικής· YqaB, φωσφατάση της φρουκτοζο-1-φωσφορικής.
Βιοσύνθεση της D-αλλουλόζης από γλυκερόλη ως μοναδικό υπόστρωμα
Μια μικροβιακή πλατφόρμα βασισμένη στην αλδολάση RhaD για τη σύνθεση της D-αλλουλόζης θα ήταν πολλά υποσχόμενη για παραγωγή μεγάλης κλίμακας. Η κύρια πρόκληση έγκειται στο υψηλό κόστος του υποστρώματος δότη DHAP και του μορίου δέκτη D-γλυκεραλδεΰδης. Ευτυχώς, το πρόβλημα της συσσώρευσης DHAP επιλύθηκε με τη χρήση γλυκερόλης, ενός φθηνού βιομηχανικού υποπροϊόντος, ως «πράσινης» πηγής άνθρακα. Έτσι, το επόμενο ερώτημα είναι ο εντοπισμός ενός νέου ενζύμου που μετατρέπει τη χαμηλής αξίας γλυκερόλη σε D-γλυκεραλδεΰδη. Απαιτείται μια αφυδρογονάση ή οξειδάση της γλυκερόλης που μπορεί να καταλύσει αποτελεσματικά τη μετατροπή της γλυκερόλης σε D-γλυκεραλδεΰδη.
Για την επίλυση αυτού του προβλήματος, η ομάδα μας δημιούργησε μια πλατφόρμα για την ολοκληρωμένη κυτταρική κασκαδική σύνθεση D-σορβόζης και D-αλλουλόζης, χρησιμοποιώντας γλυκερόλη ως μοναδικό υπόστρωμα. Σε αυτό το σύστημα ( Εικόνα 7 ) το υπόστρωμα δότης, η DHAP, παράγεται μέσω της οδού αφομοίωσης της γλυκερόλης, ενώ η ενδογενής DHAP παράγεται μέσω της υπερέκφρασης της γλυκερολοκινάσης (GK) και της οξειδάσης της γλυκερολοφωσφορικής (GPO). Ο δέκτης D-γλυκεραλδεΰδη παράγεται απευθείας από τη γλυκερόλη μέσω της οξειδάσης της αλδιτόλης του Streptomyces coelicolor A3 (AldO S.coe ). Στη συνέχεια, η RhaD καταλύει την αντίδραση αλδόλης μεταξύ DHAP και D-γλυκεραλδεΰδης, παράγοντας τη відповідη κετοζο-1-φωσφορική. Τελικά, η D-σορβόζη και η D-αλλουλόζη λαμβάνονται με την απομάκρυνση της φωσφορικής ομάδας μέσω της φωσφατάσης YqaB. Με αυτό το σύστημα, οι αποδόσεις παραγωγής D-σορβόζης και D-αλλουλόζης αυξήθηκαν περίπου 1,7 και 1,2 φορές αντίστοιχα μετά την υπερέκφραση υπεροξειδάσης (Prx02 ή KatE) για την εξάλειψη των βλαβερών επιδράσεων του H₂O₂. Συνολικά, λήφθηκαν 7,9 g/l D-σορβόζης και D-αλλουλόζης από γλυκερόλη, με συνολικό ποσοστό μετατροπής 17,7% ( Chen et al., 2020b ).
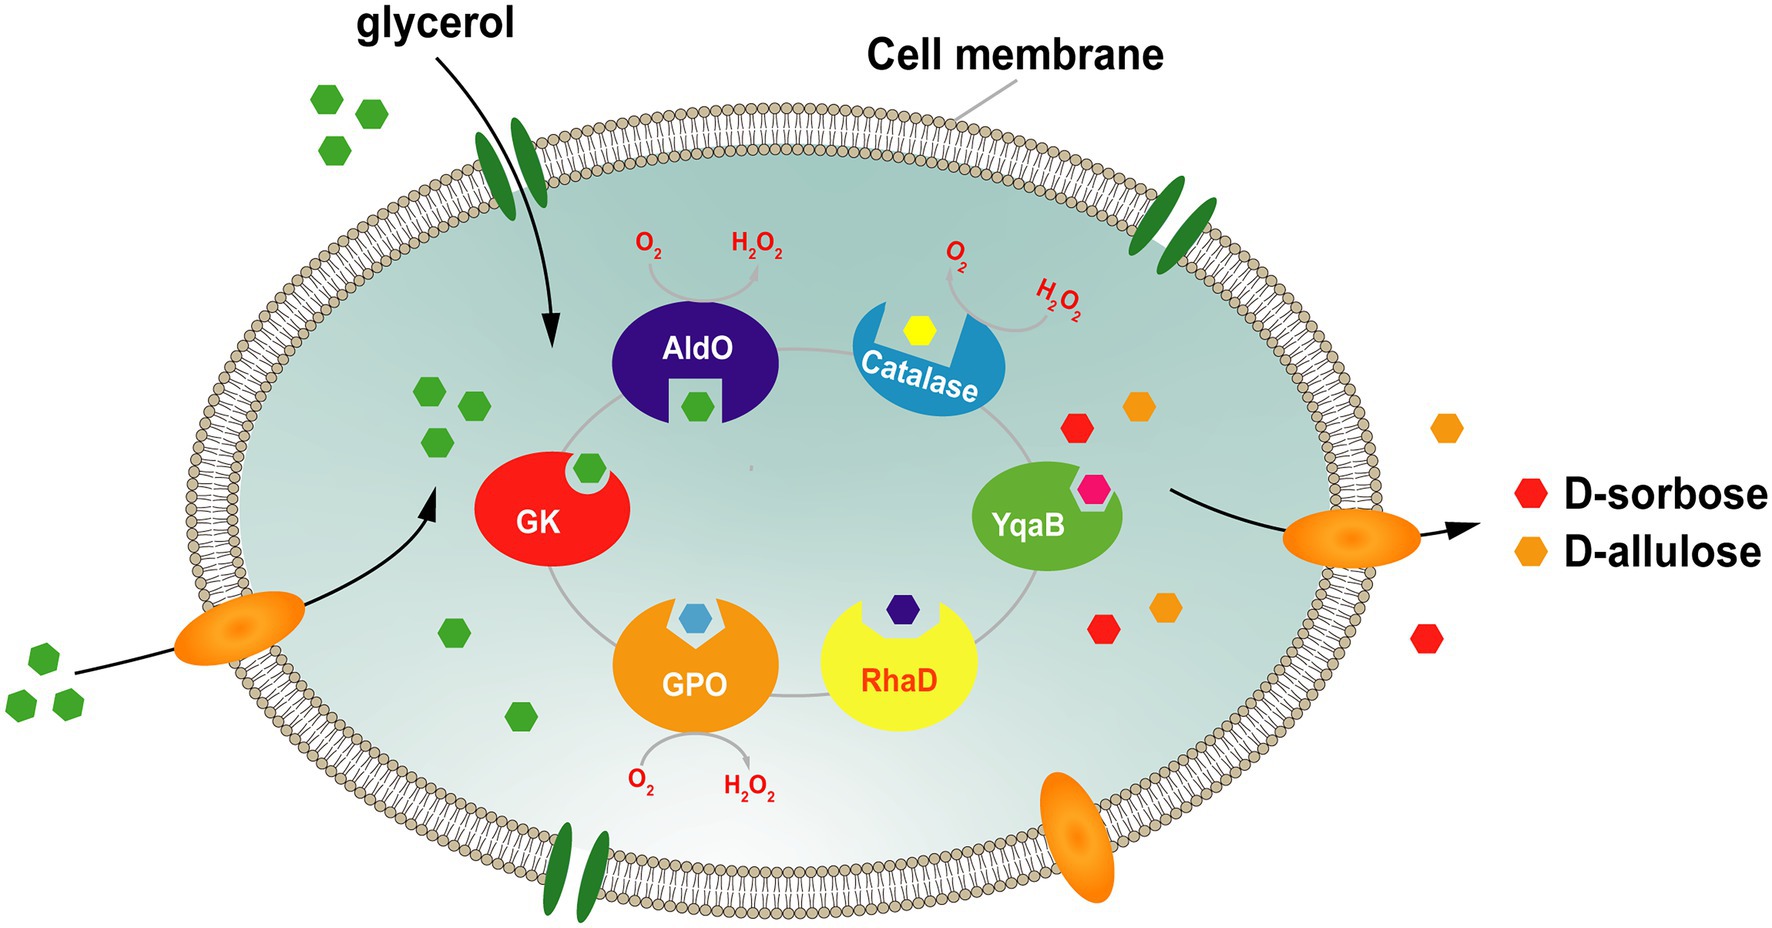
Εικόνα 7 . Στρατηγική για την ολοκληρωμένη κυτταρική σύνθεση D-σορβόζης και D-αλλουλόζης από γλυκερόλη. GK, γλυκερολοκινάση· GPO, οξειδάση της γλυκερόλης· AldO, οξειδάση της αλδιτόλης· RhaD, αλδολάση της L-ραμνουλοζο-1-φωσφορικής· YqaB, φωσφατάση της φρουκτοζο-1-φωσφορικής.
Η ομάδα μας κατασκεύασε επίσης ένα μονοσταδιακό πολυενζυμικό σύστημα για τη σύνθεση D-σορβόζης και D-αλλουλόζης από γλυκερόλη ως μοναδική πηγή άνθρακα ( Εικόνα 8 ). Εδώ, ενσωματώσαμε την όξινη φωσφατάση PhoN από το Shigella flexneri (PhoN-Sf) αντί για τις GK και YqaB, η οποία κατέλυσε τη φωσφορυλίωση της γλυκερόλης στο πρώτο στάδιο και βοήθησε στην ανακύκλωση της φωσφορικής ομάδας της κετοζο-1-φωσφορικής στο τελευταίο στάδιο, παρέχοντας ελεύθερα μόρια σπάνιων σακχάρων. Εισάγαμε την AldO S.coe στην παραπάνω πολυενζυμική κασκάδα για να συνθέσουμε αποκλειστικά D-σορβόζη και D-αλλουλόζη από την εύκολα προσβάσιμη γλυκερόλη. Τελικά, λάβαμε 14,8 g/L D-σορβόζης και D-αλλουλόζης από γλυκερόλη ( Li et al., 2020b ). Η παραπάνω στρατηγική αποτελεί μια πολύ χρήσιμη και χαμηλού κόστους προσέγγιση και για την παραγωγή διαφόρων άλλων σπάνιων σακχάρων. Με λίγα λόγια, η βιοσύνθεση της D-αλλουλόζης μέσω ζύμωσης που βασίζεται σε αλδολάσες εξαρτώμενες από DHAP είναι πολύ ελπιδοφόρα. Θα ήταν πιο κερδοφόρο να κατασκευαστεί ένα κυτταρικό εργοστάσιο βασισμένο σε μια στρατηγική αλδολάσης εξαρτώμενης από DHAP για τη σύνθεση της D-αλλουλόζης.
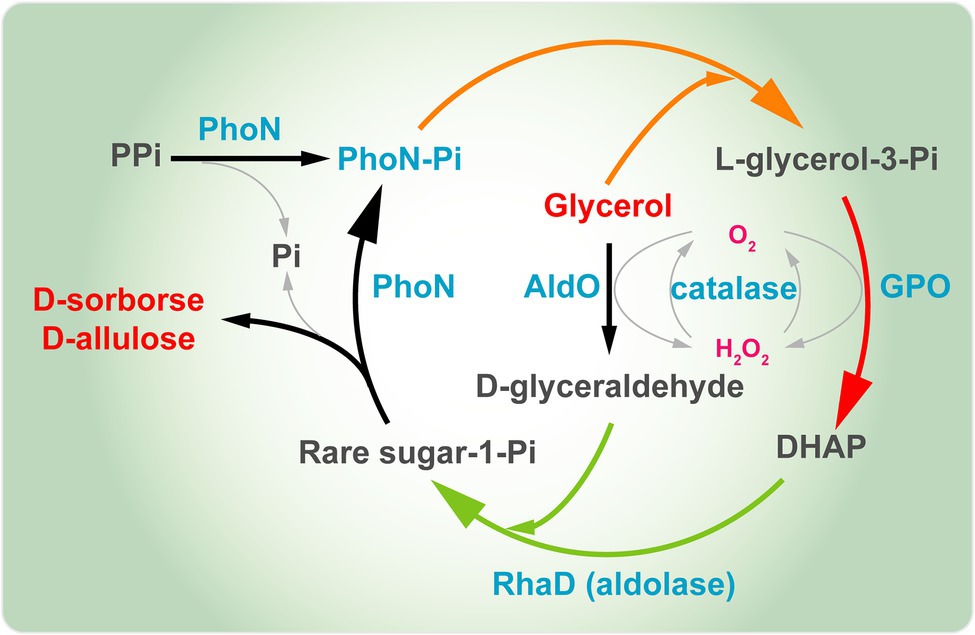
Εικόνα 8 . Πολυενζυμική σύνθεση D-σορβόζης και D-αλλουλόζης από γλυκερόλη. PhoN, όξινη φωσφατάση· GPO, οξειδάση της γλυκερόλης· AldO, οξειδάση της αλδιτόλης· RhaD, αλδολάση της L-ραμνουλοζο-1-φωσφορικής· DHAP, φωσφορική διυδροξυακετόνη.
Θερμοδυναμικά ελεγχόμενη παραγωγή της D-αλλουλόζης με βάση τη στρατηγική φωσφορυλίωσης-αποφωσφορυλίωσης
Στην πραγματικότητα, οι παραπάνω στρατηγικές δεν μπορούν ακόμη να καλύψουν τη ζήτηση της βιομηχανίας τροφίμων για D-αλλουλόζη. Επομένως, είναι ενδιαφέρον να αναπτυχθεί μια νέα στρατηγική για την παραγωγή D-αλλουλόζης που θα περιλαμβάνει εξαιρετικά αποτελεσματική και χαμηλού κόστους πράσινη βιοπαραγωγή. Πρόσφατα, ο You και οι συνεργάτες του δημιούργησαν ένα in vitro συνθετικό ενζυμικό βιοσύστημα για την παραγωγή D-αλλουλόζης από φθηνό άμυλο, βασισμένο στη «θερμοδυναμικά ελεγχόμενη στρατηγική» ( Εικόνα 9 ). Αυτό το in vitro βιοσύστημα περιελάμβανε πέντε κύρια ένζυμα, και οι αντιδράσεις πραγματοποιούνται ως εξής: (1) η μαλτοδεξτρίνη (παράγωγο του αμύλου) φωσφορυλιώθηκε για την παραγωγή φωσφορικής γλυκόζης-1 (G1P) μέσω της α-γλυκανο-φωσφορυλάσης (αGP), με χρήση φωσφορικού ως συνυποστρώματος. (2) Η G1P μετατράπηκε σε φωσφορική γλυκόζη-6 (G6P), κάτι που καταλύθηκε από τη φωσφογλυκομουτάση (PGM). (3) Η G6P μετατράπηκε σε φωσφορική φρουκτόζη-6 (F6P), που καταλύθηκε από τη φωσφογλυκο-ισομεράση (PGI). (4) Η επιμερισμός της F6P είχε ως αποτέλεσμα την παραγωγή φωσφορικής D-αλλουλόζης-6 (A6P), η οποία καταλύθηκε από την 3-επιμεράση της φωσφορικής D-αλλουλόζης-6 (A6PE). (5) Η αποφωσφορυλίωση της A6P οδήγησε στην παραγωγή D-αλλουλόζης και φωσφορικού, η οποία καταλύθηκε από τη φωσφατάση της φωσφορικής D-αλλουλόζης-6 (A6PP). Επιπλέον, τα άλλα τέσσερα βοηθητικά ένζυμα [ισοαμυλάση (IA), 4-α-γλυκανοτρανσφεράση (4GT), πολυφωσφορική γλυκοκινάση (PPGK) και γλυκοζο-ισομεράση (GI)] προστέθηκαν στο σύστημα αντίδρασης σε διαφορετικά χρονικά σημεία για να επιτευχθεί η πλήρης χρήση της μαλτοδεξτρίνης για την παραγωγή D-αλλουλόζης. Σε αυτό το βιοσύστημα, η Gibbs ενέργεια της αποφωσφορυλίωσης της A6P σε D-αλλουλόζη είναι -15,5 kJ/mol, η οποία είναι μη αναστρέψιμη, γεγονός που υποδεικνύει ότι το στάδιο της αποφωσφορυλίωσης που απαιτείται για την παραγωγή D-αλλουλόζης είναι θερμοδυναμικά ευνοϊκό και μονόδρομο, οδηγώντας τη συνολική αντίδραση προς την ολοκλήρωση. Μετά τη βελτιστοποίηση των συνθηκών αντίδρασης, η απόδοση παραγωγής D-αλλουλόζης από 10 και 50 g/l αμύλου έφτασε το 88,2% και 79,2% αντίστοιχα ( Li et al., 2021 ). Συνολικά, αυτή η θερμοδυναμικά ελεγχόμενη στρατηγική προσφέρει μια ελπιδοφόρα εναλλακτική λύση για την οικονομικά αποδοτική παραγωγή D-αλλουλόζης. Επειδή το σύστημα περιλαμβάνει πολλά ένζυμα και τα στάδια καθαρισμού των ενζύμων είναι επίπονα, η παραπάνω στρατηγική δεν μπορεί ακόμη να ικανοποιήσει τις ανάγκες εκβιομηχάνισης.
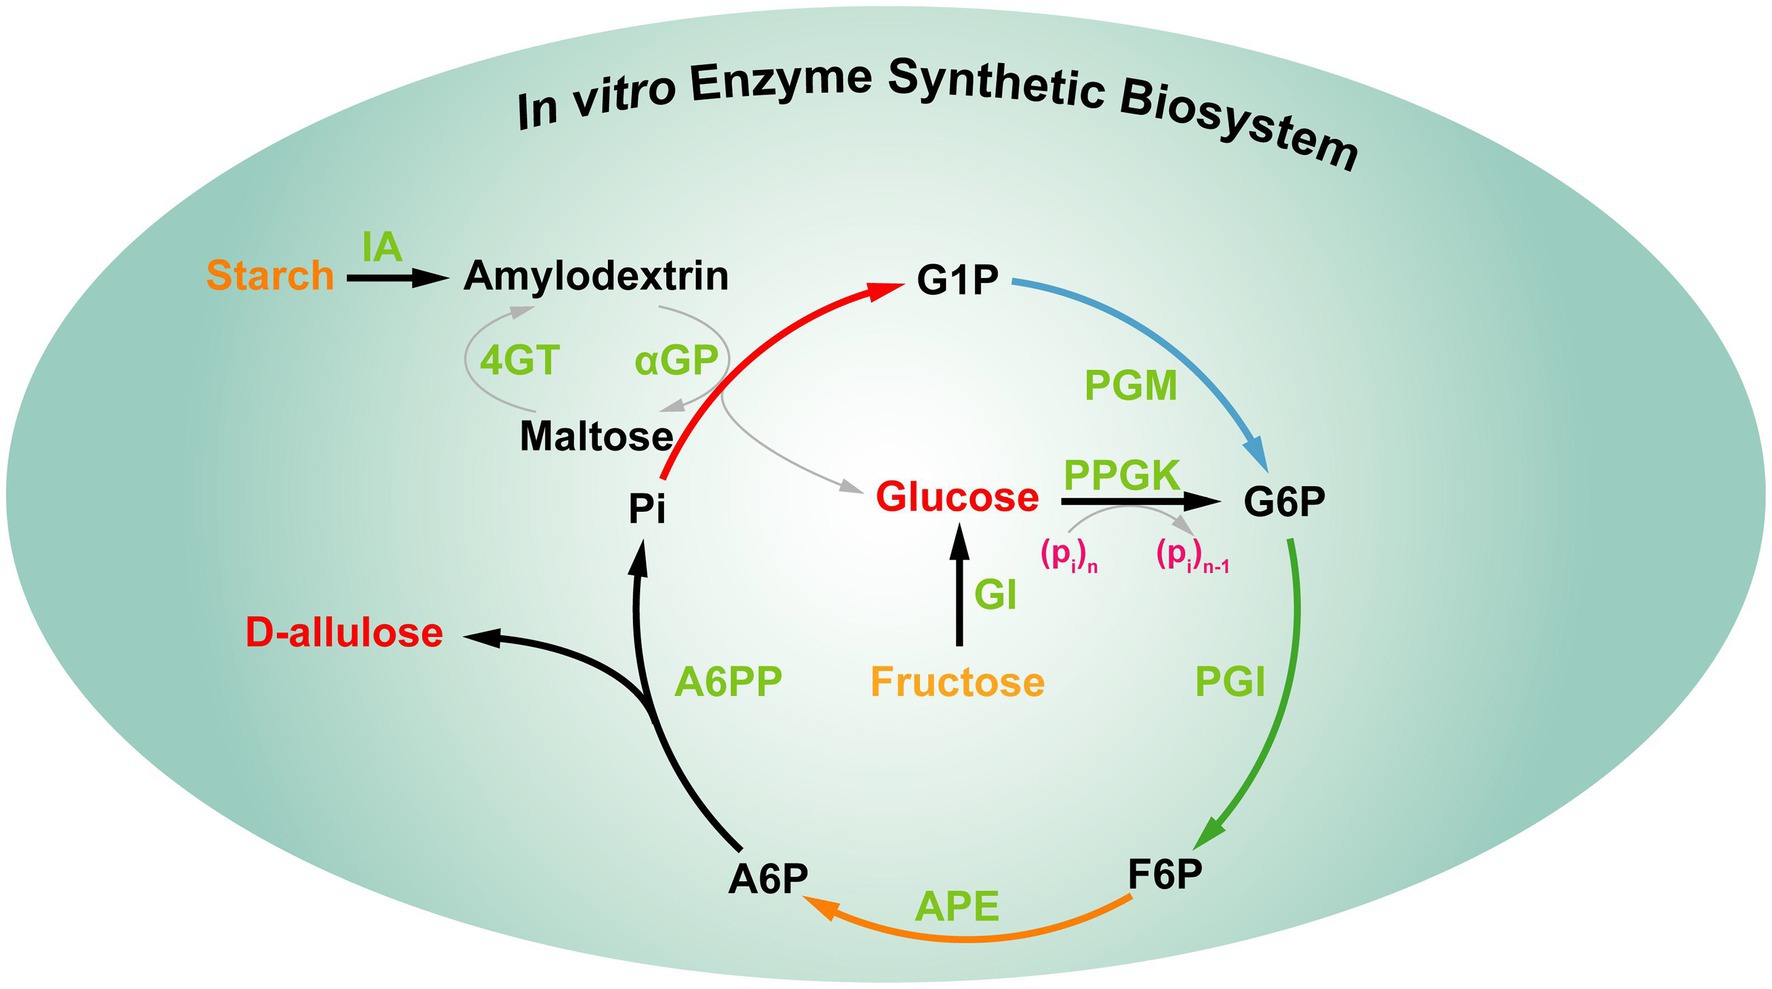
Εικόνα 9 . Πολυενζυμική in vitro σύνθεση D-αλλουλόζης από άμυλο. IA, ισοαμυλάση· 4GT, 4-α-γλυκανοτρανσφεράση· αGP, α-γλυκανο-φωσφορυλάση· PGM, φωσφογλυκομουτάση· PPGK, πολυφωσφορική γλυκοκινάση· PGI, φωσφογλυκο-ισομεράση· GI, γλυκοζο-ισομεράση· APE, 3-επιμεράση της φωσφορικής D-αλλουλόζης-6· A6PP, φωσφατάση της φωσφορικής D-αλλουλόζης-6· G1P, φωσφορική γλυκόζη-1· G6P, φωσφορική γλυκόζη-6· F6P, φωσφορική φρουκτόζη-6· A6P, φωσφορική D-αλλουλόζη-6.
Περίληψη και μελλοντικές προοπτικές
Η πιο συνηθισμένη μέθοδος παραγωγής D-αλλουλόζης βασίζεται στη στρατηγική Izumoring, η οποία περιορίζεται από τη θερμοδυναμική ισορροπία, με αποτέλεσμα χαμηλό ποσοστό μετατροπής και σχετικά υψηλό κόστος σύνθεσης.
Επομένως, πρέπει να ανακαλυφθούν νέες και ισχυρές οικογένειες ενζύμων DTEάσης. Επιπλέον, η στρατηγική κατευθυνόμενης εξέλιξης (Zhang et al., 2016a; Zhu et al., 2019a) ή η ακινητοποίηση ενζύμων (Ran et al., 2019; Wong et al., 2020)
Η βελτίωση της καταλυτικής απόδοσης της DTEάσης θα είναι πολύ χρήσιμη. Για τη στρατηγική της αλδολάσης που εξαρτάται από DHAP, η D-αλλουλόζη και η D-σορβόζη παράγονται ταυτόχρονα με την RhaD, με δέκτη τη D-γλυκεραλδεΰδη. Για τη βελτίωση της στερεοεπιλεκτικότητας των αλδολασών, εφαρμόζονται πολλές προηγμένες τεχνικές και μέθοδοι, συμπεριλαμβανομένης της κατευθυνόμενης εξέλιξης (d’Oelsnitz and Ellington, 2018; Shepelin et al., 2018; Currin et al., 2021), τεχνικές διαλογής υψηλής απόδοσης (Ung et al., 2018; Rienzo et al., 2021), και ορθολογική μηχανική (Damborsky and Brezovsky, 2014; Windle et al., 2014; Kim et al., 2020), που είναι εφαρμόσιμες.
Είναι προφανές ότι η θερμοδυναμικά ελεγχόμενη στρατηγική είναι μια ελπιδοφόρα μέθοδος για την παραγωγή D-αλλουλόζης. Μια μελλοντική κατεύθυνση θα ήταν η κατασκευή ενός μικροβιακού κυτταρικού εργοστασίου που θα εφαρμόζει μια τέτοια προσέγγιση. Πολλά μεταβολικά εργαλεία, όπως το CRISPR/Cas9, μπορούν να συμβάλουν στη βιομηχανική παραγωγή της D-αλλουλόζης (Wu et al., 2019; Nishida and Kondo, 2021), η αυτοσυναρμολόγηση (Liu et al., 2019; Lange and Polizzi, 2021), και ο δυναμικός έλεγχος (Hartline et al., 2021; Zhu et al., 2021).
Ελπίζουμε ότι η D-αλλουλόζη θα καταστεί προσιτή στους καθημερινούς καταναλωτές στο εγγύς μέλλον.
Συνεισφορές συγγραφέων
Ο ZC πραγματοποίησε την επεξεργασία των δεδομένων και τη συγγραφή του αρχικού σχεδίου. Ο X-DG συμμετείχε στην οπτικοποίηση, τη διερεύνηση και την επίβλεψη. Ο ZL πραγματοποίησε τη συγγραφή, τη διόρθωση και την επιμέλεια. Όλοι οι συγγραφείς συνέβαλαν στο άρθρο και ενέκριναν την υποβληθείσα έκδοση.
Χρηματοδότηση
Η εργασία αυτή υποστηρίχθηκε από το Εθνικό Ίδρυμα Φυσικών Επιστημών της Κίνας (αριθμοί: 32171475, 31971216), το Επιστημονικό Ίδρυμα Μεταδιδακτορικών Ερευνών της Κίνας (αριθμός: 2021M691285), το Μεγάλο Έργο Επιστημονικής και Τεχνολογικής Καινοτομίας της Επαρχίας Shandong (αριθμός: 2019JZZY011006), το Ίδρυμα Φυσικών Επιστημών της Επαρχίας Jiangsu (αριθμός: BK20210465), καθώς και το Πρόγραμμα Εισαγωγής Πανεπιστημιακών Ταλέντων Εξειδικευμένων Τομέων (αριθμός: 111-2-06).
Σύγκρουση συμφερόντων
Οι συγγραφείς δηλώνουν ότι η έρευνα διεξήχθη απουσία εμπορικών ή οικονομικών σχέσεων που θα μπορούσαν να θεωρηθούν ως πιθανή σύγκρουση συμφερόντων.
Σημείωση του εκδότη
Όλοι οι ισχυρισμοί που διατυπώνονται στο παρόν άρθρο ανήκουν αποκλειστικά στους συγγραφείς και δεν αντανακλούν απαραίτητα εκείνους των συνδεδεμένων οργανισμών τους, του εκδότη, των επιμελητών και των αξιολογητών. Ο εκδότης δεν εγγυάται ούτε εγκρίνει κανένα προϊόν που αξιολογείται στο άρθρο ή ισχυρισμό που διατυπώνεται από τον κατασκευαστή του.
Ευχαριστίες
Ευχαριστούμε τη Zhou Xiaoman (Πανεπιστήμιο Jiangnan) για το σχεδιάγραμμα.
Βιβλιογραφικές αναφορές
Basu, A., Basu, R., Shah, P., Vella, A., Johnson, C. M., Jensen, M., et al. (2001). Ο σακχαρώδης διαβήτης τύπου 2 βλάπτει τη σπλαχνική πρόσληψη γλυκόζης, αλλά δεν μεταβάλλει την εντερική απορρόφηση γλυκόζης κατά την εντερική σίτιση με γλυκόζη: περαιτέρω απόδειξη για ελάττωμα στη δραστηριότητα της ηπατικής γλυκοκινάσης. Diabetes 50, 1351–1362. doi: 10.2337/diabetes.50.6.1351
Bilal, M., Iqbal, H. M. N., Hu, H., Wang, W., and Zhang, X. (2018). Metabolic engineering pathways for rare sugars biosynthesis, physiological functionalities, and applications-a review. Crit. Rev. Food Sci. Nutr. 58, 2768–2778. doi: 10.1080/10408398.2017.1341385
Bosshart, A., Panke, S., and Bechtold, M. (2013). Systematic optimization of interface interactions increases the thermostability of a multimeric enzyme. Angew. Chem. Int. Ed. Engl. 52, 9673–9676. doi: 10.1002/anie.201304141
Brovetto, M., Gamenara, D., Méndez, P. S., and Seoane, G. A. (2011). C-C bond-forming lyases in organic synthesis. Chem. Rev. 111, 4346–4403. doi: 10.1021/cr100299p
Castro-Muñoz, R., Correa-Delgado, M., Córdova-Almeida, R., Lara-Nava, D., Chávez-Muñoz, M., Velásquez-Chávez, V. F., et al. (2022). Natural sweeteners: sources, extraction and current uses in foods and food industries. Food Chem. 370:130991. doi: 10.1016/j.foodchem.2021.130991
Chen, J., Huang, W., Zhang, T., Lu, M., and Jiang, B. (2019). Anti-obesity potential of rare sugar D-psicose by regulating lipid metabolism in rats. Food Funct. 10, 2417–2425. doi: 10.1039/c8fo01089g
Chen, Z., Li, Z., Li, F., Wang, N., and Gao, X.-D. (2020b). Characterization of alditol oxidase from Streptomyces coelicolor and its application in the production of rare sugars. Bioorg. Med. Chem. 28:115464. doi: 10.1016/j.bmc.2020.115464
Chen, Z., Li, Z., Li, F., Wang, M., Wang, N., and Gao, X.-D. (2020a). Cascade synthesis of rare ketoses by whole cells based on L-rhamnulose-1-phosphate aldolase. Enzym. Microb. Technol. 133:109456. doi: 10.1016/j.enzmictec.2019.109456
Chen, X., Wang, W., Xu, J., Yuan, Z., Yuan, T., Zhang, Y., et al. (2017). Production of D-psicose from D-glucose by co-expression of D-psicose 3-epimerase and xylose isomerase. Enzym. Microb. Technol. 105, 18–23. doi: 10.1016/j.enzmictec.2017.06.003
Chen, J., Zhu, Y., Fu, G., Song, Y., Jin, Z., Sun, Y., et al. (2016). High-level intra- and extra-cellular production of D-psicose 3-epimerase via a modified xylose-inducible expression system in Bacillus subtilis. J. Ind. Microbiol. Biotechnol. 43, 1577–1591. doi: 10.1007/s10295-016-1819-6
Chung, Y. M., Hyun Lee, J., Youl Kim, D., Hwang, S. H., Hong, Y. H., Kim, S. B., et al. (2012). Dietary D-psicose reduced visceral fat mass in high-fat diet-induced obese rats. J. Food Sci. 77, H53–H58. doi: 10.1111/j.1750-3841.2011.02571.x
Currin, A., Parker, S., Robinson, C. J., Takano, E., Scrutton, N. S., and Breitling, R. (2021). The evolving art of creating genetic diversity: From directed evolution to synthetic biology. Biotechnol. Adv. 50:107762. doi: 10.1016/j.biotechadv.2021.107762
Dai, Y., Zhang, J., Jiang, B., Zhang, T., and Chen, J. (2021). New strategy for rare sugars biosynthesis: Aldol reactions using dihydroxyacetone phosphate (DHAP)-dependent aldolases. Food Biosci. 44:101377. doi: 10.1016/j.fbio.2021.101377
Damborsky, J., and Brezovsky, J. (2014). Computational tools for designing and engineering enzymes. Curr. Opin. Chem. Biol. 19, 8–16. doi: 10.1016/j.cbpa.2013.12.003
d’Oelsnitz, S., and Ellington, A. (2018). Continuous directed evolution for strain and protein engineering. Curr. Opin. Biotechnol. 53, 158–163. doi: 10.1016/j.copbio.2017.12.020
Doner, L. W. (1979). Isomerization of D-fructose by base: liquid-chromatographic evaluation and the isolation of D-psicose. Carbohydr. Res. 70, 209–216. doi: 10.1016/S0008-6215(00)87101-3
Granström, T. B., Takata, G., Tokuda, M., and Izumori, K. (2004). Izumoring: A novel and complete strategy for bioproduction of rare sugars. J. Biosci. Bioeng. 97, 89–94. doi: 10.1016/S1389-1723(04)70173-5
Grassi, B., Onetto, M. T., Zapata, Y., Jofré, P., and Echeverría, G. (2021). Lower versus standard sucrose dose for treating hypoglycemia in patients with type 1 diabetes mellitus in therapy with predictive low glucose suspend (PLGS) augmented insulin pumps: a randomized crossover trial in Santiago, Chile. Diabetes Metab. Syndr. Clin. Res. Rev. 15, 695–701. doi: 10.1016/j.dsx.2021.03.017
Guerrero-Wyss, M., Durán Agüero, S., and Angarita Dávila, L. (2018). D-Tagatose is a promising sweetener to control glycaemia: A new functional food. Biomed. Res. Int. 2018:8718053. doi: 10.1155/2018/8718053
Gustavo, S. (2000). Enzymatic C-C bond-forming reactions in organic synthesis. Curr. Org. Chem. 4, 283–304. doi: 10.2174/1385272003376283
Han, Y., Han, H. J., Kim, A. H., Choi, J. Y., Cho, S. J., Park, Y. B., et al. (2016). D-Allulose supplementation normalized the body weight and fat-pad mass in diet-induced obese mice via the regulation of lipid metabolism under isocaloric fed condition. Mol. Nutr. Food Res. 60, 1695–1706. doi: 10.1002/mnfr.201500771
Hartline, C. J., Schmitz, A. C., Han, Y., and Zhang, F. (2021). Dynamic control in metabolic engineering: theories, tools, and applications. Metab. Eng. 63, 126–140. doi: 10.1016/j.ymben.2020.08.015
Hayakawa, M., Hira, T., Nakamura, M., Iida, T., Kishimoto, Y., and Hara, H. (2018). Secretion of GLP-1 but not GIP is potently stimulated by luminal D-Allulose (D-Psicose) in rats. Biochem. Biophys. Res. Commun. 496, 898–903. doi: 10.1016/j.bbrc.2018.01.128
Hayashi, N., Iida, T., Yamada, T., Okuma, K., Takehara, I., Yamamoto, T., et al. (2010). Study on the postprandial blood glucose suppression effect of D-psicose in borderline diabetes and the safety of long-term ingestion by normal human subjects. Biosci. Biotechnol. Biochem. 74, 510–519. doi: 10.1271/bbb.90707
He, W., Jiang, B., Mu, W., and Zhang, T. (2016). Production of D-Allulose with D-psicose 3-epimerase expressed and displayed on the surface of Bacillus subtilis spores. J. Agric. Food Chem. 64, 7201–7207. doi: 10.1021/acs.jafc.6b03347
Herling, A. W., Burger, H.-J., Schwab, D., Hemmerle, H., Below, P., and Schubert, G. (1998). Pharmacodynamic profile of a novel inhibitor of the hepatic glucose-6-phosphatase system. Am. J. Phys. 274, G1087–G1093. doi: 10.2337/diabetes.47.5.85
Hoshikawa, H., Kamitori, K., Indo, K., Mori, T., Kamata, M., Takahashi, T., et al. (2018). Combined treatment with D-allose, docetaxel and radiation inhibits the tumor growth in an in vivo model of head and neck cancer. Oncol. Lett. 15, 3422–3428. doi: 10.3892/ol.2018.7787
Hossain, A., Yamaguchi, F., Matsuo, T., Tsukamoto, I., Toyoda, Y., Ogawa, M., et al. (2015). Rare sugar D-allulose: potential role and therapeutic monitoring in maintaining obesity and type 2 diabetes mellitus. Pharmacol. Therapeut. 155, 49–59. doi: 10.1016/j.pharmthera.2015.08.004
Iida, T., Kishimoto, Y., Yoshikawa, Y., Hayashi, N., Okuma, K., Tohi, M., et al. (2008). Acute D-psicose administration decreases the glycemic responses to an oral maltodextrin tolerance test in normal adults. J. Nutr. Sci. Vitaminol. 54, 511–514. doi: 10.3177/jnsv.54.511
Itoh, H., Sato, T., and Izumori, K. (1995). Preparation of D-psicose from D-fructose by immobilized D-tagatose 3-epimerase. J. Ferment. Bioeng. 79, 184–185. doi: 10.1016/0922-338X(95)94091-5
Iturrate, L., Sánchez-Moreno, I., Oroz-Guinea, I., Pérez-Gil, J., and García-Junceda, E. (2010). Preparation and characterization of a bifunctional aldolase/kinase enzyme: a more efficient biocatalyst for C-C bond formation. Chemistry 16, 4018–4030. doi: 10.1002/chem.200903096
Iwasaki, Y., Sendo, M., Dezaki, K., Hira, T., Sato, T., Nakata, M., et al. (2018). GLP-1 release and vagal afferent activation mediate the beneficial metabolic and chronotherapeutic effects of D-allulose. Nat. Commun. 9:113. doi: 10.1038/s41467-017-02488-y
Izumori, K. (2006). Izumoring: a strategy for bioproduction of all hexoses. J. Biotechnol. 124, 717–722. doi: 10.1016/j.jbiotec.2006.04.016
Jia, M., Mu, W., Chu, F., Zhang, X., Jiang, B., Zhou, L. L., et al. (2014). A D-psicose 3-epimerase with neutral pH optimum from Clostridium bolteae for D-psicose production: cloning, expression, purification, and characterization. Appl. Microbiol. Biotechnol. 98, 717–725. doi: 10.1007/s00253-013-4924-8
Kanasaki, A., Jiang, Z., Mizokami, T., Shirouchi, B., Iida, T., Nagata, Y., et al. (2019). D-allulose alters serum cholesterol levels partly via reducing serum pcsk9 levels in hamsters. Atherosclerosis 287:e201. doi: 10.1016/j.atherosclerosis.2019.06.611
Khan, S. A., Verma, P., Ur Rahman, L., and Parasharami, V. A. (2021). “Chapter 13 – Exploration of biotechnological studies in low-calorie sweetener Stevia rebaudiana: present and future prospects,” in Medicinal and Aromatic Plants: Expanding Their Horizons Through Omics. eds. T. Aftab and K. R. Hakeem (Academic Press), 289–324.
Kim, H.-J., Hyun, E.-K., Kim, Y.-S., Lee, Y.-J., and Oh, D.-K. (2006). Characterization of an agrobacterium tumefaciens D-psicose 3-epimerase that converts D-fructose to D-psicose. Appl. Environ. Microbiol. 72, 981–985. doi: 10.1128/AEM.72.2.981-985.2006
Kim, S.-E., Kim, S. J., Kim, H.-J., and Sung, M.-K. (2017). Η D-ψίκωση, ένα υποκατάστατο ζάχαρης, καταστέλλει την εναπόθεση σωματικού λίπους τροποποιώντας τα δίκτυα της φλεγμονώδους απόκρισης και του μεταβολισμού των λιπιδίων σε ποντίκια C57BL/6J-ob/ob. J. Funct. Foods 28, 265–274. doi: 10.1016/j.jff.2016.11.029
Kim, T., Stogios, P. J., Khusnutdinova, A. N., Nemr, K., Skarina, T., Flick, R., et al. (2020). Ορθολογικός σχεδιασμός αλδολασών 2-δεοξυριβόζης-5-φωσφορικής για τη βιοσύνθεση της (R)-1,3-βουτανοδιόλης. J. Biol. Chem. 295, 597–609. doi: 10.1074/jbc.RA119.011363
Kimura, T., Kanasaki, A., Hayashi, N., Yamada, T., Iida, T., Nagata, Y., et al. (2017). Η D-αλλουλόζη ενισχύει τη μεταγευματική οξείδωση του λίπους σε υγιείς ανθρώπους. Nutrition 43–44, 16–20. doi: 10.1016/j.nut.2017.06.007
Lai, W. T., Khong, N. M. H., Lim, S. S., Hee, Y. Y., Sim, B. I., Lau, K. Y., et al. (2017). Μια ανασκόπηση: τροποποιημένα γεωργικά υποπροϊόντα για την ανάπτυξη και τον εμπλουτισμό τροφίμων και θρεπτικών ουσιών. Trends Food Sci. Technol. 59, 148–160. doi: 10.1016/j.tifs.2016.11.014
Lange, O. J., and Polizzi, K. M. (2021). Click it or stick it: ομοιοπολικές και μη ομοιοπολικές μέθοδοι για την αυτοσυναρμολόγηση πρωτεϊνών. Curr. Opin. Syst. Biol. 28:100374. doi: 10.1016/j.coisb.2021.100374
Lee, D., Han, Y., Kwon, E. Y., and Choi, M. S. (2020). Η D-αλλουλόζη βελτιώνει τη μεταβολική δυσλειτουργία σε ποντίκια C57BL/KsJ-db/db. Molecules 25:3656. doi: 10.3390/molecules25163656
Li, A., Cai, L., Chen, Z., Wang, M., Wang, N., Nakanishi, H., et al. (2017). Πρόσφατες εξελίξεις στη σύνθεση σπάνιων σακχάρων με τη χρήση αλδολασών εξαρτώμενων από DHAP. Carbohydr. Res. 452, 108–115. doi: 10.1016/j.carres.2017.10.009
Li, Z., Cai, L., Wei, M., and Wang, P. G. (2012). Σύνθεση κετοζών με τη χρήση τεσσάρων ενζύμων σε μία αντίδραση (one-pot) με αλδολάσες φρουκτόζης 1,6-διφωσφορικής από Staphylococcus carnosus και μυϊκό ιστό κουνελιού. Carbohydr. Res. 357, 143–146. doi: 10.1016/j.carres.2012.05.007
Li, Z., He, B., Gao, Y., and Cai, L. (2015a). Σύνθεση D-σορβόζης και D-ψίκωσης με ανασυνδυασμένο Escherichia coli. J. Carbohydr. Chem. 34, 349–357. doi: 10.1080/07328303.2015.1068794
Li, Z., Li, F., Cai, L., Chen, Z., Qin, L., and Gao, X.-D. (2020b). Σύνθεση σπάνιων κετοζών από γλυκερόλη με πολλαπλά ένζυμα σε μία αντίδραση (one-pot). J. Agric. Food Chem. 68, 1347–1353. doi: 10.1021/acs.jafc.9b06748
Li, Z., Li, Y., Duan, S., Liu, J., Yuan, P., Nakanishi, H., et al. (2015b). Βιομετατροπή D-γλυκόζης σε D-ψίκωση με ακινητοποιημένη ισομεράση D-ξυλόζης και 3-επιμεράση D-ψίκωσης σε σπόρια Saccharomyces cerevisiae. J. Ind. Microbiol. 42, 1117–1128. doi: 10.1007/s10295-015-1631-8
Li, C., Lin, J., Guo, Q., Zhang, C., Du, K., Lin, H., et al. (2018). Εκκριτική υπερέκφραση, ακινητοποίηση και βιομετατροπή, διαχωρισμός και κρυστάλλωση της 3-επιμεράσης D-ψίκωσης. J. Chem. Technol. Biotechnol. 93, 350–357. doi: 10.1002/jctb.5360
Li, Y., Shi, T., Han, P., and You, C. (2021). Παραγωγή D-αλλουλόζης προστιθέμενης αξίας από φθηνό άμυλο μέσω ενός in vitro ενζυμικού συνθετικού βιοσυστήματος που καθοδηγείται από τη θερμοδυναμική. ACS Catal. 11, 5088–5099. doi: 10.1021/acscatal.0c05718
Li, W., Zhu, Y., Jiang, X., Zhang, W., Guang, C., and Mu, W. (2020a). Παραγωγή D-αλλουλόζης από ινουλίνη σε μία αντίδραση (one-pot) με μια νέα θερμοσταθερή εξοϊνουλινάση από Aspergillus piperis και 3-επιμεράση D-αλλουλόζης από Dorea sp. Process Biochem. 99, 87–95. doi: 10.1016/j.procbio.2020.08.021
Lim, B. C., Kim, H. J., and Oh, D. K. (2009). Μια σταθερή ακινητοποιημένη 3-επιμεράση D-ψίκωσης για την παραγωγή D-ψίκωσης παρουσία βορικού άλατος. Process Biochem. 44, 822–828. doi: 10.1016/j.procbio.2009.03.017
Liu, S., Ammirati, M. J., Song, X., Knafels, J. D., Zhang, J., Greasley, S. E., et al. (2012). Πληροφορίες για τον μηχανισμό ενεργοποίησης της γλυκοκινάσης: παρατήρηση πολλαπλών διακριτών διαμορφώσεων πρωτεϊνών. J. Biol. Chem. 287, 13598–13610. doi: 10.1074/jbc.M111.274126
Liu, Z., Cao, S., Liu, M., Kang, W., and Xia, J. (2019). Αυτοσυναρμολογούμενα νανοδομημένα πολυένζυμα σε συνθετικά πρωτεϊνικά ικριώματα. ACS Nano 13, 11343–11352. doi: 10.1021/acsnano.9b04554
Lloyd, D. J., St Jean, D. J., Kurzeja, R. J., Wahl, R. C., Michelsen, K., Cupples, R., et al. (2013). Αντιδιαβητικά αποτελέσματα των μικρομοριακών διαταρακτών της ρυθμιστικής πρωτεΐνης της γλυκοκινάσης. Nature 504, 437–440. doi: 10.1038/nature12724
Matsuo, T., and Izumori, K. (2009). Η D-ψίκωση αναστέλλει την εντερική άλφα-γλυκοσιδάση και καταστέλλει τη γλυκαιμική απόκριση μετά την κατάποση υδατανθράκων σε αρουραίους. J. Clin. Biochem. Nutr. 45, 202–206. doi: 10.3164/jcbn.09-36
Matsuo, T., Suzuki, H., Hashiguchi, M., and Izumori, K. (2002). Η D-ψίκωση είναι ένα σπάνιο σάκχαρο που δεν παρέχει ενέργεια σε αναπτυσσόμενους αρουραίους. J. Nutr. Sci. Vitaminol. 48, 77–80. doi: 10.3177/jnsv.48.77
McDonald, E. J. (1967). A new synthesis of D-psicose (D-ribo-hexulose). Carbohydr. Res. 5, 106–108. doi: 10.1016/0008-6215(67)85014-6
Moller, D., and Berger, J. (2003). Role of PPARs in the regulation of obesity-related insulin sensitivity and inflammation. Int. J. Obes. 27, S17–S21. doi: 10.1038/sj.ijo.0802494
Nagata, Y., Kanasaki, A., Tamaru, S., and Tanaka, K. (2015). D-psicose, an epimer of D-fructose, favorably alters lipid metabolism in Sprague–Dawley rats. J. Agric. Food Chem. 63, 3168–3176. doi: 10.1021/jf502535p
Narayan Patel, S., Singh, V., Sharma, M., Sangwan, R. S., Singhal, N. K., and Singh, S. P. (2018). Development of a thermo-stable and recyclable magnetic nanobiocatalyst for bioprocessing of fruit processing residues and D-allulose synthesis. Bioresour. Technol. 247, 633–639. doi: 10.1016/j.biortech.2017.09.112
Natsume, Y., Yamada, T., Iida, T., Ozaki, N., Gou, Y., Oshida, Y., et al. (2021). Investigation of D-allulose effects on high-sucrose diet-induced insulin resistance via hyperinsulinemic-euglycemic clamps in rats. Heliyon 7:e08013. doi: 10.1016/j.heliyon.2021.e08013
Nishida, K., and Kondo, A. (2021). CRISPR-derived genome editing technologies for metabolic engineering. Metab. Eng. 63, 141–147. doi: 10.1016/j.ymben.2020.12.002
Ochiai, M., Onishi, K., Yamada, T., Iida, T., and Matsuo, T. (2014). D-psicose increases energy expenditure and decreases body fat accumulation in rats fed a high-sucrose diet. Int. J. Food Sci. Nutr. 65, 245–250. doi: 10.3109/09637486.2013.845653
Park, S. Y., and Yoon, K. Y. (2015). Enzymatic production of soluble dietary fiber from the cellulose fraction of Chinese cabbage waste and potential use as a functional food source. Food Sci. Biotechnol. 24, 529–535. doi: 10.1007/s10068-015-0069-0
Pfefferkorn, J. A. (2013). Strategies for the design of hepatoselective glucokinase activators to treat type 2 diabetes. Expert. Opin. Drug. Discov. 8, 319–330. doi: 10.1517/17460441.2013.748744
Qi, Z., Zhu, Z., Wang, J.-W., Li, S., Guo, Q., Xu, P., et al. (2017). Biochemical analysis and the preliminary crystallographic characterization of D-tagatose 3-epimerase from Rhodobacter sphaeroides. Microb. Cell Factories 16:193. doi: 10.1186/s12934-017-0808-4
Ran, G., Tan, D., Zhao, J., Fan, F., Zhang, Q., Wu, X., et al. (2019). Functionalized polyhydroxyalkanoate nano-beads as a stable biocatalyst for cost-effective production of the rare sugar D-allulose. Bioresour. Technol. 289:121673. doi: 10.1016/j.biortech.2019.121673
Rienzo, M., Jackson, S. J., Chao, L. K., Leaf, T., Schmidt, T. J., Navidi, A. H., et al. (2021). High-throughput screening for high-efficiency small-molecule biosynthesis. Metab. Eng. 63, 102–125. doi: 10.1016/j.ymben.2020.09.004
Sánchez-Moreno, I., Francisco García-García, J., Bastida, A., and García-Junceda, E. (2004). Multienzyme system for dihydroxyacetone phosphate-dependent aldolase catalyzed C–C bond formation from dihydroxyacetone. Chem. Commun. 35, 1634–1635. doi: 10.1002/chin.200447149
Schümperli, M., Pellaux, R., and Panke, S. (2007). Chemical and enzymatic routes to dihydroxyacetone phosphate. Appl. Microbiol. Biotechnol. 75, 33–45. doi: 10.1007/s00253-007-0882-3
Shepelin, D., Hansen, A. S. L., Lennen, R., Luo, H., and Herrgård, M. J. (2018). Selecting the best: evolutionary engineering of chemical production in microbes. Genes 9:249. doi: 10.3390/genes9050249
Shintani, T., Sakoguchi, H., Yoshihara, A., Izumori, K., and Sato, M. (2017a). D-Allulose, a stereoisomer of D-fructose, extends Caenorhabditis elegans lifespan through a dietary restriction mechanism: a new candidate dietary restriction mimetic. Biochem. Biophys. Res. Commun. 493, 1528–1533. doi: 10.1016/j.bbrc.2017.09.147
Shintani, T., Yamada, T., Hayashi, N., Iida, T., Nagata, Y., Ozaki, N., et al. (2017b). Rare sugar syrup containing D-allulose but not high-fructose corn syrup maintains glucose tolerance and insulin sensitivity partly via hepatic glucokinase translocation in Wistar rats. J. Agric. Food Chem. 65, 2888–2894. doi: 10.1021/acs.jafc.6b05627
Song, Y., Nguyen, Q. A., Wi, S. G., Yang, J., and Bae, H. J. (2016). Strategy for dual production of bioethanol and D-psicose as value-added products from cruciferous vegetable residue. Bioresour. Technol. 223, 34–39. doi: 10.1016/j.biortech.2016.10.021
Song, Y., Oh, C., and Bae, H.-J. (2017). Simultaneous production of bioethanol and value-added D-psicose from Jerusalem artichoke (Helianthus tuberosus L.) tubers. Bioresour. Technol. 244, 1068–1072. doi: 10.1016/j.biortech.2017.08.079
Περίληψη στο PubMed | Πλήρες κείμενο CrossRef | Google Scholar
Su, L., Sun, F., Liu, Z., Zhang, K., and Wu, J. (2018). Highly efficient production of clostridium cellulolyticum H10 D-psicose 3-epimerase in Bacillus subtilis and use of these cells to produce D-psicose. Microb. Cell Factories 17:188. doi: 10.1186/s12934-018-1037-1
Περίληψη στο PubMed | Πλήρες κείμενο CrossRef | Google Scholar
Suna, S., Yamaguchi, F., Kimura, S., Tokuda, M., and Jitsunari, F. (2007). Preventive effect of D-psicose, one of rare ketohexoses, on di-(2-ethylhexyl) phthalate (DEHP)-induced testicular injury in rat. Toxicol. Lett. 173, 107–117. doi: 10.1016/j.toxlet.2007.06.015
Περίληψη στο PubMed | Πλήρες κείμενο CrossRef | Google Scholar
Takata, M. K., Yamaguchi, F., Nakanose, K., Watanabe, Y., Hatano, N., Tsukamoto, I., et al. (2005). Neuroprotective effect of D-psicose on 6-hydroxydopamine-induced apoptosis in rat pheochromocytoma (PC12) cells. J. Biosci. Bioeng. 100, 511–516. doi: 10.1263/jbb.100.511
Περίληψη στο PubMed | Πλήρες κείμενο CrossRef | Google Scholar
Toyoda, Y., Mori, S., Umemura, N., Futamura, N., Inoue, H., Hata, T., et al. (2010). Suppression of blood glucose levels by D-psicose in glucose tolerance test in diabetic rats. Jpn. Pharmacol. Ther. 65, 2888–2894. doi: 10.1021/acs.jafc.6b05627
Tseng, C.-W., Liao, C.-Y., Sun, Y., Peng, C.-C., Tzen, J. T. C., Guo, R.-T., et al. (2014). Immobilization of clostridium cellulolyticum D-psicose 3-epimerase on artificial oil bodies. J. Agric. Food Chem. 62, 6771–6776. doi: 10.1021/jf502022w
Περίληψη στο PubMed | Πλήρες κείμενο CrossRef | Google Scholar
Ung, Y. T., Ong, C. E., and Pan, Y. (2018). Current high-throughput approaches of screening modulatory effects of xenobiotics on cytochrome P450 (CYP) enzymes. High Throughput. 7:29. doi: 10.3390/ht7040029
Περίληψη στο PubMed | Πλήρες κείμενο CrossRef | Google Scholar
Wagner, N., Bosshart, A., Failmezger, J., Bechtold, M., and Panke, S. (2015). A separation-integrated cascade reaction to overcome thermodynamic limitations in rare-sugar synthesis. Angew. Chem. Int. Ed. Engl. 54, 4182–4186. doi: 10.1002/anie.201411279
Περίληψη στο PubMed | Πλήρες κείμενο CrossRef | Google Scholar
Wei, M., Li, Z., Li, T., Wu, B., Liu, Y., Qu, J., et al. (2015). Transforming flask reaction into cell-based synthesis: production of polyhydroxylated molecules via engineered Escherichia coli. ACS Catal. 5, 4060–4065. doi: 10.1021/acscatal.5b00953
Windle, C. L., Müller, M., Nelson, A., and Berry, A. (2014). Engineering aldolases as biocatalysts. Curr. Opin. Chem. Biol. 19, 25–33. doi: 10.1016/j.cbpa.2013.12.010
Περίληψη στο PubMed | Πλήρες κείμενο CrossRef | Google Scholar
Wong, J. X., Ogura, K., Chen, S., and Rehm, B. H. A. (2020). Bioengineered polyhydroxyalkanoates as immobilized enzyme scaffolds for industrial applications. Front. Bioeng. Biotechnol. 8:156. doi: 10.3389/fbioe.2020.00156
Περίληψη στο PubMed | Πλήρες κείμενο CrossRef | Google Scholar
Wu, Y., Chen, T., Liu, Y., Tian, R., Lv, X., Li, J., et al. (2019). Design of a programmable biosensor-CRISPRi genetic circuits for dynamic and autonomous dual-control of metabolic flux in Bacillus subtilis. Nucleic Acids Res. 48, 996–1009. doi: 10.1093/nar/gkz1123
Περίληψη στο PubMed | Πλήρες κείμενο CrossRef | Google Scholar
Wu, S., and Li, Z. (2018). Whole-cell cascade biotransformations for one-pot multistep organic synthesis. ChemCatChem 10, 2164–2178. doi: 10.1002/cctc.201701669
Xia, Y., Cheng, Q., Mu, W., Hu, X., Sun, Z., Qiu, Y., et al. (2021). Research advances of D-allulose: An overview of physiological functions, enzymatic biotransformation technologies, and production processes. Foods 10:2186. doi: 10.3390/foods10092186
Περίληψη στο PubMed | Πλήρες κείμενο CrossRef | Google Scholar
Yang, J., Tian, C., Zhang, T., Ren, C., Zhu, Y., Zeng, Y., et al. (2019). Development of food-grade expression system for D-allulose 3-epimerase preparation with tandem isoenzyme genes in Corynebacterium glutamicum and its application in conversion of cane molasses to D-allulose. Biotechnol. Bioeng. 116, 745–756. doi: 10.1002/bit.26909
Περίληψη στο PubMed | Πλήρες κείμενο CrossRef | Google Scholar
Yang, J., Zhu, Y., Li, J., Men, Y., Sun, Y., and Ma, Y. (2015). Biosynthesis of rare ketoses through constructing a recombination pathway in an engineered Corynebacterium glutamicum. Biotechnol. Bioeng. 112, 168–180. doi: 10.1002/bit.25345
Περίληψη στο PubMed | Πλήρες κείμενο CrossRef | Google Scholar
Yang, J., Zhu, Y., Men, Y., Sun, S., Zeng, Y., Zhang, Y., et al. (2016). Pathway construction in Corynebacterium glutamicum and strain engineering to produce rare sugars from glycerol. J. Agric. Food Chem. 64, 9497–9505. doi: 10.1021/acs.jafc.6b03423
Περίληψη στο PubMed | Πλήρες κείμενο CrossRef | Google Scholar
Yoshihara, A., Kozakai, T., Shintani, T., Matsutani, R., Ohtani, K., Iida, T., et al. (2017). Purification and characterization of D-allulose 3-epimerase derived from Arthrobacter globiformis M30, a GRAS microorganism. J. Biosci. Bioeng. 123, 170–176. doi: 10.1016/j.jbiosc.2016.09.004
Zhang, W., Chen, D., Chen, J., Xu, W., Chen, Q., Wu, H., et al. (2021). D-allulose, a versatile rare sugar: recent biotechnological advances and challenges. Crit. Rev. Food Sci. Nutr. doi: 10.1080/10408398.2021.2023091
Zhang, W., Jia, M., Yu, S., Zhang, T., Zhou, L., Jiang, B., et al. (2016a). Improving the thermostability and catalytic efficiency of the D-psicose 3-epimerase from Clostridium bolteae ATCC BAA-613 using site-directed mutagenesis. J. Agric. Food Chem. 64, 3386–3393. doi: 10.1021/acs.jafc.6b01058
Zhang, W., Li, H., Jiang, B., Zhang, T., and Mu, W. (2017). Production of D-allulose from D-glucose by Escherichia coli transformant cells co-expressing D-glucose isomerase and D-psicose 3-epimerase genes. J. Sci. Food Agric. 97, 3420–3426. doi: 10.1002/jsfa.8193
Zhang, W., Li, H., Zhang, T., Jiang, B., Zhou, L., and Mu, W. (2015). Characterization of a D-psicose 3-epimerase from Dorea sp. CAG317 with an acidic pH optimum and a high specific activity. J. Mol. Catal. B Enzym. 120, 68–74. doi: 10.1016/j.molcatb.2015.05.018
Zhang, J., Xu, C., Chen, X., Ruan, X., Zhang, Y., Xu, H., et al. (2020). Engineered Bacillus subtilis harbouring gene of D-tagatose 3-epimerase for the bioconversion of D-fructose into D-psicose through fermentation. Enzym. Microb. Technol. 136:109531. doi: 10.1016/j.enzmictec.2020.109531
Zhang, W., Yu, S., Zhang, T., Jiang, B., and Mu, W. (2016b). Recent advances in D-allulose: physiological functionalities, applications, and biological production. Trends Food Sci. Technol. 54, 127–137. doi: 10.1016/j.tifs.2016.06.004
Zhang, W., Zhang, T., Jiang, B., and Mu, W. (2016c). Biochemical characterization of a D-psicose 3-epimerase from Treponema primitia ZAS-1 and its application on enzymatic production of D-psicose. J. Sci. Food Agric. 96, 49–56. doi: 10.1002/jsfa.7187
Zhu, Z., Gao, D., Li, C., Chen, Y., Zhu, M., Liu, X., et al. (2019a). Redesign of a novel D-allulose 3-epimerase from Staphylococcus aureus for thermostability and efficient biocatalytic production of D-allulose. Microb. Cell Factories 18:59. doi: 10.1186/s12934-019-1107-z
Zhu, Z., Li, C., Liu, X., Gao, D., Wang, X., Tanokura, M., et al. (2019b). Biochemical characterization and biocatalytic application of a novel D-tagatose 3-epimerase from Sinorhizobium sp. RSC Adv. 9, 2919–2927. doi: 10.1039/C8RA10029B
Zhu, Y., Li, Y., Xu, Y., Zhang, J., Ma, L., Qi, Q., et al. (2021). Development of bifunctional biosensors for sensing and dynamic control of glycolysis flux in metabolic engineering. Metab. Eng. 68, 142–151. doi: 10.1016/j.ymben.2021.09.011
Λέξεις-κλειδιά: σπάνια σάκχαρα, D-αλλουλόζη, 3-επιμεράση της D-αλλουλόζης, βιοσύνθεση, αλδολάσες, εφαρμογές
Αναφορά: Chen Z, Gao XD και Li Z (2022) Νεότερα επιτεύγματα σχετικά με τις φυσιολογικές λειτουργίες και τη βιοσύνθεση της D-αλλουλόζης. Front. Microbiol . 13:881037. doi: 10.3389/fmicb.2022.881037
Αξιολογήθηκε από:
Youqiang Xu , Πανεπιστήμιο Τεχνολογίας και Επιχειρήσεων του Πεκίνου, Κίνα;Xinqiang Xie , Ακαδημία Επιστημών του Γκουανγκντόνγκ, Κίνα.
Πνευματικά δικαιώματα © 2022 Chen, Gao και Li. Πρόκειται για άρθρο ανοικτής πρόσβασης που διανέμεται υπό τους όρους της άδειας Creative Commons Attribution (CC BY). Η χρήση, η διανομή ή η αναπαραγωγή σε άλλα φόρουμ επιτρέπεται, υπό την προϋπόθεση ότι αναφέρεται ο/οι αρχικός/-οί συγγραφέας/-είς και ο κάτοχος των πνευματικών δικαιωμάτων και ότι η δημοσίευση στο αρχικό περιοδικό αναφέρεται σύμφωνα με την αποδεκτή ακαδημαϊκή πρακτική. Απαγορεύεται οποιαδήποτε χρήση, διανομή ή αναπαραγωγή που δεν συμμορφώνεται με αυτούς τους όρους.
*Αλληλογραφία: Zijie Li, lizijie@jiangnan.edu.cn
Αποποίηση ευθύνης: Όλοι οι ισχυρισμοί που διατυπώνονται στο παρόν άρθρο αποτελούν αποκλειστικά ευθύνη των συγγραφέων και δεν αντικατοπτρίζουν κατ' ανάγκη εκείνους των συνεργαζόμενων οργανισμών τους, του εκδότη, των συντακτών και των αξιολογητών. Κάθε προϊόν που αξιολογείται στο άρθρο ή ισχυρισμός που διατυπώνεται από τον κατασκευαστή του δεν εγγυάται ούτε υποστηρίζεται από τον εκδότη.
